 2026, Vol. 47


2. 西北农林科技大学资源与环境学院,杨凌 712100
2. College of Natural Resources and Environment, Northwest A & F University, Yangling 712100, China
生物质经高温限氧热解得到的生物炭往往具有丰富的表面含氧官能团(oxygen-containing functional group,OFGs)和持久性自由基(persistent free radicals,PFRs),以上特性使得生物炭可能介导活性氧(reactive oxygen species,ROS)的产生,包括羟基自由基(·OH)、过氧化氢(H2O2)和超氧阴离子自由基(O2-·)[1~3]. ROS具有高反应活性,其在调控土壤-水生系统元素地球化学循环、微生物活性抑制及污染物迁移转化过程中发挥着关键作用[4]. 近年来,随着生物炭在环境治理和污染修复中的应用,生物炭介导环境中ROS的形成及其对污染物降解的作用受到了广泛关注[3,5].
近期研究表明,电子从还原性物质向O2的转移是ROS生成的新型路径[6],该机制在具有动态氧化还原波动特性的环境中尤为显著[7]. 土壤和水中的氧化还原活性物质可以为渗透的氧气提供电子并产生ROS[8]. 例如,天然有机质(NOM)通过其醌基团接收厌氧微生物代谢电子[9],在有氧条件下,储存在NOM中的电子可以转移到O2中产生ROS[10]. 生物炭是一种氧化还原活性物质,生物炭中的PFRs能直接将电子转移到O2,产生O2-·和H2O2,H2O2进一步与PFRs反应产生·OH[11]. 生物炭中羟基和氢醌等给电子基团也能够直接将电子传递给O2形成H2O2和·OH,同时,石墨化的π-共轭晶格结构具有良好的电子传递功能,羰基和醌基能直接参与过氧化物的活化反应产生·OH[12,13]. 在厌氧-好氧交替变化的环境中,生物炭可能通过类醌基和PFRs的反复充放电,从而直接介导ROS的形成[14]. 厌氧条件下,环境微生物如希瓦氏菌能还原有机质,醌基团可以在微生物还原腐殖质的过程中充当电子受体[6]. 因此,微生物很可能还原生物炭,在厌氧条件下形成还原性生物炭. 然而,目前对于微生物对生物炭的还原改性作用缺乏研究,对微生物还原改性生物炭介导环境中ROS的生成过程和机制知之甚少.
近年来,人们在利用生物炭强化催化降解环境中有机污染物方面开展了广泛研究. 例如,He等[15]以甘蔗衍生的原始生物炭为新型催化剂,与过一硫酸氢钾偶联,有效催化降解水中双酚A和其他有机污染物. 堐梦娜等[16]研究发现,利用生物炭作为助催化剂,可加速类芬顿反应中的Fe3+/Fe2+循环,提高H2O2利用率,可高效降解有机污染物. Wu等[17]研究发现在紫外线条件下,生物炭的存在使得罗明丹B的降解率提高了10倍,生物炭的氧化还原活性部分(如醌部分)对罗明丹B光降解发挥了重要作用. Wu等[18]利用过氧单硫酸根(PMS)激活生物质炭中PFRs,产生瞬时自由基(SO4-·和·OH),降解四环素. 然而,先前大多数研究均集中在原始生物炭或化学改性生物炭对有机污染物的强化降解作用,尚未涉及氧化还原界面驱动下可能产生的还原改性生物炭及其介导ROS对有机污染物的去除.
因此,本研究以水稻秸秆为原料制备不同热解温度(500℃与700℃)的生物炭,选取水土介质中普遍存在的希瓦氏菌为微生物的代表,研究厌氧条件下微生物对生物炭的还原改性作用,系统比较还原改性前后生物炭物理化学性质的差异;进一步探讨微生物还原改性生物炭(reduced biochar,RBC)介导水中3种典型ROS(·OH、H2O2和O2-·)的生成动力学过程及机制;最后,对比考察原始生物炭(BC)和RBC对四环素的去除效率和机制,阐明生物炭介导ROS与其对四环素降解效率之间的关系. 本研究结果将为生物炭介导水中ROS的生成过程提供新的见解,以期为发展基于生物炭技术的环境修复与污染治理提供理论依据.
1 材料与方法 1.1 实验材料所用菌株兼性厌氧菌希瓦氏菌(Shewanella oneidensis MR-1),购自宁波明舟生物科技有限公司. 将希瓦氏菌细胞在好氧溶原肉汤(LB)琼脂平板(10 g·L-1蛋白胨、5 g·L-1酵母提取物、10 g·L-1 NaCl和15 g·L-1琼脂)上划线,并在30℃下培养. 将菌落转移到液体LB培养基中,并在30℃和150 r·min-1的好氧条件下孵育72 h;随后将悬浮液在8 000 r·min-1条件下离心10 min,沉降物即为收获的细菌[9]. 将收获的细菌用无菌NaCl溶液(0.1 mol·L-1)过滤、洗涤和重悬3次,并在1 h内使用.
2,2'-联氮基-双(3-乙基苯并噻唑啉-6-磺酸)二铵盐(ABTS)(> 99%)、氯化钾、磷酸二钠、磷酸氢二钠、氢氧化钠、碳酸钠、碳酸氢钠、盐酸四环素和乙腈等实验试剂购于上海麦克林生化科技有限公司. 异丙醇,香豆素(COU)、7-羟基香豆素(7-hCOU)、XTT钠盐、荧光红染料(Ampliflu Red)和辣根过氧化物酶(HRP)等实验试剂购于阿拉丁试剂公司. 两性离子紫罗碱4,4'-联吡啶-1,1'-双(2-乙基磺酸酯)[zwitterionic viologen 4,4'-bipyridinium-1,1'-bis(2-ethylsulfonate)](ZiV)根据文献[19]的方法,在实验室合成.
1.2 生物炭的制备与表征使用的水稻秸秆来自江苏连云港. 在45 ℃下将水稻秸秆干燥24 h,研磨后,再通入10 mL·min-1的N2气氛管式炉(GSL-1100X-S,合肥科晶公司,中国)中裂解制备生物炭,以5℃·min-1升温速度达到终端温度500℃和700℃,恒温热裂解2 h,得到的生物炭分别命名为BC500和BC700. 将冷却后的生物炭用玛瑙研钵研磨并过100目筛,储存在干燥的棕色玻璃瓶中以备后续实验使用.
生物炭的表面形貌采用台式扫描电子显微镜(SEM,Phenom ProX,荷兰)进行观察. 生物炭的比表面积采用快速比表面与孔隙度分析仪(ASAP 2020,美国)进行测定. 生物炭的C、H和N元素含量通过元素分析仪(Vario EL Ⅲ,德国)测定. 灰分则采用直接灰分法测定,即将生物质炭置于800℃的马弗炉中灼烧4 h后通过差重法计算[20];O元素的含量利用质量差减法计算得到,O%=100%-(C%+H%+N%+灰分%). 生物炭pH采用pH计(雷磁PHS-3C)测定,生物炭和超纯水固液比为1∶20(质量比)[21]. 生物炭的官能团用傅立叶变换红外光谱仪(FTIR,Nicolet Is50,美国)和X射线光电子能谱仪(XPS,KRATOS Analytical Ultra型)进行表征. PFRs用电子顺磁共振光谱仪(EPR,E500-10/12,布鲁克)表征. 生物炭的缺陷含量利用激光拉曼光谱仪(Horiba LabRAM HR Evolution,日本)进行表征.
1.3 微生物改性生物炭微生物对生物炭的还原改性过程在LML培养基(pH为7.2~7.4)中进行[22]. LML培养基含有:2.38 g·L-1 4-(2-羟乙基)-1-哌嗪-乙磺酸(HEPES);杆菌蛋白胨(Difco),0.1 g·L-1;酵母提取物(Oxoid),0.2 g·L-1;碳酸氢钠,0.168 g·L-1,硫酸氢钠,50 mol·L-1. 将生物炭(2 g·L-1)和希瓦氏菌(107 CFU·mL-1)加入到100 mL LML培养基中,充分混合后,将混合液放置到恒温厌氧培养箱培养10 d. 接着将厌氧培养后的生物炭用0.45 μm的滤膜过滤,洗涤,冷冻干燥,得到的生物炭定义为微生物还原改性生物炭(RBC). 将还原改性生物炭保存在厌氧手套箱中,由BC500和BC700得到的还原改性生物炭分别命名为RBC500和RBC700.
1.4 生物炭电子转移能力测试通过介导电化学还原(mediated electrochemical reduction,MER)[23]和氧化(mediated electrochemical oxidation,MEO)[24]分别量化生物炭的得电子容量(electron-accepting capacity,EAC)和给电子容量(electron-donating capacity,EDC). 介导电化学分析测定过程在电化学工作站(CHI1232c,上海辰华仪器有限公司)和厌氧手套箱中的三电极电池进行. 具体为:1个9 mL玻碳坩埚同时用作电化学反应容器和工作电极,盘绕铂丝电极用作对电极,Ag/AgCl电极作为参比电极. 在玻碳坩埚中填充5 mL PBS缓冲液. MER和MEO分别在-0.70 V和0.61 V的外加电位下进行. 当背景电流达到平衡时,将0.1 mL电子转移介质两性离子紫精4,4'-联吡啶-1,1'-双(2-乙基磺酸)(ZiV,MER)或2,2'-叠氮基双(3-乙基苯并噻唑啉-6-磺酸)二铵盐(ABTS,MEO)的溶液(10 mmol·L-1)添加到反应容器中. 当背景电流达到平衡时,将适量的BC悬浮液添加到反应容器中,通过整合还原(MER,Eh=-0.70 V)和氧化(MEO,Eh=0.61 V)电流响应来量化转移到生物炭和从生物炭转移的电子数量. 按照公式(1)和公式(2)进行计算,获得EAC和EDC值:
| (1) |
| (2) |
式中,Ired为介导还原电流,Iox为介导氧化电流,F为法拉第常数,F=96 485.33 C·mol-1. mBiochar为每次注入反应体系的生物炭质量,单位为g;t为反应时间,单位为s;EAC和EDC以e-/biochar计,单位为mmol·g-1.
所有生物炭样品至少进行了3次分析,分析之间的t≥30 min,以确保单个电流峰的基线分离. 生物炭的电子交换容量(electronic exchange capacity,EEC,EEC=EAC+EDC)描述了其接受和提供电子的总容量.
1.5 水溶液中生物炭介导ROS的生成动力学实验在100 mL锥形瓶中,加入40 mg生物炭和20 mL超纯水,搅拌均匀后,分别加入20 mL不同ROS探针,在黑暗条件下用磁力搅拌器持续搅拌悬浮液. 在不同的时间间隔(0、1、2、3、4、5和6 h)采集悬浮液样品2 mL,用0.22 μm水性滤膜过滤,分别测定滤液中O2-·、H2O2和·OH的累积浓度. 以对苯二甲酸钠盐(TPA,1 mol·L-1)为化学探针,定量检测·OH的浓度[25]. 以甲基红(10 μmol·L-1)为探针,探测在辣根过氧化物酶(HRP,1 U·mL-1)存在下通过形成间苯二酚而累积产生的H2O2[26]. 以2,3-双(2-甲氧基-4-硝基-5-磺苯基)-2H-四氮唑-5-甲酰苯胺内盐(XTT,0.05 mol·L-1)为探针,定量检测O2-·的浓度[8]. 所有实验至少重复3次以保证数据的可靠性.
1.6 有氧和厌氧条件下生物炭对四环素的去除实验有氧条件下生物炭对四环素的去除动力学实验具体方法:称取100 mg生物炭放入100 mL锥形瓶中,加入50 mL超纯水,再加入50 mL浓度为20 m g·L-1四环素溶液,将混合液放置于恒温多点磁力搅拌器上并敞口,以500 r·min-1转速避光搅拌(25℃). 分别在搅拌10 min、30 min、1 h、2 h、3 h、4 h、5 h和6 h后取样,过0.22 μm水性滤膜,测定滤液中四环素的浓度. 厌氧条件下生物炭对四环素的去除实验过程在厌氧手套箱中进行. 吸附过程与有氧条件一致,在混合液搅拌6 h后取样,过0.22 μm水性滤膜,测定滤液中四环素的浓度. 预实验结果表明,不添加生物炭的四环素溶液在整个去除实验过程中四环素损失量仅为1.5%. 水溶液中四环素的测定方法采用高效液相色谱仪(Waters Alliance e2695HPLC,美国)测定,液相色谱条件如下:柱温35℃,流动相,乙腈(A)和0.2%(体积比)甲酸(B),流速0.3 mL·min-1;测定时采用的流动相梯度为:0~7 min,10%~40% A,7~9 min,40%~60% A,9~9.01 min,60%~10% A. 生物炭处理6 h后样品中残留的四环素及其降解产物采用高效液相色谱⁃质谱联用仪(LC-MS,美国Thermo Fisher Scientific公司)检测. LC-MS液相色谱条件与前述一致,质谱仪参数为:离子化模式=电喷雾正离子(ES+),锥孔电压=40 V,碰撞能量=6 V,样品流速10 L·min-1,雾化气为氮气,气体温度280℃. 通过该方法获得四环素标准品及降解产物质荷比(m/z)信息,并使用MassLynx 4.2软件对降解产物进行分析. 所有实验至少重复3次以保证数据的可靠性.
1.7 数据分析利用SPSS和Origin软件进行单因素方差分析(one-way ANOVA),显著性水平设定为P < 0.05,采用Origin 2021进行绘图,采用IBM SPSS Statistics 26软件进行多元回归模型分析. 利用准一级动力学模型[式(3)]和准二级动力学模型[式(4)]对生物炭去除四环素的动力学曲线进行拟合.
| (3) |
| (4) |
式中,qt为在t时刻生物炭对四环素的去除量,mg·g-1;qe为生物炭去除四环素达到平衡时的去除量,mg·g-1;k1为准一级动力学速率常数,h-1;k2为准二级动力学速率常数,g·(mg·h)-1,t为生物炭去除四环素所用的时间,h.
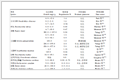
2 结果与讨论 2.1 原始生物炭(BC)与微生物还原改性生物炭(RBC)理化性质比较BC和RBC的基本理化性质如表 1所示. 所有生物炭均呈强碱性(pH > 10),RBC的pH略小于BC,这可能与微生物代谢产生的有机酸中和了部分碱性组分有关[27]. 相比于BC,RBC500和RBC700的比表面积分别增加了63%和54%,RBC的C含量下降,而O含量上升,尤其是RBC700. 极性因子O/C和(O+N)/C可以反映生物炭的亲水性和极性,其数值越大,亲水性和极性越强[28],H/C可以反映生物炭的芳香性大小,数值越小,表明其芳香化程度越高[29]. RBC的O/C、H/C和(O+N)/C数值均高于其BC,这说明微生物还原作用增加了BC的亲水性和极性,使得其芳香化程度降低. 扫描电子显微镜(SEM)观测揭示了微生物对生物炭微观形貌的影响(图 1). 原始BC表面较为光滑,分布有少量的碎屑,而经微生物还原改性后,RBC表面粗糙度显著增加,可见大量碎屑附着,以上形貌变化可能是导致生物炭比表面积增大的重要原因.
|
表 1 生物炭的理化性质1) Table 1 Physico-chemical properties of biochar |

|
图 1 生物炭的扫描电子显微镜图像 Fig. 1 SEM images of biochar |
红外光谱(FTIR)分析揭示了微生物对生物炭官能团的影响. 如图 2(a)所示,生物炭中检测到的特征官能团包括:3 411 cm-1处的吸收峰归属于酚羟基的O—H伸缩振动[30];1 612 cm-1处的峰对应羰基C=O及醌基C=C/C=O的伸缩振动[23];1 375 cm-1处的吸收峰源于脂肪族—CH3弯曲振动[31];1 100 cm-1处的峰为酯基C—O—C伸缩振动[23];785 cm-1处的峰归属于芳香族化合物C—H面外弯曲振动[32]. 经微生物还原改性后,RBC在1 612 cm-1(羰基C=O及醌基C=C/C=O)、1 375 cm-1(脂肪族—CH3弯曲振动)和785 cm-1(芳香族C—H)处的FTIR吸收峰强度明显高于原始BC,这表明RBC的含氧官能团增加,芳香性减弱,这与元素分析结果一致. 微生物作用破坏了生物炭的芳香结构,同时微生物代谢产生的还原性物质可能通过氢转移作用,在生物炭表面形成了新的脂肪族C—H键[33]. 值得注意的是,RBC700在3 411 cm-1处出现一个新的吸收峰,表明其表面可能发生了C=O加氢反应,生成了酚羟基(C—OH).

|
图 2 生物炭性质的光谱学表征 Fig. 2 Spectroscopy characterization of biochar properties |
XPS C1s分析进一步揭示了微生物对生物炭表面官能团的影响. 如图 2(b)~2(e)所示,生物炭表面主要存在C—C键(284.80 eV)、C—O键(286 eV附近)和C=O键(288 eV附近)[34],并在293 eV附近观察到π⁃π*卫星峰[35]. 相比于BC500,RBC500的C—C和C=O键相对含量明显增加,而C—O键相对含量明显减少. 相比于BC700,RBC700的C—O键和C=O相对含量增加,而C—C键相对含量略有减少. 这说明微生物还原作用对不同裂解温度生物炭官能团的改变不同,RBC700中C=O可能发生了加氢反应,生成相应的酚羟基(C—OH),导致C—O键相对含量上升,这与FTIR表征中羟基信号的变化一致. 值得注意的是,RBC500和RBC700的π-π*卫星峰均消失,这表明微生物还原改性后生物炭的芳香性明显减弱.
拉曼光谱揭示了微生物对生物炭晶体结构的影响. 如图 2(f)所示,BC700的晶体缺陷指标ID/IG数值小于BC500,表明热解温度升高,生物炭石墨化程度升高,晶体缺陷减少,这与文献结果一致[36]. 经微生物作用后,RBC500与RBC700的ID/IG值均显著高于相应原始BC,表明微生物作用降低了生物炭石墨化程度,并增加了内部缺陷.
EPR分析揭示了微生物对生物炭中持久性自由基的影响. 如图3(a)和3(b)所示,BC500、BC700、RBC500和RBC700的g值分别是2.003 2、2.002 6、1.999 8和2.001 4,说明生物炭的PFRs均为以碳原子为中心(g值< 2.004 0)[37]. BC500的PFRs信号峰远高于BC700,BC500中PFRs的值达到了1.0×10¹⁹ spins·g-1,而BC700的值仅为1.52×10¹⁶ spins·g-1(表 1). 这与先前文献研究结果一致,在中等制备温度(400~500℃)下生物炭的PFRs值最高,当制备温度超过650℃时,生物炭中的PFRs逐渐消失[12]. 经过微生物还原之后,PFRs信号峰有所增加,RBC500和RBC700中PFRs值相比原始BC分别增加了20%和425%. 上述现象表明,微生物还原改性显著增加了生物炭中PFRs的值,但不改变PFRs的类型.

|
图 3 生物炭持久性自由基和电子得失能力表征 Fig. 3 Characterization of PFRs and EEC for biochar |
介导电化学分析揭示了微生物对生物炭电子得失能力的影响. 如图 3(c)所示,BC500的得电子容量(EAC)为0.347 mmol·g-1,高于BC700(0.248 mmol·g-1),而给电子容量(EDC)为0.175 mmol·g-1,低于BC700(0.252 mmol·g-1). 这一结果与已有报道一致,中等裂解温度的EAC数值通常较高[38]. 有研究表明,含氧官能团是中等制备温度生物炭得失电子能力的主要来源,而结构缺陷是影响高温制备生物炭得失电子能力的主要因素[38]. 生物炭中主要得电子基团包括醌类、羰基和羧基基团,而最常见的给电子基团是酚羟基[12,23]. 经过微生物作用后,生物炭的EAC和EDC发生了显著变化. 相比于原始BC,RBC500和RBC700的EAC分别增加了92%和79%,这一变化趋势与FTIR、XPS和拉曼光谱表征结果相吻合(图 2),RBC700的得电子基团数量明显上升,RBC500和RBC700的晶格缺陷明显上升. 碳缺陷产生的电子空穴(具有强吸电子能力)和未配对电子/孤对电子(具有强给电子能力)共同作用,有助于提升碳材料的EAC[39~41]. 从生物炭电子交换容量(EEC=EAC+EDC)来看,RBC500的EEC为0.841 mmol·g-1,比BC500高61%,而RBC700的EEC与BC700接近(0.5 mmol·g-1). 有研究指出,EDC和EAC各自在EEC中的占比是衡量生物炭氧化还原特性的重要指标,当EAC占比较大时,表明生物炭更具有氧化性质;而EDC占比较大时,则说明生物炭更具有还原性质[38]. 本研究发现,BC500的EAC/EEC高于BC700,说明BC500更具有氧化性质,而RBC500和RBC700的EAC/EEC均显著高于其BC,表明微生物作用增强了生物炭的氧化特性.
2.2 生物炭介导ROS形成动力学有氧条件下(搅拌),原始BC和RBC悬浮液中3种典型ROS的生成动力学曲线如图 4所示. 无论BC还是RBC,·OH和H2O2的动力学曲线在初始1 h内迅速上升,之后上升速率减缓. 原始BC在反应6 h内仅检测到·OH和H2O2的产生,而未检测到O2-·. BC500体系中6 h后累积检测到的c(·OH)和c(H2O2)分别为0.039 μmol·L-1和12.27 μmol·L-1. BC700体系中6 h后累积检测到的c(·OH)和c(H2O2)分别为0.039 μmol·L-1和17.13 μmol·L-1. 由此可见,BC介导产生的ROS以H2O2为主. 这一结果与已有报道类似,在自然氧化条件下,BC介导·OH浓度在nmol·L-1的水平,而H2O2浓度在μmol·L-1的水平[14]. Fang等[11]研究发现,在吹扫O2的条件下,1 g·L-1生物炭可以产生20~80 μmol·L-1的·OH,O2是H2O2转化为·OH的关键因素. 本研究中未采用曝气条件,可能导致反应体系中O2不足,从而抑制了H2O2向·OH的转化,使得检测到的·OH浓度较低.

|
图 4 生物炭悬浮液中3种典型ROS (·OH、H2O2和O2-·)生成动力学曲线 Fig. 4 Formation kinetics of three typical ROS (·OH, H2O2, and O2-·) in biochar suspensions |
与原始BC相比,RBC500和RBC700介导的3种典型ROS的浓度均明显增加. 例如,RBC500反应6 h后累积检测到的c(·OH)和c(H2O2)分别为0.076 μmol·L-1和27.79 μmol·L-1,比BC500分别增加了95%和126%. RBC700反应6 h后累积检测到的c(·OH)和c(H2O2)分别为0.073 μmol·L-1和28.80 μmol·L-1,比BC700分别增加了87%和68%. RBC500和RBC700中累积检测到的c(O2-·)分别为5.25 μmol·L-1和1.47 μmol·L-1. 这一结果与文献报道类似,Li等[14]研究发现,RBC悬浮液在空气中氧化100 min后生成了6.5 μmol·L-1的H2O2,显著高于其原始BC(0.7 μmol·L-1),但·OH几乎未检出. Page等[6]研究发现,相较于未处理腐植酸(HA),微生物还原态HA经再氧化介导·OH的生成量显著增加,且·OH生成量随HA还原程度增加而升高.
2.3 生物炭介导产生ROS机制分析生物炭悬浮液形成ROS的机制可能主要有3种途径:一是PFRs介导产生ROS,即生物炭中的PFRs将电子直接转移给O2,形成O2-·和H2O2,再通过单电子过程和双电子过程,进一步与PFRs反应产生·OH[11,42];二是含氧官能团介导ROS产生[38,43],即生物炭表面丰富的醌基和氢醌等具有氧化还原活性基团,使得其获得大量活性位点与不饱和电子对,通过羟基等给电子基团在生物炭表面还原溶解O2而形成ROS(如O2+e-→O2-·;2O2-·+2H+→H2O2+O2;O2+2e-+2H+→H2O2);三是生物炭的石墨结构介导ROS生成[14,44],即石墨化结构促进了电子传递的效率,增加了ROS的生成.
从第1条途径来看,BC500和RBC500中极高值的PFRs(1019 spins·g-1)可能直接介导了水溶液中ROS的形成. 而BC700和RBC700中PFRs值极低(1016 spins·g-1),低于NOM中PFRs的平均值(1018~1019 spins·g-1)[45~47],这导致BC700很难通过PFRs直接介导ROS的生成. 相比于BC500,RBC500中较高的PFRs值是促进ROS生成的重要原因之一;从第2条途径来看,BC500和RBC500中丰富的含氧官能团,特别是酚羟基等给电子基团的存在,很可能直接在固液界面上还原O2而介导ROS生成. 虽然RBC500的醌基团与BC500相差不大,但RBC500的比表面积显著高于BC500(表 1),这可能使得RBC500具有更高的吸附能力,可以将更多的O2吸附在生物炭表面上发生反应以生成更多的ROS. 相比于原始BC700,经过微生物的作用,RBC700中产生了更多的醌基和羰基,这可能是RBC700介导产生更多ROS的重要原因;从第3条途径来看,BC700和RBC700中丰富的石墨化结构和醌基是介导其产生ROS的主要原因. BC700和RBC700在有氧条件下通过石墨化结构的高效电子传递,将储存的电子转移到O2而产生ROS. RBC700石墨化结构上含氧官能团的形成(如醌类结构)有助于自由电子的稳定,形成更多的PFRs[48],也有利于ROS的形成.
Li等[14]研究发现,生物炭的EEC与其介导产生ROS之间存在显著正相关关系,这很好地解释了RBC500和BC500之间较高的EEC与其介导产生较高ROS的对应关系. 然而,虽然RBC700的ROS生成量高于原始BC700,但两者的EEC并未表现出显著差异. 这一现象可能源于不同类型生物炭在ROS生成选择性及电子利用效率上的差异. 有研究表明,BC中H2O2的选择性生成源于O2在氢醌位点与碳缺陷处的竞争性吸附和反应,碳材料中的缺陷可以充当O2吸附或还原的反应位点,是驱动双电子氧还原路径生成H2O2的关键[44,49]. RBC500和RBC700相比于原始BC具有更多的碳缺陷,碳缺陷本身作为高效的催化活性位点,显著增强了生物炭对O2的吸附和活化,优先选择双电子氧还原路径,直接促进了H2O2的生成. 值得注意的是,本研究发现生物炭介导ROS的生成量变化趋势与其EAC的变化更为一致,这一现象值得深入研究.
2.4 生物炭对水溶液中四环素的去除作用由图 5(a)可知,与原始BC相比,在搅拌有氧条件下RBC500和RBC700对四环素的去除量均得到明显提升,反应6 h后,它们对四环素的总去除量由1.50 mg·g-1和1.91 mg·g-1分别提升到3.85 mg·g-1和4.57 mg·g-1,提高了157%和139%. 采用准一级和准二级动力学模型对生物炭去除四环素的动力学曲线进行了拟合分析(表 2),发现准二级动力学模型能更好地描述四环素的去除行为. 这表明有氧条件下生物炭对四环素的去除过程主要以化学作用为主[50]. 在黑暗厌氧条件下,生物炭悬浮液中几乎不产生ROS,该环境下生物炭对四环素的去除作用主要是吸附作用[51]. 本研究将在黑暗有氧条件下生物炭悬浮液对四环素的去除量减去黑暗无氧条件下生物炭悬浮液对四环素的吸附量,得到生物炭悬浮液对四环素的降解量. 如图 5(b)所示,相比于原始BC,RBC500和RBC700对四环素的吸附量和降解量均得到大幅的提升,它们对四环素吸附量分别增加了161%和35%,而降解量分别增加了154%和495%. BC500和RBC500对四环素的去除以降解为主(> 50%). 值得注意的是,BC700对四环素的去除以吸附为主(77%),降解去除仅占23%,而RBC700对四环素的去除则以降解为主(56%).

|
(a)微生物还原前后生物炭对四环素的去除动力学曲线,(b)微生物还原前后生物炭对四环素的去除量 图 5 生物炭悬浮液对四环素的去除过程 Fig. 5 Tetracycline removal process in biochar suspension |
|
|
表 2 生物炭对四环素的去除动力学模型拟合参数1) Table 2 Fitting parameters of kinetic models for tetracycline removal by biochar |
从吸附作用来看,四环素和生物炭官能团之间共享或交换电子实现了化学吸附[52],其对有机污染物的吸附机制主要包括静电吸附、氢键作用、疏水作用以及氧化还原作用[53,54]. RBC表面的含氧官能团(如羧基、羟基和羰基等)含量显著高于原始BC(表 1和图 2),以上官能团可与四环素形成氢键和静电相互作用,因而RBC与四环素之间的化学吸附作用(如氢键、静电作用)强于BC. 同时,RBC的比表面积大于原始BC(表 1),更大的比表面积促进了四环素与RBC的接触,从而增强了其对四环素的吸附与降解效率[55].
生物炭悬浮液介导产生的ROS可通过自由基反应过程有效降解有机污染物[56]. 因此,通过分析ROS的生成情况与四环素去除量之间的相关关系,可以明确ROS在四环素去除中的作用. 如图 6所示,BC和RBC对四环素的总去除量与其介导产生·OH、H2O2和O2-·的量均存在显著的正相关关系. 例如,BC和RBC累积·OH浓度与其对四环素的去除量之间呈显著正相关关系,其参数为:BC500,R2=0.85,P=0.017;RBC500,R2=0.99,P=0.000 1;BC700,R2=0.91,P=0.004;RBC700,R2=0.96,P=0.000 1. BC和RBC累积H2O2浓度与其对四环素的去除量之间呈显著正相关关系,其参数为:BC500,R2=0.78,P=0.047;RBC500,R2=0.95,P=0.035;BC700,R2=0.71,P=0.022;RBC700,R2=0.95,P=0.008. RBC累积O2-·浓度与其对四环素的去除量之间呈显著正相关关系,其参数为:RBC500,R2=0.95,P=0.005;RBC700,R2=0.64,P=0.048. 由此可见,BC和RBC介导的3种典型ROS与其对水溶液中四环素的去除均密切关联,表明3种ROS可能都参与了四环素的降解过程.

|
图 6 微生物还原改性前后生物炭对四环素的去除量与其介导产生·OH浓度,H2O2浓度和O2-·浓度之间的相关性分析 Fig. 6 Correlation analysis between the removal of tetracycline by biochar before and after microbial reduction and the concentration of ·OH, H2O2 and O2-· mediated by biochar |
有研究表明,BC和RBC介导的3种典型ROS都具有一定的氧化作用,它们的氧化电位分别为:·OH,E0 vs. NHE=2.18 V;H2O2,E0 vs. NHE=0.46 V;O2-·,E0 vs. NHE为-0.33~-0.137 V[57,58]. 这表明·OH的氧化能力最强,H2O2其次,O2-·次之. Ji等[59]研究表明,生物炭介导产生的·OH在壬基酚降解中起最重要的作用,占总降解率的64.36%,H2O2和O2-·对降解的贡献率分别为30.87%和0.85%. 在稻壳生物炭降解苯甲酸的过程中,生物炭老化所产生的·OH贡献提升了59.20%的降解率[60]. 在去除土壤水中磺胺单甲氧嘧啶的过程中,新型Fe-Mn改性稻草生物炭诱导产生的·OH被证明是去除作用主要贡献者[61]. 因此,尽管生物炭介导产生·OH的量最少,但它在四环素降解中仍起重要的作用.
本研究结果表明,不同生物炭体系测得的四环素降解产物液相色谱出峰谱图和质谱图相似. 四环素降解产物质谱图中特征质荷比(m/z)依次有:445、371、274、186、142、99和80. 据此,本研究提出了四环素降解的可能路径如图 7所示:四环素通过脱羟基、脱氮甲基、脱酰胺、开环裂解、脱氨和脱水等反应逐步降解为中间产物. 首先,初始四环素(m/z=445)先通过C1位发生氮甲基完全脱落,以及C2和C4a位脱羟基反应形成产物B(m/z=371)[62]. 随后发生脱酰胺和C—C键断裂的开环反应形成产物C(m/z=274)和小分子产物D(m/z=99). 随后产物C脱羟基、脱甲基和开环反应生成产物E(m/z=186)[62,63]. 最终通过脱氨和脱水反应为产物F(m/z =142)和产物G(m/z =80)[64]. 随着反应进行,中间产物最终可能被氧化分解成更小的分子.

|
图 7 生物炭降解四环素的可能路径 Fig. 7 Possible pathways of tetracycline degradation by biochar |
(1)厌氧条件下,微生物对生物炭的还原改性作用显著改变了生物炭的理化性质. 相比于原始BC,RBC的O含量上升,亲水性和极性增加,芳香化程度降低;表面形貌粗糙性和碎片增加,比表面积显著增大,含氧官能团数量、PFRs值、碳缺陷程度以及得电子容量显著增加.
(2)生物炭介导产生的3种典型ROS以H2O2为主,其浓度最高. 从机制来看,BC500和RBC500中极高值的PFRs和丰富的含氧官能团,特别是给电子基团,它们直接介导了水溶液中ROS的生成;而BC700和RBC700中丰富的石墨化结构和醌基是介导产生ROS的主要原因.
(3)微生物还原改性后,RBC介导ROS的生成能力较原始BC显著增强,RBC500介导产生·OH和H2O2的浓度分别增加了94%和126%;RBC700介导产生·OH和H2O2的浓度分别增加了87%和68%. 以上增强效应与还原改性后生物炭中PFRs、含氧官能团、碳缺陷程度和得电子容量的增加密切相关.
(4)微生物还原改性后,RBC对四环素的去除效能明显高于原始BC,其对四环素的吸附能力和降解能力均显著提升. BC500和RBC500对四环素的去除以降解为主,BC700对四环素的去除以吸附为主,而RBC700对四环素的去除则以降解为主. 生物炭介导的3种典型活性氧(·OH、H2O2和O2-·)均可能参与了四环素的降解,四环素通过脱羟基、脱氮甲基、脱酰胺、开环裂解、脱氨和脱水等反应逐步降解为小分子物质.
| [1] | Zhu K C, Ma S R, Chen N, et al. Robust reactive oxygen species production in interfacial reaction between organic acids and biochar: the combined effect of electron acceptance and electron conduction[J]. Journal of Hazardous Materials, 2024, 464. DOI:10.1016/j.jhazmat.2023.132960 |
| [2] | You T T, Wang S F, Xi Y M, et al. Photo-enhanced oxidation of arsenite by biochar: the effect of pH, kinetics and mechanisms[J]. Journal of Hazardous Materials, 2024, 461. DOI:10.1016/j.jhazmat.2023.132652 |
| [3] |
唐正, 赵松, 钱雅洁, 等. 生物炭持久性自由基形成机制及环境应用研究进展[J]. 化工进展, 2020, 39(4): 1521-1527. Tang Z, Zhao S, Qian Y J, et al. Formation mechanisms and environmental applications of persistent free radicals in biochar: a review[J]. Chemical Industry and Engineering Progress, 2020, 39(4): 1521-1527. |
| [4] | Yao J Y, Wang H W, Fang J, et al. Distribution hotspots, formation mechanisms, and ecological effects of reactive oxygen species in soil and sediment: a critical review[J]. Environmental Science & Technology, 2025, 59(27): 13551-13565. |
| [5] |
秦雅鑫, 李桂英, 安太成, 等. 生物炭环境应用过程中的生态和健康风险研究进展[J]. 科学通报, 2021, 66(1): 5-20. Qin Y X, Li G Y, An T C, et al. Advances in ecological and health risks of biochar during environmental applications[J]. Chinese Science Bulletin, 2021, 66(1): 5-20. |
| [6] | Page S E, Sander M, Arnold W A, et al. Hydroxyl radical formation upon oxidation of reduced humic acids by oxygen in the dark[J]. Environmental Science & Technology, 2012, 46(3): 1590-1597. |
| [7] | Wang S M, Liu T, Zhu E X, et al. Potential retention of dissolved organic matter by soil minerals during wetland water-table fluctuations[J]. Water Research, 2024, 254. DOI:10.1016/j.watres.2024.121412 |
| [8] | Zhao G Q, Wu B B, Zheng X S, et al. Tide-triggered production of reactive oxygen species in coastal soils[J]. Environmental Science & Technology, 2022, 56(16): 11888-11896. |
| [9] | Klüpfel L, Piepenbrock A, Kappler A, et al. Humic substances as fully regenerable electron acceptors in recurrently anoxic environments[J]. Nature Geoscience, 2014, 7(3): 195-200. DOI:10.1038/ngeo2084 |
| [10] | Li B, Wang S, Fessler M, et al. Differential interactions between natural clay minerals and dissolved organic matter affect reactive oxygen species formation[J]. Water Research, 2024, 249. DOI:10.1016/j.watres.2023.120984 |
| [11] | Fang G D, Zhu C Y, Dionysiou D D, et al. Mechanism of hydroxyl radical generation from biochar suspensions: implications to diethyl phthalate degradation[J]. Bioresource Technology, 2015, 176. DOI:10.1016/j.biortech.2014.11.032 |
| [12] | Yuan J M, Wen Y H, Dionysiou D D, et al. Biochar as a novel carbon-negative electron source and mediator: electron exchange capacity (EEC) and environmentally persistent free radicals (EPFRs): a review[J]. Chemical Engineering Journal, 2022, 429. DOI:10.1016/j.cej.2021.132313 |
| [13] | Zhao C H, Shao B B, Yan M, et al. Activation of peroxymonosulfate by biochar-based catalysts and applications in the degradation of organic contaminants: a review[J]. Chemical Engineering Journal, 2021, 416. DOI:10.1016/j.cej.2021.128829 |
| [14] | Li X, Tan M X, Wu B B, et al. Redox oscillation-driven production of reactive oxygen species from black carbon[J]. Environmental Science & Technology, 2024, 58(48): 21210-21217. |
| [15] | He L Z, Liu Z R, Hu J F, et al. Sugarcane biochar as novel catalyst for highly efficient oxidative removal of organic compounds in water[J]. Chemical Engineering Journal, 2021, 405. DOI:10.1016/j.cej.2020.126895 |
| [16] |
堐梦娜, 李晓曼, 李慧明, 等. 生物炭在催化类芬顿反应降解有机污染物中的应用[J]. 环境科技, 2022, 35(5): 71-75. Ya M N, Li X M, Li H M, et al. Applications of biochar in catalyzing fenton-like reaction for degradation of organic pollutants[J]. Environmental Science and Technology, 2022, 35(5): 71-75. |
| [17] | Wu D P, Li F F, Chen Q, et al. Mediation of rhodamine B photodegradation by biochar[J]. Chemosphere, 2020, 256. DOI:10.1016/j.chemosphere.2020.127082 |
| [18] | Wu L Y, Li Z Y, Cheng P T, et al. Efficient activation of peracetic acid by mixed sludge derived biochar: critical role of persistent free radicals[J]. Water Research, 2022, 223. DOI:10.1016/j.watres.2022.119013 |
| [19] | Bhandari S, Deepa M, Pahal S, et al. A dual electrochrome of poly-(3, 4-ethylenedioxythiophene) doped by N, N'-bis(3-sulfonatopropyl)-4-4'-bipyridinium—redox chemistry and electrochromism in flexible devices[J]. ChemSusChem, 2010, 3(1): 97-105. DOI:10.1002/cssc.200900202 |
| [20] | Mao J F, Zhang K, Chen B L. Linking hydrophobicity of biochar to the water repellency and water holding capacity of biochar-amended soil[J]. Environmental Pollution, 2019, 253: 779-789. DOI:10.1016/j.envpol.2019.07.051 |
| [21] | Rajkovich S, Enders A, Hanley K, et al. Corn growth and nitrogen nutrition after additions of biochars with varying properties to a temperate soil[J]. Biology and Fertility of Soils, 2012, 48(3): 271-284. DOI:10.1007/s00374-011-0624-7 |
| [22] | Myers C R, Myers J M. Ferric iron reduction-linked growth yields of Shewanella putrefaciens MR‐1[J]. Journal of Applied Bacteriology, 1994, 76(3): 253-258. DOI:10.1111/j.1365-2672.1994.tb01624.x |
| [23] | Zhang Y, Xu X Y, Zhang P Y, et al. Pyrolysis-temperature depended quinone and carbonyl groups as the electron accepting sites in barley grass derived biochar[J]. Chemosphere, 2019, 232. DOI:10.1016/j.chemosphere.2019.05.225 |
| [24] | Zhang Y, Xu X Y, Cao L Z, et al. Characterization and quantification of electron donating capacity and its structure dependence in biochar derived from three waste biomasses[J]. Chemosphere, 2018, 211. DOI:10.1016/j.chemosphere.2018.08.033 |
| [25] | Wu B B, Zhou C, Zhao G Q, et al. Enhanced photochemical production of reactive intermediates at the wetland soil-water interface[J]. Water Research, 2022, 223. DOI:10.1016/j.watres.2022.118971 |
| [26] | Zhou M J, Diwu Z, Panchuk-Voloshina N, et al. A stable nonfluorescent derivative of resorufin for the fluorometric determination of trace hydrogen peroxide: applications in detecting the activity of phagocyte NADPH oxidase and other oxidases[J]. Analytical Biochemistry, 1997, 253(2): 162-168. DOI:10.1006/abio.1997.2391 |
| [27] |
李新, 张月超, 刘芳华. 一株单环刺螠肠道电活性希瓦氏菌Shewanella marisflavi的生理学特性[J]. 微生物学报, 2020, 60(7): 1401-1412. Li X, Zhang Y C, Liu F H. Physiological characteristics of an intestinal electroactive strain Shewanella marisflavi UU-3-2 from Urechis unicinctus[J]. Acta Microbiologica Sinica, 2020, 60(7): 1401-1412. |
| [28] | He X Y, Liu Z X, Niu W J, et al. Effects of pyrolysis temperature on the physicochemical properties of gas and biochar obtained from pyrolysis of crop residues[J]. Energy, 2018, 143. DOI:10.1016/j.energy.2017.11.062 |
| [29] | Siatecka A, Oleszczuk P. Mechanism of aging of biochars obtained at different temperatures from sewage sludges with different composition and character[J]. Chemosphere, 2022, 287. DOI:10.1016/j.chemosphere.2021.132258 |
| [30] | Lehmann J, Liang B Q, Solomon D, et al. Near-edge X-ray absorption fine structure (NEXAFS) spectroscopy for mapping nano-scale distribution of organic carbon forms in soil: application to black carbon particles[J]. Global Biogeochemical Cycles, 2005, 19(1). DOI:10.1029/2004GB002435 |
| [31] | Bustin R M, Guo Y. Abrupt changes (jumps) in reflectance values and chemical compositions of artificial charcoals and inertinite in coals[J]. International Journal of Coal Geology, 1999, 38(3-4): 237-260. DOI:10.1016/S0166-5162(98)00025-1 |
| [32] |
郑庆福, 王永和, 孙月光, 等. 不同物料和炭化方式制备生物炭结构性质的FTIR研究[J]. 光谱学与光谱分析, 2014, 34(4): 962-966. Zheng Q F, Wang Y H, Sun Y G, et al. Study on structural properties of biochar under different materials and carbonized by FTIR[J]. Spectroscopy and Spectral Analysis, 2014, 34(4): 962-966. |
| [33] | Meckenstock R U, Mouttaki H. Anaerobic degradation of non-substituted aromatic hydrocarbons[J]. Current Opinion in Biotechnology, 2011, 22(3): 406-414. |
| [34] | Chen X N, Wang X H, Fang D. A review on C1s XPS-spectra for some kinds of carbon materials[J]. Fullerenes, Nanotubes and Carbon Nanostructures, 2020, 28(12): 1048-1058. DOI:10.1080/1536383X.2020.1794851 |
| [35] | Geng J R, Huang Y H, Guo Y H, et al. Surface coordination modulated morphological anisotropic engineering of iron‐benzoquinone frameworks for lithium‐ion batteries[J]. Angewandte Chemie International Edition, 2024, 63(30): e202405066. DOI:10.1002/anie.202405066 |
| [36] | Guizani C, Haddad K, Limousy L, et al. New insights on the structural evolution of biomass char upon pyrolysis as revealed by the Raman spectroscopy and elemental analysis[J]. Carbon, 2017, 119. DOI:10.1016/j.carbon.2017.04.078 |
| [37] | Zhang Y Z, He R, Zhao J. Removal mechanism of tetracycline-Cr(Ⅵ) combined pollutants by different S-doped sludge biochars: role of environmentally persistent free radicals[J]. Chemosphere, 2023, 317. DOI:10.1016/j.chemosphere.2023.137856 |
| [38] | Klüpfel L, Keiluweit M, Kleber M, et al. Redox properties of plant biomass-derived black carbon (biochar)[J]. Environmental Science & Technology, 2014, 48(10): 5601-5611. |
| [39] | Wen G D, Wu S C, Li B, et al. Active sites and mechanisms for direct oxidation of Benzene to Phenol over carbon catalysts[J]. Angewandte Chemie International Edition, 2015, 54(13): 4105-4109. DOI:10.1002/anie.201410093 |
| [40] | Duan X G, Ao Z M, Zhou L, et al. Occurrence of radical and nonradical pathways from carbocatalysts for aqueous and nonaqueous catalytic oxidation[J]. Applied Catalysis B: Environmental, 2016, 188: 98-105. |
| [41] | Wang L, Pumera M. Electrochemical catalysis at low dimensional carbons: graphene, carbon nanotubes and beyond – A review[J]. Applied Materials Today, 2016, 5: 134-141. |
| [42] |
赵松, 刘晋波, 石亚芳, 等. Al(Ⅲ)-蒙脱土界面苯并[a]芘的转化及环境持久性自由基的形成机制[J]. 科学通报, 2021, 66(2): 233-243. Zhao S, Liu J B, Shi Y F, et al. Transformation of benzo[a]pyrene on Al(Ⅲ)-montmorillonite: Mechanism of environmental persistent radicals formation[J]. Chinese Science Bulletin, 2021, 66(2): 233-243. |
| [43] | Luo K, Yang Q, Pang Y, et al. Unveiling the mechanism of biochar-activated hydrogen peroxide on the degradation of ciprofloxacin[J]. Chemical Engineering Journal, 2019, 374. DOI:10.1016/j.cej.2019.05.204 |
| [44] | Chen S Y, Luo T, Chen K J, et al. Chemical identification of catalytically active sites on oxygen‐doped carbon nanosheet to decipher the high activity for electro‐synthesis hydrogen peroxide[J]. Angewandte Chemie International Edition, 2021, 60(30): 16607-16614. |
| [45] | dela Cruz A L N, Cook R L, Lomnicki S M, et al. Effect of low temperature thermal treatment on soils contaminated with pentachlorophenol and environmentally persistent free radicals[J]. Environmental Science & Technology, 2012, 46(11): 5971-5978. |
| [46] | Boyd S A, Mortland M M. Dioxin radical formation and polymerization on Cu(Ⅱ)-smectite[J]. Nature, 1985, 316(6028): 532-535. |
| [47] | Vejerano E, Lomnicki S, Dellinger B. Formation and stabilization of combustion-generated environmentally persistent free radicals on an Fe(Ⅲ)2O3/silica surface[J]. Environmental Science & Technology, 2011, 45(2): 589-594. |
| [48] |
张静, 江豪, 杨晓宇, 等. 锌和镍改性生物炭对环丙沙星的吸附降解性能与机制[J]. 环境科学, 2025, 46(2): 923-933. Zhang J, Jiang H, Yang X Y, et al. Mechanisms of zinc and nickel-modified biochar for adsorption and degradation of Ciprofloxacin[J]. Environmental Science, 2025, 46(2): 923-933. DOI:10.13227/j.hjkx.202402083 |
| [49] | Lu Z Y, Chen G X, Siahrostami S, et al. High-efficiency oxygen reduction to hydrogen peroxide catalysed by oxidized carbon materials[J]. Nature Catalysis, 2018, 1(2): 156-162. |
| [50] | Liu S, Xu W H, Liu Y G, et al. Facile synthesis of Cu(Ⅱ) impregnated biochar with enhanced adsorption activity for the removal of doxycycline hydrochloride from water[J]. Science of the Total Environment, 2017, 592: 546-553. |
| [51] | Xie J, Latif J, Yang K J, et al. A state-of-art review on the redox activity of persistent free radicals in biochar[J]. Water Research, 2024, 255. DOI:10.1016/j.watres.2024.121516 |
| [52] |
雷可, 刘莉莉, 张佳宏, 等. 工业化生产生物质炭对复合污染水体中四环素的吸附性能[J]. 环境科学, 2025, 46(1): 272-281. Lei K, Liu L L, Zhang J Y, et al. Adsorption of tetracycline in composite-polluted water by biochar from industrial production[J]. Environmental Science, 2025, 46(1): 272-281. DOI:10.13227/j.hjkx.202312069 |
| [53] | Liu L L, Lei K, Gao X, et al. Aeration-assisted removal of tetracycline from wastewater by biochar: mechanisms and cost-benefit analysis[J]. Environmental Research, 2025, 285. DOI:10.1016/j.envres.2025.122407 |
| [54] | Jin Z L, Xiao S J, Dong H R, et al. Adsorption and catalytic degradation of organic contaminants by biochar: overlooked role of biochar's particle size[J]. Journal of Hazardous Materials, 2022, 422. DOI:10.1016/j.jhazmat.2021.126928 |
| [55] | Zeng S Y, Li K Q, Xu X, et al. Efficiently catalytic degradation of tetracycline via persulfate activation with plant-based biochars: insight into endogenous mineral self-template effect and pyrolysis catalysis[J]. Chemosphere, 2023, 337. DOI:10.1016/j.chemosphere.2023.139309 |
| [56] | Chen X L, Li F, Chen H Y, et al. Fe2O3/TiO2 functionalized biochar as a heterogeneous catalyst for dyes degradation in water under Fenton processes[J]. Journal of Environmental Chemical Engineering, 2020, 8(4). DOI:10.1016/j.jece.2020.103905 |
| [57] | Burns J M, Cooper W J, Ferry J L, et al. Methods for reactive oxygen species (ROS) detection in aqueous environments[J]. Aquatic Sciences, 2012, 74(4): 683-734. |
| [58] | Yu G H, Kuzyakov Y. Fenton chemistry and reactive oxygen species in soil: abiotic mechanisms of biotic processes, controls and consequences for carbon and nutrient cycling[J]. Earth-Science Reviews, 2021, 214. DOI:10.1016/j.earscirev.2021.103525 |
| [59] | Ji J, Zhang H, Zhang F C, et al. Organic acid promoting the degradation of nonylphenol by persistent free radicals in biochar[J]. Chemical Engineering Journal, 2025, 512. DOI:10.1016/j.cej.2025.162446 |
| [60] | Zhang K K, Sun P, Khan A, et al. Photochemistry of biochar during ageing process: reactive oxygen species generation and benzoic acid degradation[J]. Science of the Total Environment, 2021, 765. DOI:10.1016/j.scitotenv.2020.144630 |
| [61] | Wang Y Y, Lyu H, Du Y Q, et al. Unraveling how Fe-Mn modified biochar mitigates sulfamonomethoxine in soil water: the activated biodegradation and hydroxyl radicals formation[J]. Journal of Hazardous Materials, 2024, 465. DOI:10.1016/j.jhazmat.2024.133490 |
| [62] | Liu Y C, Liu S M, Chen M Y, et al. Enhanced TC degradation by persulfate activation with carbon-coated CuFe2O4: the radical and non-radical co-dominant mechanism, DFT calculations and toxicity evaluation[J]. Journal of Hazardous Materials, 2024, 461. DOI:10.1016/j.jhazmat.2023.132417 |
| [63] | Xie Z J, Feng Y P, Wang F L, et al. Construction of carbon dots modified MoO3/g-C3N4 Z-scheme photocatalyst with enhanced visible-light photocatalytic activity for the degradation of tetracycline[J]. Applied Catalysis B: Environmental, 2018, 229: 96-104. |
| [64] | Xu W B, Huang D L, Wang G F, et al. Doped Cu0 and sulfidation induced transition from R-O· to ·OH in peracetic acid activation by sulfidated nano zero-valent iron-copper[J]. Water Research, 2024, 256. DOI:10.1016/j.watres.2024.121621 |