 2026, Vol. 47


2. 河海大学公共管理学院,南京 211100
2. School of Public Administration, Hohai University, Nanjing 211100, China
煤炭是保障中国经济高速增长的基石能源,但高强度的煤炭开采带来了土地毁坏、植被受损和水土流失等一系列生态环境问题[1,2]. 近20 a,我国煤炭生产的重点越来越向西迁移. 西部矿区多为干旱半干旱地区,生态本底较差,煤炭开采很大程度上打破了脆弱的生态平衡关系,加剧了生态退化,导致采煤沉陷区植被恢复非常困难. 与此同时,中国正向碳中和目标强势迈进,新旧能源接续发展迫在眉睫. 因此,将传统矿山空间资源与生态修复整合势在必行. 光伏发电作为一种新兴清洁能源,需要占用大量土地资源,煤矿开采形成的沉陷区或废弃地具有独特的空间优势. 干旱半干旱草原矿区将生态修复与光伏发电结合起来,不但充分利用了矿区光能资源和闲置土地,破解了光伏建设的空间约束,还可减少土壤水分蒸发,有利于地表植被恢复,从而实现多重效益[3].
采煤沉陷区治理与科学利用一直是全球性难题[4]. “生态修复+光伏发电”模式是传统矿区能源接续与生态修复的新范式,不仅解决了新旧能源接续和转型问题,还利用光伏发电与生态修复融合实现产业与治理协同. 当前,全球气候变化带来的不确定性日益加剧,对能源转型的需求越来越迫切. 美国、印度和波兰等主要煤炭生产国正试图利用采煤沉陷区发展光伏,并开展了选址规划、潜力测算等相关研究[5~7]. 我国光伏发电工程建设推进极为迅速,目前在大同、鄂尔多斯、乌海和榆林等地采煤沉陷区已建成的光伏发电装机容量突破了2 000万kW. 此外,数百个采煤沉陷区光伏建设项目正处在可行性论证或建设之中. 但光伏建设也可能会对生态环境产生不利影响. 光伏板会改变板下风速,加大土壤侵蚀;改变雨水流向,影响场地干湿;遮挡光照强度,影响植被生长和蒸腾作用,从而干扰复垦土壤微生物群落发育,影响草原矿区生态恢复的成效[8,9]. Choi等[10]研究发现,光伏电站建设时会清除植被并挖损土壤,导致生态恢复进程受阻,其对美国科罗拉多某光伏电站调查显示,7 a后土壤中碳、氮含量仍低于对照. 此外,有研究表明,电站内部板间表层土壤会出现细化现象,而板底前缘因风速增大形成掏蚀[11];光伏板截留降水造成遮阴区土壤持续干燥、容重上升[12],光合辐射减弱会抑制本地植物,助长外来喜阴入侵物种,降低了花粉传播与防风固沙等生态功能[13]. 土壤微生物群落作为生态系统能量流动和物质循环的关键因子,其对外界扰动的响应极为敏感[14],是揭示光伏设施生态效应的重要指标. 光伏板通过遮阴效应,能够降低地表温度、减少土壤水分蒸发,并通过对降水的再分配影响区域土壤含水量,从而影响局地微环境[15],驱动土壤微生物群落结构与多样性演变,但当前关于光伏建设对土壤微生物影响的研究较少,且尚未形成一致结论. Shi等[16]在青海荒漠生态系统的研究中发现,与电站外部相比,运行6 a后的光伏电站区内土壤原核微生物的系统发育多样性指数、香农指数和物种丰富度指数均出现显著下降. 冗余分析结果表明,土壤含水量是影响原核微生物多样性的关键环境因子,其与细菌多样性指数呈负相关关系,反映出土壤水分增加导致微生物多样性的降低. 孙文倩等[17]在青藏高原高寒草甸区的研究发现,土壤细菌的香农多样性指数和物种丰富度介于禁牧区与自由放牧区之间,且在封育草地上建设光伏板降低了土壤细菌的物种多样性. 丁成翔等[18]研究发现,建设光伏电站改变了原核微生物互作网络结构,原本多模块化的微生物相互作用趋于单一化,微生物网络中正相关关系增加,负相关关系减少,不利于生态系统的稳定性. 相反,王逸飞等[19]研究表明,光伏板的遮阴作用显著提高了植被的盖度、生物量与植物含水量,从而为土壤微生物提供了丰富资源,间接促进了微生物群落的恢复与多样性的提升. 目前,光伏建设对复垦土壤微生物群落稳定性、结构响应特征的影响及组装过程仍有待深入研究[20~22]. 因此,厘清光伏建设对复垦土壤微生物群落结构与功能等影响,对草原矿区生态恢复和生态安全至关重要[23,24].
随着光伏发电的大规模推广,对生态环境的影响倍受关注. 但光伏建设对动植物多样性、空间分布以及土壤碳固存能力的影响并未取得深入且一致的研究结论[25],尤其是土壤微生物群落结构与功能演化方面. 为此,本研究以陕西省榆林市榆神府煤矿复垦区光伏发电场为研究对象,探索光伏建设对复垦土壤理化性质、土壤微生物群落结构与组成、分子生态网络特征及互作关系的影响,以期为未来干旱半干旱草原矿区光伏建设与生态修复协同治理提供新见解.
1 材料与方法 1.1 研究区概况研究区位于榆林市榆神府煤矿复垦区(109.13°~110.67°E,38.05°~39.27°N,图 1),地处黄土高原与毛乌素沙地交界,属温带半干旱大陆性季风气候,多年平均气温为8.4℃,年均降水为432.4 mm,6~9月集中了全年降水的70%~80%,年蒸发量约为降水量的4~10倍. 该区土壤类型主要为风沙土和黄绵土,土壤养分贫瘠且结构疏松[26,27].

|
图 1 研究区及采样点示意 Fig. 1 Schematic of the study area and sampling sites |
2024年8月21~22日,从复垦区光伏板下(GF)、光伏板之间通道(BF)、未铺设光伏复垦区(RC)及未复垦沉陷区(CK),采用随机五点法采集0~20 cm表层土壤各200 g,混合成一个1 000 g样品,每个处理组设10个重复,共40个土样. 采集后剔除动植物残体、矸石等杂物,充分混匀后分成两份,分别用无菌聚乙烯袋密封包装,再保存于车载冰箱带回实验室. 其中:一份在4℃下保存,用于测定土壤理化性质;另一份新鲜土样直接用于微生物信息测定.
1.3 土壤理化性质测定土壤理化测定采用常规方法. 采用土水比1∶2.5(质量比)的水悬液测定土壤pH和电导率(EC);采用重铬酸钾外加热-比色法测定土壤有机碳(SOC);采用0.5 mol·L-1 NaHCO3提取、钼锑抗-紫外分光光度法测定土壤速效磷(AP);采用氯化钙浸提-分光光度法测定土壤硝态氮(NO3--N);采用氯化钾浸提-分光光度法测定土壤铵态氮(NH4+-N);采用凯氏定氮法测定土壤全氮(TN)含量.
1.4 高通量测序分析使用E.Z.N.ATM Mag-Bind Soil DNA Kit进行土壤总DNA提取,采用515F(5′-GTGCCAGCMGCCGCGG TAA-3′)和907R(CCGTCAATTCMTTTRAGTTT)对土壤细菌16S rRNA的V4、V5区进行PCR扩增,再用2%琼脂糖凝胶电泳对土壤样品进行PCR扩增产物检测,采用凝胶回收试剂盒(Omega,美国)切胶回收目标片段. 采用Quant-iT PicoGreen dsDNA试剂盒(Invitrogen,美国)于酶标仪(BioTek,美国)上对回收产物进行定量,并依等物质的量比例混合各样本. 使用Illumina文库制备试剂盒构建测序文库,并在Illumina MiSeq平台上进行双端300 bp测序. 测序工作由上海美吉生物医药科技有限公司完成. 获得的原始数据经Trimmomatic质控过滤和FLASH拼接后,使用DADA2算法去除PCR和测序错误,获得高精度序列. 最后分别对细菌与真菌序列进行物种注释与分类,获得土壤细菌和真菌群落结构信息.
1.5 分子生态网络分析采用基于R语言“WGCNA”包构建微生物共现网络. 首先进行数据预处理,随后计算所有ASV间的斯皮尔曼相关系数,并采用Benjamini-Hochberg方法对P值进行多重检验校正. 通过设定严格的筛选阈值来确定显著的相关关系,得到邻接矩阵. 利用“igraph”包将邻接矩阵转换为加权无向图,构建微生物共现网络,并移除所有孤立节点. 通过计算平均聚类系数(average clustering coefficient,CCavg)、平均路径距离(average path distance,DAP)、网络密度(network density,DN)和模块度(modularity,M)等来描述网络拓扑性质. 使用Gephi软件对网络进行可视化.
1.6 数据处理与统计分析土壤微生物群落α多样性使用“vegan”包计算,使用单因素方差分析(one-way ANOVA)比较不同处理组间土壤理化性质和微生物多样性的差异,采用最小显著差异法(LSD)进行数据检验,显著性水平设定为P=0.05. 采用Kruskal-Wallis H检验评价微生物目水平的相对丰度在各组间的差异显著性. 在美吉云免费在线平台(www.majorbio.com)上进行微生物β多样性分析,基于Bray-Curtis距离,采用PCoA评估土壤微生物群落结构的总体差异. 采用零模型解析微生物群落生态过程及探究微生物群落组装方式,先计算获得β-nearest taxon index(βNTI)和Raup-Crick矩阵(RCbray)等参数,当
图 1显示不同处理组土壤理化性质变化,土壤pH、EC、SOC、AP、NH4+-N、NO3--N和TN呈现显著差异(P < 0.05). 与CK相比,RC处理组pH显著降低(P < 0.05);与RC相比,GF处理组pH显著增加(P < 0.05),BF无pH显著变化,所有处理组均保持弱碱性[图 2(a)]. BF处理组EC最高,显著高于其他组[图 2(b)]. RC处理SOC显著高于CK、GF和BF(P < 0.05),分别高104.66%、77.64%和52.58%[图 2(c)]. 与SOC变化趋势相似,RC处理组AP显著高于其他组(P < 0.05),BF处理组也显著高于CK与GF[图 2(d)]. GF与BF处理组NH4+-N与NO3--N含量显著高于CK与RC(P < 0.05),GF处理组NO3--N含量最高,CK处理组最低[图2(e)和2(f)]. RC与BF处理组TN含量显著高于CK与GF(P < 0.05). 与CK相比,RC和BF处理组提高了21.39%和33.04%;与GF相比,RC和BF处理组提高了43.50%和57.27%[图 2(g)].

|
不同小写字母表示不同处理组间单因素方差分析检验存在显著性差异(P < 0.05),下同 图 2 不同处理组复垦土壤理化性质变化 Fig. 2 Changes of reclaimed soil physico-chemical properties under different treatments |
表 1显示了不同处理组土壤细菌群落α多样性呈显著差异(P < 0.05). 与CK相比,RC处理组Sobs指数显著增加(P < 0.05). 与RC相比,GF与BF处理组细菌群落Sobs指数、香农指数和辛普森指数分别降低了17.46%、3.74%、0.03%和8.21%、1.60%、0.01%,且GF处理组显著低于RC(P < 0.05). 除Pielou指数外,RC处理组细菌群落α多样性指数均高于其他组,BF处理组细菌群落α多样性指数高于GF,但差异并不显著. RC处理组细菌群落物种丰富度与多样性最高,GF处理组细菌α多样性低于RC和BF,说明光伏建设显著不利于细菌α多样性. 但不同处理组真菌群落α多样性无显著差异,说明复垦及光伏建设对真菌群落物种丰富度和多样性影响较小. CK与其他组细菌与真菌组成明显分离,RC、GF和BF样点沿轴2分离,细菌前两个轴分别解释了不同处理组细菌群落变化的16.29%和8.87%,真菌前两个轴分别解释了不同处理组真菌群落变化的13.11%和6.41%(图 3).
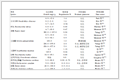
|
表 1 不同处理组复垦土壤微生物群落α多样性1) Table 1 The α diversity of reclaimed soil microbial community under different treatments |

|
***表示显著性水平为P < 0.001,下同 图 3 不同处理组复垦土壤微生物群落β多样性 Fig. 3 The β diversity of reclaimed soil microbial community under different treatments |
土壤细菌中放线菌门占30%~33%,酸杆菌门占15%~22%,变形菌门占17%~19%,绿弯菌门占13%~17%,为优势菌门[图 4(a)]. 真菌中子囊菌门占46%~74%,担子菌门占4%~18%,为群落优势菌门[图 4(b)]. 与CK相比,其他组子囊菌门相对丰度显著较高(P < 0.05),同时,GF与BF处理组担子菌门相对丰度低于CK与RC. 细菌中,不同处理组盖氏菌目(Gaiellales,相对丰度为2%~7%)存在差异(P < 0.05). 丙酸杆菌目(Propionibacteriales)占2%~6%,土壤红杆菌目(Solirubrobacterales)占2%~5%,红色杆菌目(Rubrobacterales)、假诺卡氏菌目(Pseudonocardiales)和小单孢菌目(Micromonosporales)在不同处理组呈显著性差异(P < 0.01). 热微菌目(Thermomicrobiales)占2%~4%,在不同处理组存在极显著差异(P < 0.001)[图 5(a)]. 真菌中肉座菌目(Hypocreales)占8%~27%,刺盾炱目(Chaetothyriales)占2%~11%,与球囊霉目(Glomerales)和盘菌目(Pezizales)在不同处理组均呈显著差异(P < 0.01). 不同处理组伞菌目(Agaricales)和煤炱目(Capnodiales)呈极显著差异(P < 0.001). 散子囊菌目(Eurotiales)占2%~8%,与伏革菌目(Corticiales)在不同处理组呈显著差异(P < 0.05)[图 5(b)].

|
图 4 细菌和真菌群落在门水平上相对丰度 Fig. 4 Relative abundance of bacterial and fungal communities at the phylum level |

|
*和**分别表示P < 0.05和P < 0.01,下同 图 5 细菌和真菌群落前15个目相对丰度 Fig. 5 Relative abundance of the top 15 orders of bacterial and fungal communities |
利用PICRUSt 2进行COG功能预测分析,不同处理组土壤细菌群落表现为相似的功能特征[图 6(a)]. 主要包括氨基酸转运与代谢,能量产生与转化,翻译、核糖体结构和生物发生,辅酶转运与代谢,碳水化合物转运与代谢和核苷酸转运与代谢等22大类功能. FUNGuild功能预测分析表明,不同处理组土壤真菌群落功能呈显著差异[图 6(b)]. 病原营养型的植物病原菌主要分布于CK处理组,且在GF与BF处理组中的相对丰度显著低于CK与RC处理组,未定义腐生真菌普遍存在,但丰度不均,CK处理组显著高于其他3组.

|
图 6 利用PICRUSt2和FUNGuild预测的细菌和真菌功能组变化 Fig. 6 Variations of functional groups of bacterial and fungal composition inferred by the PICRUSt2 and FUNGuild |
为厘清光伏建设对土壤微生物共现模式的影响,分别构建土壤细菌和真菌共现网络(图 7). 细菌网络可识别的优势ASV主要为放线菌门、酸杆菌门、绿弯菌门和变形菌门[图 7(a)]. 与CK相比,其他处理组细菌网络平均路径距离呈现不同程度下降,RC处理组平均聚类系数和模块度上升. 相比RC,GF处理组平均度数与网络密度较高,但平均聚类系数与模块度较低;BF处理组平均度数、平均聚类系数和网络密度较高,模块度较低(表 2). 真菌网络中可识别的优势ASV为子囊菌门[图 7(b)]. 与CK相比,RC处理组真菌平均聚类系数和模块度下降,平均路径距离增加;相比RC,GF与BF处理组真菌网络平均聚类系数与模块度提高(表 2).

|
图 7 不同处理组复垦土壤微生物共现网络 Fig. 7 Microbial co-occurrence network in reclaimed soil under different treatments |
|
|
表 2 不同处理组复垦土壤微生物群落网络参数 Table 2 Network parameters of microbial communities in reclaimed soil under different treatments |
利用R软件“vegan”包计算OTUs水平除趋势对应分析的gradient lengths(LG),细菌和真菌OTUs水平LG值分别为3.714 4和5.483 6,因此,对细菌采用冗余度分析(RDA),对真菌采用典范对应分析(CCA). 图 8(a)显示,细菌RDA1和RDA2的解释率分别为19.86%和16.0%,RDA分析结果表明,不同处理组间差异明显,CK与其他组形成明显的分离,表明复垦对土壤细菌群落影响显著,而光伏建设对细菌群落影响较小. pH、AP、NH4+-N和NO3--N为细菌群落结构变化的主导因子,RC、GF和BF处理组微生物群落结构与SOC和AP表现为正相关关系,与EC和pH表现为负相关关系;图 8(b)显示,真菌CCA1和CCA2的解释率分别为25.38%和16.05%,CCA分析结果表明,CK与其他组差异明显,且与细菌相比,RC、GF与BF处理组之间的差异增大,表明复垦及光伏建设对真菌群落影响更加显著. AP、NH4+-N和NO3--N为真菌群落结构变化的主导因子.

|
图 8 OTUs水平复垦土壤细菌、真菌和环境因子间RDA分析 Fig. 8 RDA analysis of reclaimed soil bacteria and fungi and environmental factors at OTU levels |
对比βNTI和RCbray发现,土壤细菌

|
图 9 不同处理组复垦土壤微生物群落βNTI和RCbray Fig. 9 The βNTI and RCbray values of microbial communities in reclaimed soil under different treatments |
本研究表明,相比未铺设光伏复垦区,光伏建设增加了复垦土壤pH,降低了表层土壤SOC和AP含量(图 2). 主要原因可能为光伏板减弱了雨水对碱性离子的淋溶作用,导致这些离子在表层土壤中的积累,从而造成pH值升高[29],使可溶性磷更易转化为难溶性磷,从而降低其有效性. 光伏遮阴抑制植物生长[30],减少了土壤SOC的输入来源[31]. 同时,本研究发现光伏建设增加了表层土壤中NH4+-N和NO3--N含量,光伏板下TN含量降低,光伏板之间通道无明显差异(图 2),推测是因为光伏板下温度、地上生物量和物种多样性较低[30],导致通过凋落物归还土壤的有机氮减少,致使TN含量较低,但板下植被稀疏使无机氮吸收较少,有利于NH4+-N和NO3--N的积累.
土壤微生物群落组成与功能同土壤养分循环紧密关联,是评估土壤生态变化的重要指标[32,33]. 本研究发现,与CK相比,RC处理组Sobs指数显著增加(P < 0.05),说明复垦有利于增加细菌群落丰富度,这与先前研究发现一致[34]. GF与BF处理组细菌群落丰富度和多样性显著低于RC(P < 0.05),BF处理组细菌群落丰富度和多样性高于GF,但差异并不显著(P > 0.05),见表 1,说明光伏建设降低了土壤细菌群落多样性,其中光伏板下变化最为明显,这与先前研究结果一致[17]. 而各处理组真菌群落丰富度和多样性无显著性差异,可能与细菌和真菌不同的生存策略有关[35]. 不同处理组优势菌群在门水平上无显著性差异(图 4),土壤细菌群落优势菌门为放线菌门、酸杆菌门、变形菌门和绿弯菌门,与干旱半干旱地区的其他矿区结果相一致[36,37],放线菌门与酸杆菌门均为寡营养型微生物,反映出干旱半干旱矿区土壤贫瘠;由变形菌门可知,微生物群落正在响应并试图修复采矿活动带来的有机污染压力[38];放线菌门、绿弯菌门和酸杆菌门一般更倾向于循环利用土壤中已有的、难以分解的有机质,而不是依赖来自地表植被的新鲜碳输入,符合干旱半干旱矿区植被较为稀疏的特征. 不同处理组优势菌群在目水平上存在显著性差异(图 5). PICRUSt 2功能预测分析表明,光伏建设对细菌群落功能无显著影响. 研究区土壤真菌优势菌门为子囊菌门和担子菌门,与CK相比,其他组子囊菌门相对丰度显著较高(P < 0.05),但RC、GF和BF这3组间无显著差异,同时,GF与BF处理组担子菌门相对丰度低于CK与RC. 子囊菌门介导着碳氮养分循环的关键过程,参与植物共生关系,并具备较强的环境抗逆性[39],说明矿区复垦有利于土壤生态系统的改善. 担子菌门作为土壤生态系统中广泛分布的重要分解者及外生菌根真菌的主要类群,在推动矿区碳、氮的转化等土壤养分循环过程中发挥着关键作用[40],本研究发现,光伏建设会降低其相对丰度,因此,在矿区光伏系统建设后的生态恢复中,可考虑通过人工接种适生担子菌菌种,以增强土壤有机质降解与植物养分吸收能力,促进生态系统功能的快速稳定. 此外,FUNGuild功能预测分析揭示,矿区复垦及光伏建设对真菌功能具有显著影响,其对真菌功能类群丰度的影响显著大于细菌,这与先前研究结果类似[41,42],表明真菌群落对复垦土壤环境变化更敏感.
3.2 光伏建设对复垦土壤微生物分子生态网络的影响分子生态网络作为解析物种动态及其复杂互作关系的关键手段得到了广泛应用[43,44]. 微生物群落中各物种通过互作关系形成复杂网络,而共现网络通过揭示微生物群落的组装原理与种间关系[24],有助于人们了解物种间复杂关系,增加对生态系统复杂性与稳定性及其互作关系的理解[45,46]. 本研究表明,细菌网络中可识别的优势ASV主要为放线菌门、酸杆菌门、绿弯菌门和变形菌门[图 7(a)],这与前文细菌群落组成一致. 与CK相比,其他处理组细菌网络平均路径距离呈现不同程度下降,RC处理组平均聚类系数和模块度上升,说明复垦能促进细菌网络的稳定性,提升对外部环境变化的抗扰动能力,这与张世文等[47]的研究发现相似. 相比RC,GF处理组平均度数和网络密度增加,可能与光伏板下相对稳定的独特微环境有关,但其平均路径距离的增长和模块化的降低表明,GF处理组网络的整体效率与结构稳定性较RC有所下降. 整体来看,RC与GF塑造了两种截然不同的土壤细菌网络构建策略,RC“少而精”,GF“多而杂”,说明光伏板下可能因其引入的冗余复杂连接,降低了网络结构的效率与抗干扰能力. 这一发现与在其他半人工生态系统[48]及不同土地利用方式下[49]的观察相似,即环境条件的改变会驱动微生物共现网络复杂性和模块化结构的改变. 相比RC,BF处理组平均度数、平均聚类系数和网络密度较高,模块度较低(表 2),说明其网络复杂性较高,但稳定性较低. 有研究表明,光伏建设降低了原有土壤微生物共现网络的模块度,且网络中正反馈作用增强,负相关交互效应减少,削弱了生态系统稳定性[18],这与本研究结果类似. 真菌网络与细菌网络的表现截然不同[图 7(b)]. RC处理组较CK平均聚类系数与模块度下降,平均路径距离增加,表明复垦使网络结构更加松散,稳定性下降,可通过复垦时人工接种关键共生真菌或增加植物多样性等方式为不同类型的真菌创造多样化的生态位,优化复垦真菌网络. 相比RC,GF与BF更加稳定的真菌网络结构提升了生态系统的抗扰动能力. 此外,在微生物共现网络分析中,细菌网络整体上比真菌网络更复杂,连接度更高,但真菌网络呈现出较高的网络密度与平均聚类系数(表 2),反映出其节点间连接更为紧密、模块化程度较高,即真菌类群间可能通过较短的路径实现能量与信息的高效传递[50].
3.3 光伏建设对复垦土壤微生物群落组装过程的影响确定性过程与随机性过程共同驱动微生物群落的组装[28,51],二者并非相互排斥,而是共同调控群落组装[52],但二者在不同环境条件下的相对重要性存在差异. 揭示微生物群落组装机制及其对时空尺度的响应仍具有重要意义[28]. 本研究发现,各处理组细菌群落
(1)与未铺设光伏复垦区相比,光伏建设增加了表层土壤pH值以及NH4+-N和NO3--N含量,降低了土壤SOC和AP含量,光伏板下TN含量降低,光伏板之间通道TN含量则无明显差异.
(2)复垦及光伏建设对细菌群落多样性影响显著. 与CK相比,复垦显著增加了细菌群落丰富度. 与RC相比,光伏建设降低了土壤细菌群落丰富度和多样性,其中GF处理组变化更为显著,但对真菌群落丰富度和多样性无显著影响. 不同处理组优势菌群在门水平上无显著性差异,在目水平上存在显著性差异. 细菌群落优势菌门为放线菌门、酸杆菌门、变形菌门和绿弯菌门,真菌优势菌门为子囊菌门和担子菌门.
(3)与CK相比,RC处理组细菌网络更加高效稳定;与RC相比,GF处理组细菌网络“多而杂”,说明光伏板下可能因其引入的冗余复杂连接,降低了网络结构的高效性与抗干扰能力;BF处理组网络复杂性较高,但稳定性较低. 真菌网络与细菌网络的表现截然不同,相比CK,RC处理组真菌网络稳定性下降;相比RC,光伏建设使真菌网络更加稳定. 整体来看,细菌网络表现出比真菌网络更高的复杂性和连接度,但真菌网络节点间连接更为紧密、模块化程度较高,可能通过较短路径实现能量与信息高效传递.
(4)各处理组细菌组装过程均由随机性过程主导,且随机性过程主要为不明确过程. 所有真菌群落由随机性过程主导,CK与GF处理组随机性过程主要为不明确过程,RC与BF处理组随机性过程主要为扩散限制. 土壤环境条件的变化通过调控确定性过程与随机性过程,影响微生物群落组装过程,因此,可以通过定向干预操纵群落组装,优化其特定生态系统功能,助力矿区生态恢复与生物多样性保护工作.
| [1] |
武强, 高俊莲, 曾一凡, 等. 黄河流域煤矿矿井水资源保护与利用战略研究[J]. 煤炭学报, 2026, 51(1): 93-111. Wu Q, Gao J L, Zeng Y F, et al. Strategic research on mine water resource protection and utilization in coal mines of the Yellow River Basin[J]. Journal of China Coal Society, 2026, 51(1): 93-111. |
| [2] | Huang J P, Yu H P, Han D L, et al. Declines in global ecological security under climate change[J]. Ecological Indicators, 2020, 117. DOI:10.1016/j.ecolind.2020.106651 |
| [3] |
刘明明. "双碳"目标下可再生能源发展规划实施的用地困境及其纾解[J]. 中国人口·资源与环境, 2022, 32(12): 21-30. Liu M M. Land use dilemmas of implementing renewable energy development plans under the 'dual carbon' goals and their countermeasures[J]. China Population, Resources and Environment, 2022, 32(12): 21-30. |
| [4] | Bao Z W, Ptacek C J, Blowes D W. Extracting resources from abandoned mines[J]. Science, 2023, 381(6659): 731-732. DOI:10.1126/science.abn5962 |
| [5] | Oakleaf J R, Kennedy C M, Baruch-Mordo S, et al. Mapping global development potential for renewable energy, fossil fuels, mining and agriculture sectors[J]. Scientific Data, 2019, 6(1). DOI:10.1038/s41597-019-0084-8 |
| [6] | Strazzabosco A, Gruenhagen J H, Cox S. A review of renewable energy practices in the Australian mining industry[J]. Renewable Energy, 2022, 187: 135-143. DOI:10.1016/j.renene.2022.01.021 |
| [7] | Bhimaraju A, Mahesh A, Nirbheram J S. Feasibility study of solar photovoltaic/grid-connected hybrid renewable energy system with pumped storage hydropower system using abandoned open cast coal mine: a case study in India[J]. Journal of Energy Storage, 2023, 72. DOI:10.1016/j.est.2023.108206 |
| [8] | Fierer N. Embracing the unknown: disentangling the complexities of the soil microbiome[J]. Nature Reviews Microbiology, 2017, 15(10): 579-590. DOI:10.1038/nrmicro.2017.87 |
| [9] |
马静, 卢永强, 张琦, 等. 黄土高原采煤沉陷对土壤微生物群落的影响[J]. 土壤学报, 2021, 58(5): 1278-1288. Ma J, Lu Y Q, Zhang Q, et al. Effects of coal mining subsidence on soil microbial community in the Loess Plateau[J]. Acta Pedologica Sinica, 2021, 58(5): 1278-1288. |
| [10] | Choi C S, Cagle A E, Macknick J, et al. Effects of revegetation on soil physical and chemical properties in solar photovoltaic infrastructure[J]. Frontiers in Environmental Science, 2020, 8. DOI:10.3389/fenvs.2020.00140 |
| [11] |
乔慧, 蒙仲举. 荒漠光伏电站对地表土壤机械组成分布的影响[J]. 绿色科技, 2023, 25(8): 11-16. Qiao H, Meng Z J. Effects of desert photovoltaic power stations on the distribution of surface soil mechanical composition[J]. Journal of Green Science and Technology, 2023, 25(8): 11-16. |
| [12] |
王涛, 王得祥, 郭廷栋, 等. 光伏电站建设对土壤和植被的影响[J]. 水土保持研究, 2016, 23(3): 90-94. Wang T, Wang D X, Guo T D, et al. The impact of photovoltaic power construction on soil and vegetation[J]. Research of Soil and Water Conservation, 2016, 23(3): 90-94. |
| [13] | Grodsky S M, Hernandez R R. Reduced ecosystem services of desert plants from ground-mounted solar energy development[J]. Nature Sustainability, 2020, 3(12): 1036-1043. DOI:10.1038/s41893-020-0574-x |
| [14] |
张雅琪, 陈林, 庞丹波, 等. 土壤微生物群落对枯落物输入的响应[J]. 应用生态学报, 2022, 33(11): 2943-2953. Zhang Y Q, Chen L, Pang D B, et al. Responses of soil microbial community structure to litter inputs[J]. Chinese Journal of Applied Ecology, 2022, 33(11): 2943-2953. |
| [15] |
刘坤, 王波, 张发国, 等. 光伏电站建设的生态效应: 光伏治沙研究进展与展望[J]. 中国沙漠, 2025, 45(1): 277-291. Liu K, Wang B, Zhang F G, et al. Ecological effects of photovoltaic power station construction: retrospect and prospect on photovoltaic desertification control[J]. Journal of Desert Research, 2025, 45(1): 277-291. |
| [16] | Shi Y, Zhang K P, Li Q, et al. Interannual climate variability and altered precipitation influence the soil microbial community structure in a Tibetan Plateau grassland[J]. Science of the Total Environment, 2020, 714. DOI:10.1016/j.scitotenv.2020.136794 |
| [17] |
孙文倩, 楚彬, 叶国辉, 等. 光伏发电站对高寒草甸土壤细菌群落组成及多样性的影响研究[J]. 草地学报, 2025, 33(2): 440-450. Sun W Q, Chu B, Ye G H, et al. Effects of photovoltaic power station on soil bacterial community composition and diversity in alpine meadow[J]. Acta Agrestia Sinica, 2025, 33(2): 440-450. |
| [18] |
丁成翔, 刘禹. 光伏园区建设对青藏高原高寒荒漠草地土壤原核微生物群落的影响[J]. 草地学报, 2021, 29(5): 1061-1069. Ding C X, Liu Y. Effects of solar photovoltaic park construction on soil microbial community in alpine desert of Qinghai Tibet Plateau[J]. Acta Agrestia Sinica, 2021, 29(5): 1061-1069. |
| [19] |
王逸飞, 王鑫厅, 何瑞敏, 等. 光伏系统对典型草原露天煤矿排土场生态修复效果的影响[J]. 内蒙古大学学报(自然科学版), 2025, 56(5): 496-505. Wang Y F, Wang X T, He R M, et al. Influence of photovoltaic systems of ecological restoration at a typical grassland open-pit coal mine dumping site[J]. Journal of Inner Mongolia University (Natural Science Edition), 2025, 56(5): 496-505. |
| [20] |
贺龙, 李艳琴, 李彬春, 等. 矿区不同植被复垦模式对土壤细菌群落结构的影响[J]. 环境科学, 2017, 38(2): 752-759. He L, Li Y Q, Li B C, et al. Effects of different vegetation types and reclamation years on soil bacterial community structure in reclaimed mine areas[J]. Environmental Science, 2017, 38(2): 752-759. DOI:10.13227/j.hjkx.201607200 |
| [21] |
赵姣, 马静, 朱燕峰, 等. 植被类型对黄土高原露采矿山复垦土壤碳循环功能基因的影响[J]. 环境科学, 2023, 44(6): 3386-3395. Zhao J, Ma J, Zhu Y F, et al. Effects of vegetation types on carbon cycle functional genes in reclaimed soil from open pit mines in the Loess Plateau[J]. Environmental Science, 2023, 44(6): 3386-3395. DOI:10.13227/j.hjkx.202206219 |
| [22] |
宁岳伟, 刘勇, 张红, 等. 煤矿矿区复垦植被类型对土壤微生物功能基因和酶活的影响[J]. 环境科学, 2022, 43(9): 4647-4654. Ning Y W, Liu Y, Zhang H, et al. Effects of different vegetation types on soil microbial functional genes and enzyme activities in reclaimed coal mine[J]. Environmental Science, 2022, 43(9): 4647-4654. DOI:10.13227/j.hjkx.202111139 |
| [23] | Xiao E Z, Ning Z P, Xiao T F, et al. Soil bacterial community functions and distribution after mining disturbance[J]. Soil Biology and Biochemistry, 2021, 157. DOI:10.1016/j.soilbio.2021.108232 |
| [24] |
李子旭, 李建华, 张强, 等. 不同复垦措施下土壤微生物群落的响应及组装过程[J]. 环境科学, 2024, 45(12): 7326-7336. Li Z X, Li J H, Zhang Q, et al. Response and assembly process of soil microbial communities under different reclamation measures[J]. Environmental Science, 2024, 45(12): 7326-7336. DOI:10.13227/j.hjkx.202312247 |
| [25] |
田政卿, 张勇, 刘向, 等. 光伏电站建设对陆地生态环境的影响: 研究进展与展望[J]. 环境科学, 2024, 45(1): 239-247. Tian Z Q, Zhang Y, Liu X, et al. Effects of photovoltaic power station construction on terrestrial environment: retrospect and prospect[J]. Environmental Science, 2024, 45(1): 239-247. DOI:10.13227/j.hjkx.202301152 |
| [26] |
范立民, 马万超, 常波峰, 等. 榆神府矿区地下水水化学特征及形成机理[J]. 煤炭科学技术, 2023, 51(1): 383-394. Fan L M, Ma W C, Chang B F, et al. Hydrochemical characteristics and formation mechanism of groundwater in Yushenfu Mining Area[J]. Coal Science and Technology, 2023, 51(1): 383-394. |
| [27] |
杜华栋, 曹祎晨, 聂文杰, 等. 黄土沟壑区采煤塌陷地人工与自然植被恢复下土壤性质演变特征[J]. 煤炭学报, 2021, 46(5): 1641-1649. Du H D, Cao Y C, Nie W J, et al. Evolution of soil properties under artificial and natural revegetation in loess gully coal mining subsidence area[J]. Journal of China Coal Society, 2021, 46(5): 1641-1649. |
| [28] | Zhou J Z, Ning D L. Stochastic community assembly: does it matter in microbial ecology?[J]. Microbiology and Molecular Biology Reviews, 2017, 81(4). DOI:10.1128/MMBR.00002-17 |
| [29] | Meng C, Tian D S, Zeng H, et al. Global soil acidification impacts on belowground processes[J]. Environmental Research Letters, 2019, 14(7). DOI:10.1088/1748-9326/ab239c |
| [30] | Armstrong A, Ostle N J, Whitaker J. Solar park microclimate and vegetation management effects on grassland carbon cycling[J]. Environmental Research Letters, 2016, 11(7). DOI:10.1088/1748-9326/11/7/074016 |
| [31] | Choi C S, Macknick J, Li Y D, et al. Environmental co‐benefits of maintaining native vegetation with solar photovoltaic infrastructure[J]. Earth's Future, 2023, 11(6). DOI:10.1029/2023EF003542 |
| [32] |
石质坚, 李厚春, 樊骐瑞, 等. 西山矿区油松复垦林土壤细菌群落构建机制的演变[J]. 环境科学, 2026, 47(5): 3521-3528. Shi Z J, Li H C, Fan Q R, et al. Evolution of soil bacterial community assembly mechanisms in reclaimed Pinus tabuliformis forests of Xishan Mining Area[J]. Environmental Science, 2026, 47(5): 3521-3528. DOI:10.13227/j.hjkx.202503298 |
| [33] | Li H Y, Qiu Y Z, Yao T, et al. Nutrients available in the soil regulate the changes of soil microbial community alongside degradation of alpine meadows in the northeast of the Qinghai-Tibet Plateau[J]. Science of the Total Environment, 2021, 792. DOI:10.1016/j.scitotenv.2021.148363 |
| [34] |
马静, 董文雪, 朱燕峰, 等. 东部平原矿区复垦土壤微生物群落特征及其组装过程[J]. 环境科学, 2022, 43(7): 3844-3853. Ma J, Dong W X, Zhu Y F, et al. Characteristics and assembly process of reclaimed soil microbial communities in eastern plain mining areas[J]. Environmental Science, 2022, 43(7): 3844-3853. DOI:10.13227/j.hjkx.202110018 |
| [35] | De Vries F T, Griffiths R I, Bailey M, et al. Soil bacterial networks are less stable under drought than fungal networks[J]. Nature Communications, 2018, 9(1). DOI:10.1038/s41467-018-05516-7 |
| [36] | Guo Y N, Liu X H, Tsolmon B, et al. The influence of transplanted trees on soil microbial diversity in coal mine subsidence areas in the Loess Plateau of China[J]. Global Ecology and Conservation, 2020, 21. DOI:10.1016/j.gecco.2019.e00877 |
| [37] |
杨永均, 赵姣, 马静, 等. 露采矿山复绿对土壤微生物群落及其组装过程的影响[J]. 煤炭学报, 2023, 48(4): 1661-1672. Yang Y J, Zhao J, Ma J, et al. Impacts of regreening on soil microbial community and its assembly process in open-pit mining area of the Loess Plateau[J]. Journal of China Coal Society, 2023, 48(4): 1661-1672. |
| [38] | Kurm V, Van Der Putten W H, De Boer W, et al. Low abundant soil bacteria can be metabolically versatile and fast growing[J]. Ecology, 2017, 98(2): 555-564. DOI:10.1002/ecy.1670 |
| [39] | Challacombe J F, Hesse C N, Bramer L M, et al. Genomes and secretomes of Ascomycota fungi reveal diverse functions in plant biomass decomposition and pathogenesis[J]. BMC Genomics, 2019, 20(1). DOI:10.1186/s12864-019-6358-x |
| [40] | Zhong Z K, Li W J, Lu X Q, et al. Adaptive pathways of soil microorganisms to stoichiometric imbalances regulate microbial respiration following afforestation in the Loess Plateau, China[J]. Soil Biology and Biochemistry, 2020, 151. DOI:10.1016/j.soilbio.2020.108048 |
| [41] |
董文雪, 马静, 何环, 等. 黄淮平原矿区土地复垦对微生物群落结构和功能的影响[J]. 煤炭科学技术, 2023, 51(11): 223-233. Dong W X, Ma J, He H, et al. Effects of land reclamation on soil microbial community structure and function in the Huang-Huai Plain Mining Area[J]. Coal Science and Technology, 2023, 51(11): 223-233. |
| [42] |
秦家凤, 李阳, 刘广全, 等. 煤矿复垦区不同恢复年限沙棘人工林土壤真菌群落特征[J]. 土壤通报, 2022, 53(6): 1413-1420. Qin J F, Li Y, Liu G Q, et al. Soil fungal community characteristics of seabuckthorn plantation with different restoration years in coal mine reclamation area[J]. Chinese Journal of Soil Science, 2022, 53(6): 1413-1420. |
| [43] |
冯志荣, 陈有城, 彭艳琼, 等. 生态网络分析: 从集合群落到集合网络[J]. 生物多样性, 2023, 31(8). Feng Z R, Chen Y C, Peng Y Q, et al. Ecological network analysis: from metacommunity to metanetwork[J]. Biodiversity Science, 2023, 31(8). DOI:10.17520/biods.2023171 |
| [44] | Negrello‐Oliveira H, Tovar‐Marquez J, Júnior M D S M. Across the edge: spatial segregation drives community structure in tri‐trophic multilayer networks at a forest–grassland edge[J]. Journal of Animal Ecology, 2025, 94(11): 2205-2219. DOI:10.1111/1365-2656.70120 |
| [45] | Chen C, Wang X W, Liu Y Y. Stability of ecological systems: a theoretical review[J]. Physics Reports, 2024, 1088: 1-41. |
| [46] | Wan Y Y, Zhao F, Li L Z, et al. Complex seafloor topography promotes ciliate population expansion but maintains high community similarity and stability in the deep sea[J]. Water Biology and Security, 2025. DOI:10.1016/j.watbs.2025.100459 |
| [47] |
张世文, 蔡慧珍, 张燕海, 等. 煤矿区土壤细菌群落结构及其对不同复垦模式的响应[J]. 煤炭科学技术, 2024, 52(2): 338-349. Zhang S W, Cai H Z, Zhang Y H, et al. Soil bacterial community structure in coal mining area and its response to different reclamation patterns[J]. Coal Science and Technology, 2024, 52(2): 338-349. |
| [48] |
赵博礼. 渔光一体模式中环境微生物群落结构及多样性的研究[D]. 武汉: 华中农业大学, 2019. Zhao B L. Study on community structure and diversity of environmental microbial in the photovoltaic fishery mode[D]. Wuhan: Huazhong Agricultural University, 2019. |
| [49] |
李冰, 李玉双, 魏建兵, 等. 不同土地利用方式对土壤细菌分子生态网络的影响[J]. 环境科学, 2020, 41(3): 1456-1465. Li B, Li Y S, Wei J B, et al. Effects of different land use typess on the molecular ecological network of soil bacteria[J]. Environmental Science, 2020, 41(3): 1456-1465. DOI:10.13227/j.hjkx.201907179 |
| [50] | Wei Y X, Chen L J, Yin Z L, et al. Differences in soil fungal communities under salinity gradients in arid and semiarid regions[J]. Global and Planetary Change, 2024, 236. DOI:10.1016/j.gloplacha.2024.104425 |
| [51] | Mori A S, Isbell F, Seidl R. β-diversity, community assembly, and ecosystem functioning[J]. Trends in Ecology & Evolution, 2018, 33(7): 549-564. |
| [52] | Egidi E, Delgado-Baquerizo M, Plett J M, et al. A few Ascomycota taxa dominate soil fungal communities worldwide[J]. Nature Communications, 2019, 10(1). DOI:10.1038/s41467-019-10373-z |
| [53] | Fukami T. Historical contingency in community assembly: integrating niches, species pools, and priority effects[J]. Annual Review of Ecology, Evolution, and Systematics, 2015, 46(1): 1-23. DOI:10.1146/annurev-ecolsys-110411-160340 |
| [54] | Wagg C, Schlaeppi K, Banerjee S, et al. Fungal-bacterial diversity and microbiome complexity predict ecosystem functioning[J]. Nature Communications, 2019, 10(1). DOI:10.1038/s41467-019-12798-y |
| [55] |
高英旭. 海州露天煤矿排土场复垦区植物根系分布特征研究[J]. 干旱区资源与环境, 2019, 33(4): 124-128. Gao Y X. Plant roots distribution characteristics in the dump reclamation area of Haizhou open pit coal mining[J]. Journal of Arid Land Resources and Environment, 2019, 33(4): 124-128. |
| [56] | Ning D L, Deng Y, Tiedje J M, et al. A general framework for quantitatively assessing ecological stochasticity[J]. Proceedings of the National Academy of Sciences of the United States of America, 2019, 116(34): 16892-16898. |
| [57] | Araujo R, Gupta V V S R, Reith F, et al. Biogeography and emerging significance of Actinobacteria in Australia and Northern Antarctica soils[J]. Soil Biology and Biochemistry, 2020, 146. DOI:10.1016/j.soilbio.2020.107805 |
| [58] |
毕银丽, 彭苏萍, 王淑惠. 西部煤矿区深色有隔内生真菌修复机理与生态应用模式[J]. 煤炭学报, 2022, 47(1): 460-469. Bi Y L, Peng S P, Wang S H. Restoration mechanism and ecological application model of dark septate endophytic fungi in western mining area[J]. Journal of China Coal Society, 2022, 47(1): 460-469. |