 2026, Vol. 47


2. 山西省林业和草原科学研究院,太原 030012;
3. 山西五台山山地草甸生态系统定位观测研究站,五台 035515
2. Shanxi Academy of Forestry and Grassland Sciences, Taiyuan 030012, China;
3. Wutai Mountain Alpine Meadow Ecosystem Research Station, Wutai 035515, China
据IPCC第六次评估报告,1880~2012年间全球地表温度已上升0.85 ℃[1],持续变暖趋势进一步加剧了高温、干旱和暴雨等极端气候事件的频次与强度. 以上变化与人类活动及经济增长间的矛盾日益尖锐,推动“碳-水耦合危机”成为生态学研究的前沿[2]. 在此背景下,生态系统水分利用效率[WUE,即净初级生产力(NPP)与蒸散发(ET)的比值]作为衡量陆地生态系统碳-水交换平衡的关键指标[3],受到广泛关注. WUE反映了植被单位耗水所固定的碳量[4],深入理解其动态变化,不仅有助于揭示碳-水循环的耦合机制,也为应对气候变化、优化水资源管理与制定区域生态适应策略提供关键科学依据.
WUE受气候、生物、地形及人类活动等多因子交互影响,表现出复杂的时空异质性. 例如,崔秋利[5]发现2001~2017年京津冀地区WUE呈线性增长,而Sun等[6]指出1979~2012年全国WUE变化存在显著空间分异,东北、西南和东部地区普遍上升,西部则呈下降趋势. 这种区域差异主要源于水热配置、植被动态与人类干预强度的不均衡性[6,7]. 值得注意的是,气候因子对WUE常呈非线性影响:温度超过植被适宜阈值后,蒸腾增幅会超越光合增益,导致WUE下降;适度降水有助于提升WUE,但持续强降水可能因土壤缺氧抑制根系活力而降低WUE[8]. 同时,植被结构参数(如叶面积指数LAI)作为植物生理状态的表征,与WUE密切相关,是重要的预测指标[9]. 人类活动通过改变植被覆盖与土地利用方式,进一步加剧了WUE空间格局的复杂性[10,11].
目前,WUE驱动机制研究多依赖于相关分析、线性回归等传统统计方法,难以解析变量间的复杂非线性关系与交互效应. 梯度提升决策树(XGBoost)等机器学习算法虽在预测性能上优势显著[12],但其“黑箱”特性限制了机制阐释的深度. SHAP(SHapley Additive exPlanations)解释框架基于合作博弈论,能够量化特征变量的边际贡献,实现全局重要性排序与局部归因分析,为理解地理要素的空间分异提供了新途径[13]. 然而,XGBoost-SHAP组合技术在WUE影响因素解析方面的系统应用仍鲜有报道.
黄土高原作为典型的生态脆弱区与重大生态工程实施区,其自然环境梯度显著. 依据气候-植被-地貌”综合分区方案[14],区内水热条件由东南(降水 > 550 mm,年均温12 ℃)向西北(降水 < 350 mm,年均温4 ℃)递减,植被类型相应从森林草原过渡为荒漠草原[15],叠加沟壑且塬梁等复杂地形,形成了独特的生态地理格局. 退耕还林还草等工程实施以来,区域呈现暖湿化趋势,同时各生态分区的工程实施模式与恢复成效也存在显著差异[16]. 现有研究多探讨黄土高原不同植被类型或不同省份WUE的时空变化及影响因子[17~19],而从生态分区视角系统比较其演变规律及环境响应机制的研究尚属空白. 为此,本研究基于2000~2023年多源数据,结合生物、土壤、地形、气候和人类活动等5类环境因子,应用Sen-MK趋势分析、Hurst指数与XGBoost-SHAP模型,系统探究黄土高原及各生态分区WUE的时空演变特征及驱动机制. 本研究揭示不同分区WUE对环境变量响应的差异性与阈值效应,旨在为深化理解区域碳-水耦合过程、优化生态恢复策略提供科学依据.
1 材料与方法 1.1 研究区概况黄土高原的地理坐标为33°41′~41°16′N,100°52′~114°33′E,是我国重要的生态过渡带,涵盖黄河中游流域,横跨青海、甘肃和宁夏等7个省区,总面积约6.4×10⁵ km2,占我国陆地总面积的6.7%[20]. 该区为典型的温带大陆性季风气候,自南向北从暖温带逐渐过渡到中温带,气候类型介于半湿润与半干旱之间[21];地形复杂,主要由丘陵、高塬和平原组成,其中山区和丘陵区占总面积的2/3以上. 植被覆盖呈现明显的经向分异规律,东南部以森林草原为优势植被类型,随着经度增加逐渐演替为草原和半荒漠草原[15]. 依据现有生态区划研究[14],黄土高原主要包括四大生态区:高塬沟壑区(A)、丘陵沟壑区(B)、沙地农灌区(C)和土石山及河谷平原区(D),其中,A区和B区分别以六盘山和毛乌素沙地南缘为界,又分为A1和A2副区、B1和B2副区(图 1).

|
A:黄土高塬沟壑区,A1:黄土高塬沟壑区A1副区,A2:黄土高塬沟壑区A2副区;B:黄土丘陵沟壑区,B1:黄土丘陵沟壑区B1副区,B2:黄土丘陵沟壑区B2副区;C:沙地和农灌区;D:土石山区及河谷平原区(下同) 图 1 研究区高程示意 Fig. 1 Elevation of the study area |
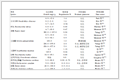
NPP、ET、生物、气候、地形、土壤因子和人类活动强度数据的时空分辨率和数据来源详见表 1. 所有空间数据均采用WGS 1984地理坐标系进行投影转换,空间分辨率统一为1 km.
|
表 1 数据来源1) Table 1 Data sources |
1.3 研究方法 1.3.1 WUE的计算
WUE采用该领域广泛使用的定义进行计算[g·(m2·mm·a)-1],其计算公式如下[24]:
| (1) |
式中,NPP(以C计)为净初级生产力,单位为g·(m2·a)-1,代表生态系统的净碳收益;ET年均为蒸散发,单位为mm,代表生态系统消耗的水分成本.
WUE的核心生态学含义是生态系统每消耗一单位水量所能产生的有机碳量,直接量化了生态系统碳同化过程的水分利用能力[25]. 这一综合指标基于植物叶片尺度水碳耦合(即光合作用与蒸腾作用)的原理,被扩展应用于生态系统尺度,并因其概念的清晰性与数据的可获得性,已成为全球变化生态学研究中的常用标准指标.
1.3.2 变化趋势分析采用Theil-Sen中值趋势分析方法探讨黄土高原WUE的年际变化趋势,计算公式如下:
| (2) |
式中,β > 0和β < 0分别表示WUE呈增加和减少趋势,
采用Mann-Kendall检验评估WUE变化趋势的显著性. 当检验统计量Z > 0表明呈上升趋势;Z < 0则为下降趋势;其中
| (3) |
式中,
| (4) |
其中,
| (5) |
使用检验统计量Z进行检验,计算公式如下:
| (6) |
采用Hurst指数(基于R/S法)分析WUE在未来变化趋势的可持续性[26,27],为区域水资源管理和生态恢复提供未来趋势预测依据. 定义时间序列WUE(i),i=1,2,…,n,m为任意正整数,则具体公式如下.
均值序列为:
| (7) |
累计离差序列为:
| (8) |
极差R(m)和标准差S(m)为:
| (9) |
| $ \begin{array}{l} S(m)=\left[\frac{1}{m} \sum\limits_{i=1}^m[\mathrm{WUE}(t)-\overline{\mathrm{WUE}(m)}]^2\right]^{\frac{1}{2}} \\ \quad\quad (m=1,2, \cdots, n) \end{array} $ | (10) |
Hurst指数的计算公式为:
| (11) |
为量化黄土高原WUE变化的各影响因子贡献度,并解析不同因子间的交互作用,本研究采用可解释机器学习方法,构建XGBoost模型,同时结合SHAP重要性算法开展分析. XGBoost是一种集成了树模型与线性模型优势的优化算法,能够有效刻画多个特征与WUE之间的复杂非线性关系,并具有训练速度快、抗过拟合能力强等优点,被广泛应用于回归与分类问题[28]. 然而,XGBoost模型自身可解释性较差,虽可评估变量的整体重要性,却难以揭示变量变化对WUE影响的具体路径[29].
为克服这一局限,在模型训练完成后引入SHAP框架. SHAP值基于合作博弈论,不仅可分解每个影响因子对最终预测结果的独立影响以增强模型可解释性[13],还能通过变量间的关联分析捕捉交互效应. 二者结合,既实现了各预测变量对WUE贡献的精准量化,又为解析变量间交互作用机制提供了支撑. 假设第i个目标变量的第j个预测变量为xij,第i个目标变量的模型预测值为yi,所有目标变量预测值的平均值为基准值(ybase),则SHAP值服从如下公式[28]:
| (12) |
式中,
基于训练完成的XGBoost模型(以WUE为目标变量、影响因子为预测变量),通过SHAP重要性算法(每个预测变量的SHAP值的绝对平均值)对影响因子的重要性进行排序,确定主要影响因子后利用SHAP值分析其对WUE的影响及其交互效应. 模型构建依托Python 3.9环境,使用scikit-learn库的XGBoost模块进行算法训练;SHAP值的计算与可视化通过shap包实现,保证了分析过程的可重复性与解释性[30].
2 结果与分析 2.1 黄土高原WUE、NPP及ET的年际变化2000~2023年整个黄土高原WUE(以C计,下同)变化范围为0.68~0.84 g·(m2·mm·a)-1,呈显著增长趋势(P < 0.05),增长速率为0.003 g·(m2·mm·a)-1[图 2(a)]. 6个生态分区的年均WUE均呈增长趋势,但增长速度有明显的差异. B区年增长速率最高为0.007 g·(m2·mm·a)-1,D区和A1副区最低为0.001 g·(m2·mm·a)-1. 与整个黄土高原相比,B1、B2和C区WUE的年增长速率分别高0.004、0.004和0.001 g·(m2·mm·a)-1,而A1、A2和D区的年增长速率分别低0.002、0.001和0.002 g·(m2·mm·a)-1[图 3(a)].

|
图 2 2000~2023年黄土高原WUE、NPP与ET的年际变化趋势 Fig. 2 Interannual variation trends of WUE, NPP, and ET in the Loess Plateau from 2000 to 2023 |

|
图 3 2000~2023年不同生态分区WUE、NPP与ET的年际动态变化 Fig. 3 Interannual dynamic variations of WUE, NPP, and ET in different ecological zones of the Loess Plateau from 2000 to 2023 |
2000~2023年黄土高原NPP(以C计,下同)变化范围为200.21~371.87 g·(m2·a)-1,整体呈显著增长趋势(P < 0.05),增速达6.07 g·(m2·a)-1[图 2(b)]. 6个生态分区的NPP均持续增加,但增速差异显著:其中A2副区增长最快为8.96 g·(m2·a)-1,而C区增速最缓,为2.61 g·(m2·a)-1[图 3(b)]. 同期,区域年均ET表现为280.61~449.87 mm的动态变化,呈现显著上升趋势(P < 0.05),年均增速为6.35 mm[图 2(c)]. 各生态分区年均ET的变化趋势与NPP一致,其中A2副区增速最高为9.21 mm,C区最低为2.76 mm[图 3(c)]. 这表明植被生产力的提升与蒸散发的增强密切相关,反映了植被生长与水分消耗的协同变化特征.
2.2 黄土高原WUE空间格局及其变化黄土高原WUE的空间分异特征明显,表现为东南高、西北低的格局(图 4). 高值[ > 1.20 g·(m2·mm·a)-1]零散分布在D区和A2副区,如平凉市、宝鸡市、天水市、咸阳市和长治市等地,而低值区[0.03~0.60 g·(m2·mm·a)-1],则主要分布在C区北部和A区北部,如鄂尔多斯市、白银市、吴忠市和中卫市等地区. 不同生态分区的WUE均值有明显的差异,从高到低依次为:D区(0.94) > A2副区(0.87) > B2副区(0.84) > B1副区(0.83) > A1副区(0.69) > C区(0.65)[单位:g·(m2·mm·a)-1].

|
图 4 2000~2023年黄土高原及不同生态分区WUE的空间分布特征 Fig. 4 Spatial distribution characteristics of WUE in the Loess Plateau and its different ecological zones from 2000 to 2023 |
2000~2023年,1 km像元尺度黄土高原WUE的线性变化趋势为-0.062~0.038 g·(m2·mm·a)-1(图 5),74.11%的区域WUE呈增加趋势,其中41.42%的区域通过了显著性检验(P < 0.05);而25.89%的区域WUE呈减少趋势,主要分布在D区、A2副区的南部和零散分布在C区,如山西省的吕梁市和甘肃省的平凉市、天水市等地,仅7.26%的区域通过了显著性检验(P < 0.05). 对于WUE变化趋势,改善最多的B1副区,面积占比为93.71%,退化最严重的是D区,面积占比为37.78%(表 2).

|
图 5 2000~2023年黄土高原WUE的变化情况 Fig. 5 Variation of WUE in the Loess Plateau from 2000 to 2023 |
|
|
表 2 WUE变化趋势分级及不同生态分区变化面积/% Table 2 Grading of WUE variation trend and variation area in different ecological zones/% |
黄土高原WUE的Hurst指数均值为0.44,其中78.33%的区域Hurst指数小于0.50,主要分布在C区、D区及B2副区,表明以上区域的WUE增长趋势在未来可能发生逆转,存在潜在的生态退化风险(图 6). 相比之下,Hurst指数大于0.50的区域(0.50~0.65及 > 0.65)占比为21.64%,零散分布于A区、B1副区和C区,预示未来WUE可能持续增强或保持稳定,具有长期持续性.

|
图 6 黄土高原WUE的Hurst指数 Fig. 6 Hurst index of WUE in the Loess Plateau |
相关分析表明,黄土高原全区WUE的年际变化与生物因子(LAI、kNDVI和SIF,P < 0.01)和人类活动(HA,P < 0.05)呈显著正相关,与气候因子(SR、P和T)相关性均不显著(P > 0.05),表明生物因子和人类活动强度是影响全区WUE变化的核心驱动因子(表 3).
|
|
表 3 WUE与环境因子的相关系数1) Table 3 Correlation coefficients between WUE and environmental factors |
从区域差异看,生物因子和人类活动的主导作用存在空间分异(表 3、图 7和图 8):除A1副区外,多数分区与生物因子呈显著正相关(B1、B2和C区与3个生物因子均显著相关,A2、D区分别与2个、1个生物因子显著相关);1 km尺度进一步显示,LAI、kNDVI和SIF与WUE的正相关区域占比均超78.16%,影响强度呈现从西北向东南由正转负的空间分异特征,负相关集中于D区及A区南部. HA与WUE的正相关区域占比为55.43%,相关系数表现为B副区1(0.76**) > B2副区(0.71**) > D区(0.41*) > C区(0.40*)(**和*分别表示P < 0.01和P < 0.05),A区相关性较弱(A2:0.23;A1:-0.07),提示西南部影响较弱、其他区域影响显著.

|
图 7 黄土高原WUE的年际变化与环境因子年际变化的相关系数 Fig. 7 Correlation coefficients between the interannual variations of WUE and environmental factors on the Loess Plateau |

|
图 8 不同生态分区WUE的年际变化与环境因子年际变化的相关性统计结果 Fig. 8 Statistical results of the correlation between the interannual variation of WUE and that of environmental factors in different ecological zones |
气候因子的影响同样存在区域差异性(表 3、图 7和图 8). P的影响呈现明显的西北-东南分异特征:西北较干旱的B区和C区的WUE与P呈正相关,而东南水热条件较好的D区和A区南部呈负相关,全区78.59%的区域为正相关. T以正向影响为主,全区59.63%的区域呈正相关,主要分布在A2副区南部、B区和D区南部,且北部相关性大于南部,仅A1副区有61.65%的区域呈负相关. LST的影响中,仅B2副区呈显著正相关,其余区域多为负相关,全区负相关占比达51.72%. SR的显著影响集中在北部,B1副区和C区的WUE与SR呈显著正相关,1 km尺度下80.08%的正相关区域主要分布于B区和C区,而南部及其他区域影响较弱. 整体来看,气候因子对WUE年际变化的影响呈现出复杂的空间格局.
2.3.2 驱动因子对黄土高原WUE空间分异性的影响驱动因子分析表明,LAI、SR、kNDVI、ele、SIF和P是影响黄土高原WUE空间分异性的主要驱动因子,其独立解释率依次为28.61%、14.68%、11.56%、7.94%、5.98%和5.59%,累计解释率高达74.36%[图9(a)和9(b)]. 各驱动因子对WUE的影响模式各异[图9(c)~9(h)]. LAI、kNDVI、P和ele表现出明显的阈值效应:当LAI > 1或降水 < 300 mm时,WUE受到抑制;而当kNDVI处于0.15~0.25区间或海拔 > 2 000 m时,则对WUE有促进作用. 相比之下,SIF和SR对WUE的影响关系更为复杂,未表现出单一的阈值特征.

|
(a)SHAP全局解释图,(b)环境因子的重要性排序,(c)~(h)单因子与SHAP值的散点图,虚线为SHAP值为零的线 图 9 多因子对黄土高原WUE的影响特征及贡献分析 Fig. 9 Analysis of the influence characteristics and contribution of multiple factors on WUE in the Loess Plateau |
生物、气候和地形因子对WUE存在协同交互作用. 本研究采用因子交互分析方法,选取对WUE解释力较高的因子作为基础因子,与其他关键因子系统组合. 研究结果表明,仅部分因子组合存在显著交互效应[30]. 如图10(a)和10(b)所示,当kNDVI在0.10~0.30时,SR < 2 900 MJ·m-2对WUE有促进作用;当kNDVI < 0.06时,LAI < 0.80对WUE有抑制作用. 当SIF > 0.08 W·(m2·sr·nm)-1时,SR < 2 800 MJ·m-2对WUE有促进作用[图 10(c)]. 当SR > 2 900 MJ·m-2时,LAI < 0.60对WUE有抑制作用[图 10(d)]. 降水对WUE的影响表现出明显的垂直分散[图10(e)和10(f)]. 如图10(g)~10(i)所示,当1 000 m < ele < 1 600 m左右时,0.05 < kNDVI < 0.20、SR > 2 800 MJ·m-2以及P > 450 mm的地区对WUE有促进作用.

|
(a)kNDVI与SR对WUE的交互作用,(b)kNDVI与LAI对WUE的交互作用,(c)SIF与SR对WUE的交互作用,(d)SR与LAI对WUE的交互作用,(e)P与SIF对WUE的交互作用,(f)P与SR对WUE的交互作用,(g)ele与kNDVI对WUE的交互作用,(h)ele与SR对WUE的交互作用,(i)ele与P对WUE的交互作用;散点表示在产生交互作用的其他因素影响下,横坐标上影响因素对应的SHAP值;色柱表示与横坐标上影响因素产生交互作用的因素取值 图 10 WUE的多因子交互效应 Fig. 10 Multi-factor interaction effect of WUE |
在不同生态分区中,WUE空间变异的主要驱动因子存在明显差异. A1副区的WUE主要受LAI(29.44%)、kNDVI(21.39%)和SR(7.71%)的影响;A2副区则以LAI(27.31%)、kNDVI(15.11%)和SR(11.77%)为主,其次为P(7.70%). B1副区的WUE主要受到LAI(19.17%)、SIF(14.48%)和kNDVI(12.90%)的调控,同时SR(7.99%)和T(6.21%)也起到一定作用. SIF(15.93%)是调控B2副区变异的核心因素,其次是LAI(15.13%)和kNDVI(12.54%),气候因素P(7.30%)和LST(7.07%)对WUE的影响也较大. C区WUE的主导因子包括LAI(21.39%)、kNDVI(21.14%)和T(8.60%),此外,SR(5.64%)和SIF(5.64%)亦有一定贡献. D区WUE主要影响因素为LAI(16.36%)、ele(9.30%)和P(8.79%),并且LST(8.19%)和kNDVI(8.17%)对WUE的影响也较大(图 11). 总体来看,黄土高原及各生态分区WUE空间分异的主导驱动因素为生物与气候因子(解释力较强),而地形、人为活动强度和土壤因子的驱动作用相对有限.

|
图 11 环境因子对各生态分区WUE空间分异的影响 Fig. 11 Influence of various factors on WUE in each ecological zone |
2000~2023年黄土高原全区WUE以0.003 g·(m2·mm·a)-1的速率显著增长(P < 0.05),整体呈波动上升趋势. 这一变化趋势与已有研究结论一致:He等[31]发现的2000~2020年中国陆地生态系统WUE以0.007 g·(m2·mm·a)-1的速率增长,李玉露等[8]揭示黑龙江省近20 a WUE年增长速率为0.002 g·(m2·mm·a)-1这一变化很可能得益于2000年以来我国在黄土高原实施的一系列生态恢复工程——退耕还林、沟壑治理和土地复垦等措施,区域植被覆盖度由0.39提升至0.61[32],水土保持林草及封禁治理面积超过24万km2,为WUE提升奠定了生态基础. 从空间分异来看,黄土高原6个生态分区的WUE均呈增长趋势,但增长速率存在显著差异:B区年增长速率最高,达0.007 g·(m2·mm·a)-1;D区和A1副区增长的最慢,年增长速率仅为0.001 g·(m2·mm·a)-1. 这种区域分异特征主要由年均ET与NPP的相对增长率决定[33]. 具体而言,B区作为植被恢复重点区域,早年因过度放牧和人为破坏形成深峻沟壑,生态系统受损严重[20];近年来通过针对性治理,植被覆盖度显著提升[34],NPP年增长速率超过年均ET的增速,成为推动WUE快速上升的核心动力. 相比之下,D区和A1副区的WUE增长受限于NPP与ET的失衡:以D区为例,其NPP年增速6.61 g·(m2·a)-1小于年均ET(6.87 mm),导致WUE增长缓慢. 尽管D区以林地为主,其优越的水热条件和较充足的太阳辐射使其植被覆盖率较高;但近年来受城镇化进程加快的影响,耕地面积持续扩张,叠加西安、太原等大城市快速发展导致的建设用地侵占,大量耕地被转化为非农业用地,引发植被覆盖度下降,局部区域甚至出现植被退化现象[35],进一步制约了WUE的提升幅度.
相关分析结果显示,黄土高原全区及B区、C区等区域WUE的年际变化与生物因子(LAI、kNDVI和SIF)均呈显著正相关(r > 0.6,P < 0.01),表明植被覆盖度的改善是驱动WUE增长的主导因素. 具体来看,各生物因子的全区年增长速率分别为0.012 a-1(LAI)、0.004 a-1(kNDVI)和0.002 W·(m2·sr·nm·a)-1(SIF). 其中,SIF作为光合作用的直接量化指标,对估算NPP的植被绿度参数高度敏感,其数值升高直接反映光能转化效率的提升[36],使植被在同等蒸散发条件下可固定更多碳(NPP),从而提高WUE. LAI则通过间接调控冠层结构与光合效率影响WUE[37]:较高的LAI不仅能增强冠层光能捕获能力,提高光合有效辐射利用效率以促进碳同化,还能通过优化冠层结构实现光合与蒸腾作用的动态平衡,进一步提升WUE. kNDVI通过核函数优化显著提高了植被监测精度,其非线性特征可更准确反映植被生产力与光合活性[35],进而间接促进WUE提升. 值得注意的是,B1副区中二者显著正相关的面积占比最高,可能该区域具备更高的植被覆盖度恢复潜力[34]. 气候因子对WUE年际变化的影响呈现明显区域分异特征. 在B区和C区,SR对WUE的正效应更为突出(SR > 2 800 MJ·m-2),其作用机制体现在3方面:一是高辐射条件直接提升光合器官的光能利用效率与碳同化能力;二是植被通过形态学适应性调节(如叶面积减小、气孔密度增加和根系构型优化)有效降低水分消耗;三是植物通过精准的气孔开闭调控[38]在维持高光合速率的同时优化蒸腾速率. 这种协同适应机制使植被在单位水分消耗下实现更高碳同化量(NPP/ET比值提升),最终提高WUE. 而P在A区和D区与WUE的年际变化呈负相关,这与区域水热平衡改变密切相关:温度升高与光照增强加剧了植被蒸腾和土壤蒸发,尽管同期降水有所增加,却未能有效补偿土壤水分流失[39];同时,降水增加会通过提高蒸汽压亏缺和大气需水量,改变植被光合与蒸腾耦合关系,导致WUE下降[40,41]. HA的影响同样具有双重性:在B区,得益于梯田建设与灌溉农业发展,人类活动对WUE呈极强正效应(r > 0.7,P < 0.01);而在A1副区,过度放牧导致二者呈负相关. 上述结果凸显了生态管理需实施分区施策策略:北部区域应优先聚焦植被覆盖度提升,南部区域需优化降水资源利用效率,人类活动密集区则需通过节水灌溉等措施平衡WUE提升与生态可持续性目标.
3.2 黄土高原WUE的空间分异性黄土高原WUE的空间分异呈现显著的西北低、东南高梯度特征,这一格局由地形、气候和植被的协同作用共同调控. 受西北高、东南低的地势影响,东南季风携带的水汽受地形抬升作用,形成降水由东南(> 550 mm)向西北(< 350 mm)递减、年均温从12 ℃降至4 ℃的水热梯度,这种水热条件的空间分异直接造就了植被类型的梯度变化(从东南森林草原向西北荒漠草原过渡),进而导致生态系统生产力的空间差异,成为WUE格局形成的基础[38]. 具体而言,D区和A2副区凭借水热条件与植被生产力的协同优化,成为WUE高值区. 尽管两区年均ET较高,分别为471.29 mm(D区)和480.44 mm(A2副区),但充沛降水(年均 > 550 mm)与温和气温(12 ℃年均温)支撑的森林草原植被展现出高效碳同化能力,NPP分别达到422.03 g·(m2·a)-1和416.46 g·(m2·a)-1,显著高于其他区域. 这种“高光合与适蒸腾”的碳水耦合模式,使得WUE分别达0.94 g·(m2·mm·a)-1和0.88 g·(m2·mm·a)-1. 反观C区,其西北干旱区的气候特征(年均降水 < 350 mm、年均蒸发量达2 300 mm)导致植被以荒漠草原为主,加之不合理的水资源利用加剧地表植被退化[20],使蒸散发中土壤蒸发占比较高,而光合固碳能力薄弱,形成“高蒸发与低光合”的低效碳水循环模式. 该区NPP仅为D区的38.51%,WUE低至0.65 g·(m2·mm·a)-1,成为区域低值中心. 这种空间分异本质上是水热条件对植被生理过程的调控结果:东南部植被通过高LAI优化气孔导度,实现光合增益与水分消耗的平衡;西北部则因水分胁迫导致植被光合机构损伤,气孔导度下降,最终形成WUE的显著梯度分异.
空间分异驱动机制显示,生物因子对WUE空间分异的解释力显著高于气候因子(图 9),印证了植被恢复在碳水耦合过程中的核心作用[9]. 值得注意的是,低海拔对WUE有负向影响(图 9). 在低海拔地区,植物生长常受水分限制,迫使它们通过调节气孔导度来减少水分损失. 这种调节方式虽然有效节约了水分,但通常以降低光合作用速率为代价,形成“水分节约-光合抑制”的权衡效应. 降水与温度对WUE的影响呈现典型生态阈值特征[38],即当降水和温度偏离其生态适宜区间时,会对WUE产生不利影响. 本研究中,当P低于400 mm时,水分限制主导使SHAP值为负,与上述结果相一致. SR通过改变土壤和大气水热通量,同时影响蒸散发与光合有效辐射[42],成为驱动WUE空间变异的关键气候因子. 这种多因子协同作用在不同生态分区表现出显著差异:A1副区前三位驱动因子为LAI(29.44%)、kNDVI(21.39%)和SR(7.71%),A2副区为LAI(27.31%)、kNDVI(15.11%)与SR(11.77%),B1副区是LAI(19.17%)、SIF(14.48%)和kNDVI(12.90%),B2副区以SIF(15.93%)、LAI(15.13%)和kNDVI(12.54%)为主,C区为LAI(21.39%)、kNDVI(21.14%)与T(8.60%),D区则是LAI(16.36%)、ele(9.30%)和P(8.79%)(图 11). 其中LAI对WUE影响最显著,作为衡量植物生长与光合强度的关键指标[43],其通过调控光合作用与蒸腾作用影响碳水交换,既促进生物量积累,又通过控制蒸腾与土壤蒸发调节WUE.
综上,黄土高原WUE的复杂空间分异本质是水热条件、植被生理和人类活动共同作用的结果. LAI和kNDVI在A区、C区和D区对WUE影响最为显著,B2副区以SIF和LAI为主导,反映出不同生态分区植被对环境的适应性策略差异. 基于此,未来需针对各分区特征实施差异化管理:在年降水量 < 350 mm的西北干旱区,优选深根系植被以增强水分吸收;在SR高值区,通过优化冠层结构减少强光胁迫;同时持续关注LAI动态变化,平衡植被碳固定与水分消耗,最终提升生态系统碳-水耦合效率,实现水资源可持续管理与生态恢复的协同发展.
3.3 不足及展望本研究系统分析了黄土高原及各生态分区WUE的时空特征及驱动机制,但仍存在一定局限. 尽管MODIS数据在高原植被动态监测中具有较好的适用性,但其1 km空间分辨率在复杂地形区可能导致NPP和ET估算误差,难以捕捉微地形水热异质性. 驱动因子分析中,仅考虑生物、地形和气候等常规要素,未纳入蒸气压差(VPD)[44]、大气CO2浓度[45]及氮沉降等全球变化因素,以上因素可能通过影响NPP和ET间接改变WUE. 此外,基于SHAP-XGBoost模型难以完全解析多因子非线性交互效应,且不同归因方法的因子重要性排序也可能导致结论差异. 未来研究可结合高分辨率卫星数据与地面观测,构建多尺度WUE估算体系,纳入更多环境变量,利用结构方程模型解析多维交互机制,并通过多方法交叉验证降低不确定性,为区域生态保护提供更精准的科学支撑.
4 结论(1)2000~2023年黄土高原生态系统WUE呈显著上升趋势,空间上呈现“东南高、西北低”的整体格局. 不同生态分区的变化速率存在差异,其中B区增长最快,D区和A1副区增长最慢.
(2)除A区和D区外,WUE的年际变化主要受人类活动强度和生物因子驱动. 气候因子的影响具有明显的区域异质性:降水在A和D区对WUE起抑制作用,而在其他区域多为促进作用;温度在大部分地区与WUE呈正相关.
(3)WUE的空间分异性主要由生物因子和气候因子共同主导. 其中,LAI和kNDVI在A区、C区和D区的作用最为关键,而B2副区则以SIF和LAI为主导. 阈值分析显示:LAI > 1或P < 300 mm时抑制WUE,kNDVI在0.15~0.25或ele > 2 000 m时对WUE有正向作用. 交互效应分析表明:当kNDVI在0.10~0.30且SR < 2 900 MJ·m-2时对WUE有促进作用. 相反,当SR > 2 900 MJ·m-2且LAI < 0.60时对WUE有抑制作用.
| [1] | Chen Y Z, Mu S J, Sun Z G, et al. Grassland carbon sequestration ability in China: a new perspective from terrestrial aridity zones[J]. Rangeland Ecology & Management, 2016, 69(1): 84-94. |
| [2] | Zhang T, Peng J, Liang W, et al. Spatial-temporal patterns of water use efficiency and climate controls in China's Loess Plateau during 2000-2010[J]. Science of the Total Environment, 2016, 565: 105-122. DOI:10.1016/j.scitotenv.2016.04.126 |
| [3] | Chen W, Li G C, Wang D L, et al. Influence of the ecosystem conversion process on the carbon and water cycles in different regions of China[J]. Ecological Indicators, 2023, 148. DOI:10.1016/j.ecolind.2023.110040 |
| [4] | Han T, Feng Q, Yu T F, et al. Contrasting response of water use efficiency to soil moisture availability: from leaf to ecosystem in an arid oasis[J]. Ecological Indicators, 2023, 147. DOI:10.1016/j.ecolind.2023.109964 |
| [5] |
崔秋利. 1957—2017年京津冀主要作物水分利用效率及节水潜力分析[J]. 灌溉排水学报, 2020, 39(2): 93-98. Cui Q L. Analysis of WUE for main crops and water-saving potential in the Beijing-Tianjin-Hebei region in 1957-2015[J]. Journal of Irrigation and Drainage, 2020, 39(2): 93-98. |
| [6] | Sun S B, Song Z L, Wu X C, et al. Spatio-temporal variations in water use efficiency and its drivers in China over the last three decades[J]. Ecological Indicators, 2018, 94: 292-304. DOI:10.1016/j.ecolind.2018.07.003 |
| [7] | Xue Y Y, Liang H B, Zhang B Q, et al. Vegetation restoration dominated the variation of water use efficiency in China[J]. Journal of Hydrology, 2022, 612. DOI:10.1016/j.jhydrol.2022.128257 |
| [8] |
李玉露, 吴雪晴, 袁野, 等. 黑龙江省植被碳-水利用效率时空演变及其驱动机制[J]. 应用生态学报, 2024, 35(12): 3349-3358. Li Y L, Wu X Q, Yuan Y, et al. Spatial-temporal variation and driving mechanism of vegetation carbon and water use efficiency in Heilongjiang Province, China[J]. Chinese Journal of Applied Ecology, 2024, 35(12): 3349-3358. |
| [9] | Luo H, Bie X J, Yi G H, et al. Dominant impacting factors on water use efficiency variation in Inner Mongolia from 2001 to 2018: vegetation or climate?[J]. Remote Sensing, 2022, 14(18). DOI:10.3390/rs14184541 |
| [10] | Guo L M, Shan N, Zhang Y G, et al. Separating the effects of climate change and human activity on water use efficiency over the Beijing-Tianjin sand source region of China[J]. Science of the Total Environment, 2019, 690: 584-595. DOI:10.1016/j.scitotenv.2019.07.067 |
| [11] | Du X Z, Zhao X, Zhou T, et al. Effects of climate factors and human activities on the ecosystem water use efficiency throughout northern China[J]. Remote Sensing, 2019, 11(23). DOI:10.3390/rs11232766 |
| [12] | Michael Y, Helman D, Glickman O, et al. Forecasting fire risk with machine learning and dynamic information derived from satellite vegetation index time-series[J]. Science of the Total Environment, 2021, 764. DOI:10.1016/j.scitotenv.2020.142844 |
| [13] | Zhang W Q, Luo G P, Hamdi R, et al. Can gross primary productivity products be effectively evaluated in regions with few observation data?[J]. Giscience & Remote Sensing, 2023, 60(1): 2213489. |
| [14] |
杨艳芬, 王兵, 王国梁, 等. 黄土高原生态分区及概况[J]. 生态学报, 2019, 39(20): 7389-7397. Yang Y F, Wang B, Wang G L, et al. Ecological regionalization and overview of the Loess Plateau[J]. Acta Ecologica Sinica, 2019, 39(20): 7389-7397. |
| [15] |
赵广举, 穆兴民, 田鹏, 等. 黄土高原植被变化与恢复潜力预测[J]. 水土保持学报, 2021, 35(1): 205-212. Zhao G J, Mu X M, Tian P, et al. Prediction of vegetation variation and vegetation restoration potential in the Loess Plateau[J]. Journal of Soil and Water Conservation, 2021, 35(1): 205-212. |
| [16] |
王雅舒, 李小雁, 石芳忠, 等. 退耕还林还草工程加剧黄土高原退耕区蒸散发[J]. 科学通报, 2019, 64(5-6): 588-599. Wang Y S, Li X Y, Shi F Z, et al. The Grain for Green Project intensifies evapotranspiration in the revegetation area of the Loess Plateau in China[J]. Chinese Science Bulletin, 2019, 64(5-6): 588-599. |
| [17] |
蒋宁萱, 张涵奇, 孙善磊, 等. 21世纪以来黄土高原水分利用效率时空变化及归因[J]. 生态学报, 2024, 44(14): 6020-6036. Jiang N X, Zhang H Q, Sun S L, et al. Vegetation restoration promoted the increase of water use efficiency on the Loess Plateau in the 21st century[J]. Acta Ecologica Sinica, 2024, 44(14): 6020-6036. |
| [18] |
刘宪锋, 胡宝怡, 任志远. 黄土高原植被生态系统水分利用效率时空变化及驱动因素[J]. 中国农业科学, 2018, 51(2): 302-314. Liu X F, Hu B Y, Ren Z Y. Spatiotemporal variation of water use efficiency and its driving forces on the Loess Plateau during 2000-2014[J]. Scientia Agricultura Sinica, 2018, 51(2): 302-314. |
| [19] |
秦格霞, 孟治元, 李妮. 黄土高原水分利用效率动态及其对干旱和地表温度的响应[J]. 干旱区地理, 2024, 47(11): 1887-1898. Qin G X, Meng Z Y, Li N. Dynamics of water use efficiency and its response to drought and land surface temperature on the Loess Plateau[J]. Arid Land Geography, 2024, 47(11): 1887-1898. |
| [20] |
周怡婷, 严俊霞, 刘菊, 等. 2000~2021年黄土高原生态分区NEP时空变化及其驱动因子[J]. 环境科学, 2024, 45(5): 2806-2816. Zhou Y T, Yan J X, Liu J, et al. Spatio-temporal variation in NEP in ecological zoning on the Loess Plateau and its driving factors from 2000 to 2021[J]. Environmental Science, 2024, 45(5): 2806-2816. DOI:10.13227/j.hjkx.202306059 |
| [21] |
豆明玉, 段克勤, 石培宏, 等. 基于CMIP6多模式的黄土高原气温变化模拟评估及情景预估[J]. 水土保持研究, 2024, 31(2): 158-167. Dou M Y, Duan K Q, Shi P H, et al. Historical evaluation and scenario prediction of temperature changes the Loess Plateau based on CMIP6 multimodels[J]. Research of Soil and Water Conservation, 2024, 31(2): 158-167. |
| [22] | Li X, Xiao J F. A global, 0.05-degree product of solar-induced chlorophyll fluorescence derived from OCO-2, MODIS, and reanalysis data[J]. Remote Sensing, 2019, 11(5). DOI:10.3390/rs11050517 |
| [23] | Mu H W, Li X C, Wen Y A, et al. A global record of annual terrestrial human footprint dataset from 2000 to 2018[J]. Scientific Data, 2022, 9(1). DOI:10.1038/s41597-022-01284-8 |
| [24] |
高晓宇, 郝海超, 张雪琪, 等. 中国西北干旱区植被水分利用效率变化对气象要素的响应——以新疆为例[J]. 干旱区地理, 2023, 46(7): 1111-1120. Gao X Y, Hao H C, Zhang X Q, et al. Responses of vegetation water use efficiency to meteorological factors in arid areas of northwest China: a case of Xinjiang[J]. Arid Land Geography, 2023, 46(7): 1111-1120. |
| [25] |
杜晓铮, 赵祥, 王昊宇, 等. 陆地生态系统水分利用效率对气候变化的响应研究进展[J]. 生态学报, 2018, 38(23): 8296-8305. Du X Z, Zhao X, Wang H Y, et al. Responses of terrestrial ecosystem water use efficiency to climate change: a review[J]. Acta Ecologica Sinica, 2018, 38(23): 8296-8305. |
| [26] |
赖金林, 齐实, 廖瑞恩, 等. 2000—2019年西南高山峡谷区植被变化对气候变化和人类活动的响应[J]. 农业工程学报, 2023, 39(14): 155-163. Lai J L, Qi S, Liao R E, et al. Vegetation change responses to climate change and human activities in southwest alpine canyon areas of China from 2000 to 2019[J]. Transactions of the Chinese Society of Agricultural Engineering, 2023, 39(14): 155-163. |
| [27] | Liu J L, Liu S W, Tang X G, et al. The response of land surface temperature changes to the vegetation dynamics in the Yangtze river basin[J]. Remote Sensing, 2022, 14(20). DOI:10.3390/rs14205093 |
| [28] | Wang S, Peng H, Hu Q, et al. Analysis of runoff generation driving factors based on hydrological model and interpretable machine learning method[J]. Journal of Hydrology: Regional Studies, 2022, 42. DOI:10.1016/j.ejrh.2022.101139 |
| [29] | Wang S, Peng H, Liang S K. Prediction of estuarine water quality using interpretable machine learning approach[J]. Journal of Hydrology, 2022, 605. DOI:10.1016/j.jhydrol.2021.127320 |
| [30] |
刘慧文, 刘欢, 胡鹏, 等. 基于可解释机器学习的青藏高原草地物候变化多因素影响分析[J]. 环境科学, 2024, 45(6): 3375-3388. Liu H W, Liu H, Hu P, et al. Multi-factor impact analysis of grassland phenology changes on the Qinghai-Xizang plateau based on interpretable machine learning[J]. Environmental Science, 2024, 45(6): 3375-3388. DOI:10.13227/j.hjkx.202306185 |
| [31] | He J, Zhou Y X, Liu X Y, et al. Spatiotemporal changes in water-use efficiency of China's terrestrial ecosystems during 2001-2020 and the driving factors[J]. Remote Sensing, 2025, 17(1). DOI:10.3390/rs17010136 |
| [32] |
王逸男, 孔祥兵, 赵春敬, 等. 2000-2020年黄土高原植被覆盖度时空格局变化分析[J]. 水土保持学报, 2022, 36(3): 130-137. Wang Y N, Kong X B, Zhao C J, et al. Change of vegetation coverage in the Loess Plateau from 2000 to 2020 and its spatiotemporal pattern analysis[J]. Journal of Soil and Water Conservation, 2022, 36(3): 130-137. |
| [33] |
王乐, 朱求安, 张江, 等. 黄河流域植被格局变化对水分利用效率的影响[J]. 生态学报, 2023, 43(8): 3103-3115. Wang L, Zhu Q A, Zhang J, et al. Characteristics of water use efficiency during the changing process of vegetation in the Yellow River basin[J]. Acta Ecologica Sinica, 2023, 43(8): 3103-3115. |
| [34] |
刘旻霞, 赵瑞东, 邵鹏, 等. 近15a黄土高原植被覆盖时空变化及驱动力分析[J]. 干旱区地理, 2018, 41(1): 99-108. Liu M X, Zhao R D, Shao P, et al. Temporal and spatial variation of vegetation coverage and its driving forces in the Loess Plateau from 2001 to 2015[J]. Arid Land Geography, 2018, 41(1): 99-108. |
| [35] |
王瑞芳, 吕宝奇, 张文静. 黄河流域植被动态及其对气候变化的响应——基于气候干湿分区尺度[J]. 干旱区地理, 2025, 48(6): 973-984. Wang R F, Lyu B Q, Zhang W J. Vegetation dynamics and their responses to climate change in the Yellow River Basin: based on climatic wet and dry zoning scales[J]. Arid Land Geography, 2025, 48(6): 973-984. |
| [36] | Wang Y A, He J C, Shao T, et al. Exploring the potential of solar-induced chlorophyll fluorescence monitoring drought-induced net primary productivity dynamics in the Huang-Huai-Hai plain based on the SIF/NPP ratio[J]. Remote Sensing, 2023, 15(13). DOI:10.3390/rs15133276 |
| [37] | Zhang W Q, Jin H A, Shao H Y, et al. Temporal and spatial variations in the leaf area index and its response to topography in the Three-River source region, China from 2000 to 2017[J]. ISPRS International Journal of Geo-Information, 2021, 10(1). DOI:10.3390/ijgi10010033 |
| [38] | Hou Q Q, Pei T T, Yu X J, et al. The seasonal response of vegetation water use efficiency to temperature and precipitation in the Loess Plateau, China[J]. Global Ecology and Conservation, 2022, 33. DOI:10.1016/j.gecco.2021.e01984 |
| [39] | Ma R X, Cui X M, Wang D C, et al. Spatial and temporal characteristics of water use efficiency in typical ecosystems on the Loess Plateau in the last 20 years, with drivers and implications for ecological restoration[J]. Remote Sensing, 2022, 14(22). DOI:10.3390/rs14225632 |
| [40] | Liu Y Y, Lian J J, Luo Z D, et al. Spatiotemporal variations in evapotranspiration and transpiration fraction following changes in climate and vegetation in a karst basin of southwest China[J]. Journal of Hydrology, 2022, 612. DOI:10.1016/j.jhydrol.2022.128216 |
| [41] | Niu Z E, He H L, Zhu G F, et al. An increasing trend in the ratio of transpiration to total terrestrial evapotranspiration in China from 1982 to 2015 caused by greening and warming[J]. Agricultural and Forest Meteorology, 2019, 279. DOI:10.1016/j.agrformet.2019.107701 |
| [42] | Bejagam V, Sharma A. Remote sensing-based multi-scale characterization of ecohydrological indicators (EHIs) in India[J]. Ecological Engineering, 2023, 187. DOI:10.1016/j.ecoleng.2022.106841 |
| [43] |
贺敏, 闻建光, 游冬琴, 等. 山地森林叶面积指数(LAI)遥感估算研究进展[J]. 遥感学报, 2022, 26(12): 2451-2472. He M, Wen J G, You D Q, et al. Review of forest leaf area index retrieval over rugged terrain based on remotely sensed data[J]. National Remote Sensing Bulletin, 2022, 26(12): 2451-2472. |
| [44] | Wang L C, Li Y, Zhang X C, et al. Soil water content and vapor pressure deficit affect ecosystem water use efficiency through different pathways[J]. Journal of Hydrology, 2024, 640. DOI:10.1016/j.jhydrol.2024.131732 |
| [45] | Li S L, Agathokleous E, Li S J, et al. Climate gradient and leaf carbon investment influence the effects of climate change on water use efficiency of forests: a meta-analysis[J]. Plant, 2024, 47(4): 1070-1083. |