 2026, Vol. 47


2. 长江水资源保护科学研究所,武汉 430051;
3. 长江水利委员会湖库水源地面源污染生态调控重点实验室,武汉 430051
2. Changjiang Water Resources Protection Institute, Wuhan 430051, China;
3. Key Laboratory of Ecological Regulation of Nonpoint Source Pollution in Lake and Reservoir Water Sources, Changjiang Water Resources Commission, Wuhan 430051, China
饮用水源区作为城市居民日常生活和公共服务的主要供水保障,正面临“量质双衰”的严峻挑战:全球近44%的河流下游水量在过去35 a中持续萎缩,每年约4 200亿m3污水排入水体,影响5.5万亿m3淡水的水质[1,2]. 水库作为核心水源地,其入库河流一方面提供了主要水量补给,另一方面也成为水质污染与生态风险的重要输入通道[3]. 其中,入库河流携带的氮、磷等营养物质过量输入是诱发水体富营养化的重要原因[4,5],也是人类活动干扰水生生态系统的典型表现[6~8]. 此类过程会导致浮游植物的生物量时空异质性增强以及藻类水华频发,并成为淡水资源可持续管理面临的核心挑战[9]. 因此,探究浮游植物对氮、磷等营养物质的吸收与利用特征,有助于揭示水体富营养化的生态响应机制,并为水质管理与富营养化防控提供理论依据.
浮游植物资源利用效率(resource use efficiency,RUE)是深入解析浮游植物群落与营养盐关联的重要指标[10,11],通常指每单位供应资源产生的生物量. RUE作为一种关键的生态系统功能,它对养分循环和营养传递过程有决定性作用[12,13]. 目前关于RUE的研究主要集中在其生态驱动因素、外部环境条件的调控机制等多个方面. 研究表明,生物多样性高的浮游植物群落会通过生态位分化,促进其RUE[14],而物种均匀度过高则可能导致RUE下降[15]. 此外,随着水体富营养化程度的加剧,浮游植物对氮的利用效率(RUEN)存在由低水平向高水平的突变现象[16],然而此类突变并非普遍存在,与不同研究中生态系统类型及富营养化程度的差异有关[17];营养物质的化学计量比(如N∶P)会通过自下而上的作用影响浮游植物群落,从而调控其RUE[18,19]. 尽管RUE已知受到生物与非生物因子的共驱动,但在不同营养水平下,营养平衡(尤其是氮磷化学计量比,N∶P)对RUE的调控机制仍缺乏系统认知.
丹江口水库是南水北调中线工程的重要水源地,自2014年以来,累计调水达767亿m3,直接受益人口超1.14亿,已成为京津冀20多个城市的主要水源,其水质安全直接影响国家战略性调水工程的综合效益与生态可持续性[20,21],当前丹江口水库的研究多聚焦于浮游植物群落结构、水质驱动因素及生态风险评估,以及库湾景观、水文特征与水质的关系[22~25]. 然而,将入库河流水质特征与浮游植物功能性状相结合的研究仍较为缺乏. 鉴于此,本文以丹江口水库主要入库河流为研究对象,开展野外采样与室内分析,解析浮游植物的群落组成,评估支流营养状态及氮磷化学计量比特征,探究RUE沿营养状态和N∶P梯度的变化规律,进而阐明营养状态和N∶P的协同驱动机制,以期为丹江口水源地的富营养化和有害藻华防控提供数据支撑和科学依据.
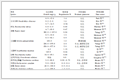
1 研究区概况丹江口水库位于湖北、河南、陕西三省交界处(北纬32°36′~33°48′,东经110°59′~111°49′,图 1),是亚洲最大的湖泊型水库和饮用水源保护区,水域覆盖面积1 050 km2,总库容达290.5亿m3. 库区地形高程介于86~2 084 m之间,相对高差达1 998 m,年均日照时长2 121 h,年平均气温15.8 ˚C,年均降水量为800~1 000 mm,属于北亚热带季风气候[26,27]. 库区河网水系发达,共有16条主要入库支流. 其中汉江与丹江为两大核心支流,另外还包括滔河、神定河、堵河、泗河、浪河、剑河、淇河、官山河、老灌河、将军河、犟河、曲远河、淘沟河和天河等主要支流[28]. 各入库河流基本水文特征见表 1.

|
图 1 研究区概况示意 Fig. 1 Location of the study area |
|
表 1 入库河流基本水文特征 Table 1 Summary of inflow river hydrological characteristics |
2 材料与方法 2.1 样品采集与处理
本研究分别于2024年4月、9月以及2025年2月系统采集了丹江口水库16条入库河流的河口表层水(水面下0.5 m)和浮游植物样品.
水体理化指标监测和分析:采用YSI-EXO便携式多参水质分析仪现场测量水温(WT)、pH和溶解氧(DO),浊度(NTU)和叶绿素a(Chla),总氮(TN)浓度按照碱性过硫酸钾氧化-紫外分光光度法(GB 11894—89)进行测定,总磷(TP)浓度按照钼酸铵分光光度法(GB 11893—89)进行测定,氨氮(
浮游植物鉴定:将采集的水样用鲁戈碘溶液(1.5%,体积分数)固定,带回室内后采用虹吸法浓缩至30 mL左右,装入离心管中,取0.1 mL浓缩液在10×40放大倍率下进行计数并测定藻密度(AD),根据《中国淡水藻类:系统、分类及生态》进行藻类的分类鉴定[29,30].
2.2 浮游植物优势度指数及多样性参数计算浮游植物优势属使用优势度指数(Y)来确定[31],浮游植物多样性通过Shannon-Weiner多样性指数(H')、Pielou均匀度指数(J)和Margalef丰富度指数(d)来反映[32,33],计算公式如下:
| (1) |
| (2) |
| (3) |
| (4) |
式中,
水体的营养化状态通过综合营养状态指数TLI进行评价[33,34],计算公式为:
| (5) |
| (6) |
| (7) |
| (8) |
| (9) |
式中,TLI(j)表示第j种参数的营养状态指数;
浮游植物资源利用效率(RUE)定义为可利用资源被浮游植物转化为物种生物量的比例[19],计算公式如下:
| (10) |
| (11) |
式中,Chla为叶绿素a质量浓度(mg·m-3),TN为总氮质量浓度(mg·L-1),TP为总磷质量浓度(mg·L-1).
2.5 统计分析使用R语言dplyr、vegan、rdacca.hp和linkET等程序包进行Mantel检验、VPA分析以及层次分割,确定N∶P、营养状态指数TLI、生物多样性指数和藻密度AD对浮游植物资源利用效率RUEN和RUEP的贡献,并用ggplot2程序包作图.
3 结果与分析 3.1 不同营养状态下浮游植物的结构特征 3.1.1 浮游植物的物种组成与优势种调查期间,丹江口水库入库河流共鉴定出50个属,横跨6个门,其中硅藻门(Bacillariophyta)包含20个属,占总数的40%,在群落中占绝对优势,其次分别为绿藻门(Chlorophyta)和蓝藻门(Cyanophyta),各包含14个属和8个属,占总数的30%和16%,裸藻门(Euglenophyta)、双鞭毛虫门(Dinozo)和隐藻门(Cryptophyta)所占比例较小,所含属分别占总数的6%、6%和2%.
在优势属演替方面,所有样本中鉴定出优势属9个,隶属4个门(表 2),其中舟形藻属(Navicula)和小环藻属(Cyclotella)的优势度分别为0.15和0.22,明显高于其他类别. 不同营养状态下的优势属组成有所区别,贫营养状态下共有8个优势属,隶属于硅藻门(5个)、蓝藻门(2个)和绿藻门(1个);中营养状态下共有6个优势属,隶属于硅藻门(5个)和蓝藻门(1个);富营养状态下共有6个优势属,隶属于硅藻门(5个)和隐藻门(1个),而小环藻属、舟形藻属和等片藻属(Diatoma)在所有营养状态水体中均有出现且占据优势地位,另外还发现等片藻属的优势度随着水体富营养化程度增加而降低.
|
|
表 2 丹江口水库入库河流不同营养状态下的优势属及优势度(Y) Table 2 Dominant genera and dominance (Y) in Danjiangkou Reservoir inflow rivers under different trophic states |
3.1.2 浮游植物的多样性特征
对比不同营养状态水体的Margalef丰富度指数[图 2(a)],富营养水体的丰富度指数整体更高,分布在1.57~3.49之间,均值为2.55±0.22,中营养水体的丰富度指数整体较低,均值为2.37±0.14;从水体贫营养状态到富营养状态Shannon index多样性指数整体上变得越来越低[图 2(b)],分布范围变得越来越广,均值依次为2.01±0.08、1.92±0.06和1.62±0.27,范围从贫营养状态的1.77~2.15到富营养状态的0.26~2.34;Pielou均匀度指数同样随着富营养化程度加深而减小[图 2(c)],各营养状态的均值依次为0.85±0.02、0.84±0.02和0.75±0.04.

|
图 2 不同营养状态下浮游植物的多样性特征 Fig. 2 Phytoplankton diversity characteristics under different trophic states |
总体而言水体营养状态越高TN、TP和叶绿素a质量浓度也越高,且富营养状态的水体分别与贫营养和中营养状态的水体存在显著差异(图 3). 丹江口水库入库河流的ρ(TN)分布在0.36~10.7 mg·L-1,其中富营养状态的水体基本超出中国《地表水环境质量标准》中的V类水标准(2 mg·L-1). 丹江口水库入库河流的ρ(TP)整体范围在0.005~0.18 mg·L-1. 富营养状态水体的ρ(Chla)整体较高[均值为(5.05±1.16)μg·L-1],分布范围较广(0.68~11.2 μg·L-1). 藻密度(AD)总体上也随富营养化程度加剧而上升[图 3(d)],不同营养状态水体的藻密度均值依次为(6.59±3.10)×106、(6.8±2.09)×106和(1.2±4.97)×107 cell·L-1.

|
*表示P < 0.05 图 3 不同营养状态下的水质特征 Fig. 3 Water quality characteristics under different trophic states |
浮游植物的氮利用效率RUEN沿N∶P梯度呈下降趋势,而浮游植物对磷的利用效率RUEP随N∶P增加呈上升趋势(图 4). RUEN随着水体营养状态指数TLI的升高呈现先上升后下降的规律,整体而言中营养状态的RUEN(均值为1.23±0.18)显著高于贫营养和富营养状态的RUEN(均值分别为0.75±0.26和1.01±0.32);RUEP沿TLI梯度的变化规律与RUEN相似,中营养状态的RUEP均值为87.66±14.55,显著高于贫营养和富营养状态的RUEP(均值分别为28.21±9.27和41.32±10.49).

|
(a)浮游植物氮利用效率RUEN沿N∶P梯度的变化,(b)浮游植物氮利用效率RUEN沿营养状态TLI梯度的变化,(c)不同营养状态下浮游植物氮利用效率RUEN分布,(d)浮游植物磷利用效率RUEP沿N∶P梯度的变化,(e)浮游植物磷利用效率RUEP沿营养状态TLI梯度的变化,(f)不同营养状态下浮游植物磷利用效率RUEP分布,*表示P < 0.05,阴影部分表示95%的置信区间 图 4 浮游植物资源利用效率在N∶P和营养状态TLI梯度上的变化 Fig. 4 Phytoplankton resource use efficiency along gradients of N∶P ratio and trophic status (TLI) |
将水环境参数与浮游植物的资源利用效率进行了Mantel分析(图 5),结果表明浮游植物资源利用效率(RUEN和RUEP)与水环境中的物理化学和生物参数(TP、TN、N∶P、AD和Chla)之间均存在显著相关性(P < 0.05),另外浮游植物氮利用效率RUEN与水温WT之间存在显著相关性. 藻密度AD作为同时影响RUEN和RUEP的生物因子,还与NTU、DO、WT、TN和TP等物理化学参数显著相关. 营养状态指数TLI与TN、TP、

|
|
方差分解分析(VPA)表明,N∶P、营养状态指数TLI以及群落结构(H'、J、d和AD)这3类变量可以解释浮游植物RUEN和RUEP变化的84.9%和77.9%[图 6(a)和6(c)]. 其中N∶P和TLI的协同作用对RUEN和RUEP变化的贡献率分别为0.5%和10.6%,TLI与群落结构的耦合效应对RUEN变化的贡献率为15.7%,N∶P与群落结构的耦合效应对RUEP变化的贡献率为8.8%. 通过层次分割得到各参数的个体解释率[图 6(b)和6(d)],藻密度(AD)对RUEN变化的解释率为33.5%,其次为多样性指数(H

|
(a)浮游植物氮利用效率RUEN的方差分解分析,(b)浮游植物氮利用效率RUEN的层次分割,(c)浮游植物磷利用效率RUEP的方差分解分析,(d)浮游植物磷利用效率RUEP的层次分割 图 6 营养状态、N∶P和群落结构对浮游植物资源利用效率贡献的方差分解分析和层次分割 Fig. 6 Variance partitioning analysis (VPA) and hierarchical partitioning of the effects of trophic state, N∶P ratio, and community structure on phytoplankton resource use efficiency |
本研究调查期间,丹江口水库入库河流浮游植物共鉴定出6门50属,优势类群主要为硅藻、蓝藻和绿藻,与在2018~2020年间调查的丹江口水库浮游植物优势类群基本一致[35],但与该时期入库河流的群落组成相比,除了硅藻仍然占据优势地位,另外的优势类群隐藻已被现今的蓝藻和绿藻所替代,通常来说以绿藻为主的水体多为富营养型,以硅藻为主的水体多属于中营养型[36],说明了丹江口入库河流营养状态有从中贫营养型水体向中富营养型水体发展的趋势[37],也与本研究根据营养状态指数(TLI)划分的水体富营养化类型分布相契合,研究中还发现等片藻属的优势度随着水体富营养化程度增加而降低,等片藻属作为对营养盐变化敏感的清洁种,通常在低营养状态水体中有较高的细胞丰度[38],其优势度的下降反映出水体有偏离自然背景状态的趋势也体现了营养盐输入对清洁型群落的破坏.
Shannon-Wiener多样性指数、Pielou均匀度指数和Margalef丰富度指数可以衡量浮游植物群落的多样性[39],本研究富营养水体的Margalef丰富度指数高于中营养和贫营养状态的水体,而富营养水体的Shannon-Wiener多样性指数和Pielou均匀度指数要低于中营养和贫营养水体(图 2). 富营养状态下会导致物种间资源竞争压力减小,占优势地位的藻属难以排挤其他藻属,更多的藻属得以共存[40];中低营养状态下虽然资源竞争压力更大,藻属间却能通过增大生态位差异来维持稳定共存[41],但富营养状态下通常由某些适应性强的藻属如隐藻属和小环藻属在环境中占优势地位[33],其他藻属虽能共存但生物量相对较低,而中低营养状态下的群落由于较小的生态位重叠[42],在各藻属得以共存的情况下亦有着更均衡的生物量,因此解释了富营养水体高丰富度但低多样性的现象.
4.2 浮游植物资源利用效率驱动机制丹江口水库入库河流氮磷浓度显著失衡,其中总磷浓度在各个营养状态普遍低于Ⅱ类水标准限值,而总氮浓度即便在贫营养状态水体中亦有超过Ⅴ类标准的情况,导致N∶P多分布于30~120,高于Redfield比值(N∶P=16,通常被认为是氮磷达到平衡),水体呈现出磷限制状态[43,44],这将会显著影响浮游植物的群落结构和养分吸收[45]. 其中直接影响体现为浮游植物对磷的利用效率RUEP随N∶P增加呈上升趋势[图 4(d)],在磷限制条件下浮游植物一般会通过提升磷的利用效率来减缓生物量衰减[46];而浮游植物的氮利用效率RUEN与N∶P呈负相关性[图 4(a)],在磷限制条件下虽然藻类有更多可利用氮源,但为了保证磷的转化利用以维持基础代谢,将会缺乏足够的磷来合成氮同化酶,导致可利用氮向生物量的转化受阻,氮的利用效率随之降低[47]. 另外,N∶P还能通过调节群落多样性间接作用于RUE[46].
营养状态对RUE的影响呈现出以“直接驱动”为主、“间接调节”为辅的双路径模式. 该模式体现在浮游植物的资源利用效率RUEN和RUEP均随水体营养状态指数TLI的升高呈现先上升后下降的规律[图 4(b)和4(e)],这与Hodapp等[13]所论述的“富营养化理论”类似,该研究表明浮游植物的RUE随资源供应量的变化呈现单峰右偏分布函数,在达到饱和点前,营养水平提升直接驱动RUE升高,当资源供应量进一步增加时RUE会逐渐下降. 此外,营养状态亦能通过改变浮游植物群落特征(如物种丰富度、功能多样性及均匀度)对RUE产生显著的间接影响[44]. Yang等[48]的研究发现环境因子对浮游植物RUE有直接的负向影响,这可能是由于该研究的大部分水体属于城市河流,氮磷浓度远高于富营养化阈值,已超出RUE达到饱和的营养状态,从而导致浮游植物RUE与环境因子呈负相关.
RUE随TLI变化的驼峰型关系可能与浮游植物优势属的群落组成和生理特性有关. 在贫营养阶段,硅藻、蓝藻和绿藻等优势属的共存,通过生态位互补维持了较高的群落多样性,为系统提供了基础水平的RUE,但资源限制可能抑制了任何单一功能群的最大化表达. 到达中营养阶段,优势属数目减少,群落简化,形成了以硅藻和蓝藻为核心的群落,蓝藻凭借较强的储磷能力和对营养盐波动的生理性适应[12],与具有高内在资源转化效率的硅藻协同作用,在资源较为富足的情况下,实现了更高的RUE. 当水体发展为富营养状态,隐藻替代蓝藻成为关键优势类群,其混合营养策略虽在营养盐过剩条件下有着竞争优势,但该策略伴随着较高的能量成本[49]. 这种资源分配模式更倾向于维持摄食结构与代谢,而非优化营养盐的高效转化[50],因此在富营养水平下,群落生物量虽得以维持较高水平,而RUE却呈下降趋势.
本研究发现,TLI与N∶P对浮游植物资源利用效率(RUEN和RUEP)存在协同调控作用,随着TLI的升高以及长期的N∶P失衡,群落的竞争格局将会改变,耐低磷或能固氮的类群则会取代原有功能多样的群落,从而打破系统的营养循环稳态,推动生态系统从高效率状态向低效率、易藻华状态转变. 这也进一步证实了N∶P失衡是RUE沿营养状态梯度发生突变的主要驱动因素[16]. 这种协同作用对于理解浮游植物的群落动态和预测藻华风险具有重要意义. 群落结构与N∶P之间也存在耦合关系,共同驱动浮游植物RUE的变化. Gerhard等[46]的研究发现,多样性水平对RUE的影响随着N∶P的增加而增加,并表示较高的多样性水平可能呈现出多种资源利用策略,使群落在较高的N∶P条件下依旧能够提高资源利用效率,缓冲营养盐失衡的压力,而富营养状态下稀有物种的丧失(多样性下降)将会减少在高磷限制条件下浮游植物的资源利用效率. 总而言之,当环境变异性与高生物多样性并存时,可呈现积极的生物多样性-生态系统功能关系,因为环境波动会激活功能多样性的互补机制从而增强生态系统功能[51~54].
尽管本研究揭示了入库河流浮游植物资源利用效率(RUE)的关键驱动机制,但仍存在以下不足:①采样时序有限,仅反映了短期空间格局,尚未揭示季节和年际尺度的动态变化;②由于入库河流与湖库等水体在水动力条件上存在显著差异(如流速、水体停留时间和营养盐滞留特征等),导致对驱动因素的量化解释仍存在不确定性. 未来可开展多时段、长序列监测,并结合水动力模型深入解析RUE的时空动态及其对水动力学的响应机制. 将研究成果应用于水库富营养化管理和生态调控,为南水北调中线工程水源地的生态安全提供科学支撑
5 结论(1)丹江口入库河流浮游植物共鉴定出6门50属,硅藻门占绝对优势,存在优势类群隐藻向蓝藻-绿藻演替的趋势,表明水体正由中-贫营养向中-富营养状态发展.
(2)浮游植物磷利用效率RUEP与N∶P呈正相关,而氮利用效率RUEN与N∶P负相关;浮游植物资源利用效率RUE对营养状态指数TLI呈驼峰型响应.
(3)营养状态、群落结构和N∶P是影响浮游植物资源利用效率的关键因子,营养状态和N∶P存在耦合效应共同驱动浮游植物资源利用效率的变化.
| [1] | Feng D M, Gleason C J. More flow upstream and less flow downstream: The changing form and function of global rivers[J]. Science, 2024, 386(6727): 1305-1311. DOI:10.1126/science.adl5728 |
| [2] | Wang M R, Bodirsky B L, Rijneveld R, et al. A triple increase in global river basins with water scarcity due to future pollution[J]. Nature Communications, 2024, 15(1). DOI:10.1038/s41467-024-44947-3 |
| [3] | Chen S B, Chen L, Gao Y, et al. Larger phosphorus flux triggered by smaller tributary watersheds in a river reservoir system after dam construction[J]. Journal of Hydrology, 2021, 601. DOI:10.1016/j.jhydrol.2021.126819 |
| [4] | Strokal M, Bai Z H, Franssen W, et al. Urbanization: an increasing source of multiple pollutants to rivers in the 21st century[J]. npj Urban Sustainability, 2021, 1(1). DOI:10.1038/s42949-021-00026-w |
| [5] | Li Y N, Wang M R, Chen X J, et al. Multi-pollutant assessment of river pollution from livestock production worldwide[J]. Water Research, 2022, 209. DOI:10.1016/j.watres.2021.117906 |
| [6] | Scholz M J, Obenour D R, Morrison E S, et al. A critical eutrophication–climate change link[J]. Nature Sustainability, 2025, 8(3): 222-223. DOI:10.1038/s41893-024-01507-3 |
| [7] | Xin M, Wang B D, Xie L P, et al. Long-term changes in nutrient regimes and their ecological effects in the Bohai Sea, China[J]. Marine Pollution Bulletin, 2019, 146. DOI:10.1016/j.marpolbul.2019.07.011 |
| [8] | de Raús Maúre E, Terauchi G, Ishizaka J, et al. Globally consistent assessment of coastal eutrophication[J]. Nature Communications, 2021, 12(1). DOI:10.1038/s41467-021-26391-9 |
| [9] | Tang J P, Zhang C C, Xu W, et al. Indirect impact of eutrophication on occurrence, Air–Water exchange, and vertical sinking fluxes of antibiotics in a subtropical river[J]. Environmental Science & Technology, 2024, 58(20): 8932-8945. |
| [10] | Carlson R E. A trophic state index for lakes[J]. Limnology and Oceanography, 1977, 22(2): 361-369. DOI:10.4319/lo.1977.22.2.0361 |
| [11] | Zou W, Zhu G W, Cai Y J, et al. Relationships between nutrient, chlorophyll a and secchi depth in lakes of the Chinese eastern plains ecoregion: implications for eutrophication management[J]. Journal of Environmental Management, 2020, 260. DOI:10.1016/j.jenvman.2019.109923 |
| [12] | Filstrup C T, Hillebrand H, Heathcote A J, et al. Cyanobacteria dominance influences resource use efficiency and community turnover in phytoplankton and zooplankton communities[J]. Ecology Letters, 2014, 17(4): 464-474. DOI:10.1111/ele.12246 |
| [13] | Hodapp D, Hillebrand H, Striebel M. "Unifying" the concept of resource use efficiency in ecology[J]. Frontiers in Ecology and Evolution, 2019, 6. DOI:10.3389/fevo.2018.00233 |
| [14] | Loreau M, Hector A. Partitioning selection and complementarity in biodiversity experiments[J]. Nature, 2001, 412(6842): 72-76. DOI:10.1038/35083573 |
| [15] | Filstrup C T, King K B S, McCullough I M. Evenness effects mask richness effects on ecosystem functioning at macro-scales in lakes[J]. Ecology Letters, 2019, 22(12): 2120-2129. DOI:10.1111/ele.13407 |
| [16] | Jin L, Chen H H, Matsuzaki S I S, et al. Tipping points of nitrogen use efficiency in freshwater phytoplankton along trophic state gradient[J]. Water Research, 2023, 245. DOI:10.1016/j.watres.2023.120639 |
| [17] | Frank F, Danger M, Hillebrand H, et al. Stoichiometric constraints on phytoplankton resource use efficiency in monocultures and mixtures[J]. Limnology and Oceanography, 2020, 65(8): 1734-1746. DOI:10.1002/lno.11415 |
| [18] | David V, Tortajada S, Savoye N, et al. Impact of human activities on the spatio-seasonal dynamics of plankton diversity in drained marshes and consequences on eutrophication[J]. Water Research, 2020, 170. DOI:10.1016/j.watres.2019.115287 |
| [19] | Li X X, Xu Z H, Zhang S B, et al. Eutrophication-driven changes in plankton trophic interactions: insights from trade-offs in functional traits[J]. Environmental Science & Technology, 2025, 59(1): 744-755. |
| [20] |
张玮玮, 高姗姗, 李梦璐, 等. 丹江口水库浮游细菌和氮磷循环基因垂直分布特征及其驱动因素[J]. 环境科学, 2024, 45(7): 3995-4005. Zhang W W, Gao S S, Li M L, et al. Vertical distribution characteristics and driving factors of bacterioplankton and nitrogen phosphorus cycle genes in Danjiangkou Reservoir[J]. Environmental Science, 2024, 45(7): 3995-4005. DOI:10.13227/j.hjkx.202307255 |
| [21] |
肖春艳, 孙艺萌, 赵同谦, 等. 丹江口水库淅川库区大气硝酸盐干沉降特征及源解析[J]. 中国环境科学, 2024, 44(3): 1515-1525. Xiao C Y, Sun Y M, Zhao T Q, et al. Atmospheric nitrate-nitrogen dry deposition characteristics and source analysis in the Xichuan Reservoir area of Danjiangkou Reservoir[J]. China Environmental Science, 2024, 44(3): 1515-1525. |
| [22] |
闫雪燕, 张鋆, 李玉英, 等. 动态调水过程水文和理化因子共同驱动丹江口水库库湾浮游植物季节变化[J]. 湖泊科学, 2021, 33(5): 1350-1363. Yan X Y, Zhang Y, Li Y Y, et al. Hydrologic and physicochemical factors co-drive seasonal changes of phytoplankton during dynamic water diversion processes in the Danjiangkou Reservoir[J]. Journal of Lake Sciences, 2021, 33(5): 1350-1363. |
| [23] | Li N X, Wang J, Yin W, et al. Linking water environmental factors and the local watershed landscape to the chlorophyll a concentration in reservoir bays[J]. Science of the Total Environment, 2021, 758. DOI:10.1016/j.scitotenv.2020.143617 |
| [24] | Hao R, Yin W, Jia H Y, et al. Dynamics of dissolved heavy metals in reservoir bays under different hydrological regulation[J]. Journal of Hydrology, 2021, 595. DOI:10.1016/j.jhydrol.2021.126042 |
| [25] | Wang J, Yin W, Wang L X, et al. Unraveling the effects of hydrological connectivity and landscape characteristics on reservoir water quality[J]. Journal of Hydrology, 2022, 613. DOI:10.1016/j.jhydrol.2022.128410 |
| [26] | Ma B J, Wu C G, Jia X H, et al. Predicting water quality using partial least squares regression of land use and morphology (Danjiangkou Reservoir, China)[J]. Journal of Hydrology, 2023, 624. DOI:10.1016/j.jhydrol.2023.129828 |
| [27] |
韩培培, 谢俭, 王剑, 等. 丹江口水库新增淹没区农田土壤重金属源解析[J]. 中国环境科学, 2016, 36(8): 2437-2443. Han P P, Xie J, Wang J, et al. Source apportionment of heavy metals in farmland soil from new submerged area in Danjiangkou Reservoir[J]. China Environmental Science, 2016, 36(8): 2437-2443. |
| [28] |
郭家钰, 王从锋, 林莉, 等. 丹江口水库氮磷营养盐分布规律及影响因子[J]. 环境科学与技术, 2025, 48(7): 94-103. Guo J Y, Wang C F, Lin L, et al. Distribution patterns and influencing factors of nitrogen and phosphorus nutrients in the Danjiangkou Reservoir[J]. Environmental Science & Technology, 2025, 48(7): 94-103. |
| [29] | Liao N, Li H, Zhang L L, et al. Coupled effects of environmental conditions on the spatio-temporal variability of phytoplankton in canyon-shaped reservoirs[J]. Journal of Cleaner Production, 2023, 386. DOI:10.1016/j.jclepro.2022.135797 |
| [30] |
张鑫, 潘保柱, 韩谞, 等. 泾河流域多沙河流浮游植物群落变化特征及驱动因子[J]. 环境科学, 2025, 46(6): 3382-3392. Zhang X, Pan B Z, Han X, et al. Variation characteristics and driving factors of phytoplankton community in the sediment-laden rivers of the Jinghe River basin[J]. Environmental Science, 2025, 46(6): 3382-3392. DOI:10.13227/j.hjkx.202405207 |
| [31] | Liu Q, Jiang Y, Huang X, et al. Hydrological conditions can change the effects of major nutrients and dissolved organic matter on phytoplankton community dynamics in a eutrophic river[J]. Journal of Hydrology, 2024, 628. DOI:10.1016/j.jhydrol.2023.130503 |
| [32] | Hou X, Hu X D, Li Y, et al. From disruption to adaptation: response of phytoplankton communities in representative impounded lakes to China's South-to-North Water Diversion Project[J]. Water Research, 2024, 261. DOI:10.1016/j.watres.2024.122001 |
| [33] | Wang Y J, Niu L H, Li Y, et al. Using modern coexistence theory to understand the distinct states of phytoplankton communities in a subtropical eutrophic river network[J]. Water Research, 2025, 274. DOI:10.1016/j.watres.2024.123062 |
| [34] |
陈天宇, 刘常清, 史小丽, 等. 近十年洪泽湖富营养化状态变化趋势及原因分析[J]. 环境科学, 2022, 43(7): 3523-3531. Chen T Y, Liu C Q, Shi X L, et al. Ten-year trend analysis of eutrophication status and the related causes in Lake Hongze[J]. Environmental Science, 2022, 43(7): 3523-3531. DOI:10.13227/j.hjkx.202110006 |
| [35] |
肖玉娜, 程靖华, 莫晓聪, 等. 丹江口水库浮游植物群落时空变化及其与环境因子的关系[J]. 湖泊科学, 2023, 35(3): 821-832. Xiao Y N, Cheng J H, Mo X C, et al. Spatio-temporal variation of phytoplankton community and its relationship with environmental factors in Danjiangkou Reservoir[J]. Journal of Lake Sciences, 2023, 35(3): 821-832. |
| [36] |
武俐, 来梦媛, 杨萌, 等. 小浪底水库早春溶解性有机质光谱特征对浮游植物群落变化的响应[J]. 生态学报, 2025, 45(4): 1736-1747. Wu L, Lai M Y, Yang M, et al. Relationship between dissolved organic matter spectral characteristics and phytoplankton in early spring in Xiaolangdi Reservoir[J]. Acta Ecologica Sinica, 2025, 45(4): 1736-1747. |
| [37] |
贺玉晓, 买思婕, 任玉芬, 等. 丹江口水库真核浮游植物群落分布特征及其与环境因子的关系[J]. 环境科学, 2022, 43(11): 5096-5105. He Y X, Mai S J, Ren Y F, et al. Characteristics of eukaryotic phytoplankton community structure and its relationship with environmental factors in Danjiangkou Reservoir[J]. Environmental Science, 2022, 43(11): 5096-5105. |
| [38] |
苏文杭, 闫龙, 王海龙, 等. 雅砻江干流着生藻类群落特征及生态位分析[J]. 水利水电技术(中英文), 2025, 56(7): 41-53. Su W H, Yan L, Wang H L, et al. Characteristics and niche analysis of periphyton communities in mainstream of Yalong River[J]. Water Resources and Hydropower Engineering, 2025, 56(7): 41-53. |
| [39] | Ai Y D, Cheng H G, Quan W C, et al. Response of phytoplankton community to dissolved organic matter composition and lake trophic state[J]. Journal of Environmental Management, 2024, 370. DOI:10.1016/j.jenvman.2024.122793 |
| [40] | Chu C J, Adler P B. Large niche differences emerge at the recruitment stage to stabilize grassland coexistence[J]. Ecological Monographs, 2015, 85(3): 373-392. DOI:10.1890/14-1741.1 |
| [41] | Letten A D, Hall A R, Levine J M. Using ecological coexistence theory to understand antibiotic resistance and microbial competition[J]. Nature Ecology & Evolution, 2021, 5(4): 431-441. |
| [42] | Spaak J W, De Laender F. Intuitive and broadly applicable definitions of niche and fitness differences[J]. Ecology Letters, 2020, 23(7): 1117-1128. DOI:10.1111/ele.13511 |
| [43] | Serre-Fredj L, Chasselin L, Jolly O, et al. Colimitation assessment of phytoplankton growth using a resource use efficiency approach in the Bay of Seine (French-English Channel)[J]. Journal of Environmental Management, 2022, 306. DOI:10.1016/j.jenvman.2022.114487 |
| [44] | Zhang Y, Zhang H C, Liu Q, et al. Total nitrogen and community turnover determine phosphorus use efficiency of phytoplankton along nutrient gradients in plateau lakes[J]. Journal of Environmental Sciences, 2023, 124. DOI:10.1016/j.jes.2022.02.005 |
| [45] | Liu X M, Chen L W, Zhang G X, et al. Spatiotemporal dynamics of succession and growth limitation of phytoplankton for nutrients and light in a large shallow lake[J]. Water Research, 2021, 194. DOI:10.1016/j.watres.2021.116910 |
| [46] | Gerhard M, Schlenker A, Hillebrand H, et al. Environmental stoichiometry mediates phytoplankton diversity effects on communities' resource use efficiency and biomass[J]. Journal of Ecology, 2022, 110(2): 430-442. DOI:10.1111/1365-2745.13811 |
| [47] | Gülzow N, Wahlen Y, Hillebrand H. Metaecosystem dynamics of marine phytoplankton alters resource use efficiency along stoichiometric gradients[J]. The American Naturalist, 2019, 193(1): 35-50. DOI:10.1086/700835 |
| [48] | Yang Y G, Chen H H, Abdullah Al M, et al. Urbanization reduces resource use efficiency of phytoplankton community by altering the environment and decreasing biodiversity[J]. Journal of Environmental Sciences, 2022, 112. DOI:10.1016/j.jes.2021.05.001 |
| [49] |
戴聪杰, 何剑锋, 王桂忠, 等. 混合营养型浮游生物生态学研究进展[J]. 生态学报, 2005, 25(9): 2399-2405. Dai C J, He J F, Wang G Z, et al. A review of ecological research on mixotrophic plankton[J]. Acta Ecologica Sinica, 2005, 25(9): 2399-2405. |
| [50] | Burkholder J M, Glibert P M, Skelton H M. Mixotrophy, a major mode of nutrition for harmful algal species in eutrophic waters[J]. Harmful Algae, 2008, 8(1): 77-93. DOI:10.1016/j.hal.2008.08.010 |
| [51] | Tilman D, Isbell F, Cowles J M. Biodiversity and ecosystem functioning[J]. Annual Review of Ecology, Evolution, and Systematics, 2014, 45. DOI:10.1146/annurev-ecolsys-120213-091917 |
| [52] |
何书晗, 欧阳添, 赵璐, 等. 三峡库区支流浮游植物群落稳定性及其驱动因子分析[J]. 环境科学, 2021, 42(7): 3242-3252. He S H, Ouyang T, Zhao L, et al. Analysis of phytoplankton community stability and influencing factors in a tributary of the Three Gorges Reservoir[J]. Environmental Science, 2021, 42(7): 3242-3252. DOI:10.13227/j.hjkx.202012096 |
| [53] | Chen B Z, Smith S L, Wirtz K W. Effect of phytoplankton size diversity on primary productivity in the North Pacific: trait distributions under environmental variability[J]. Ecology Letters, 2019, 22(1): 56-66. DOI:10.1111/ele.13167 |
| [54] | Ye L, Chang C W, Matsuzaki S I S, et al. Functional diversity promotes phytoplankton resource use efficiency[J]. Journal of Ecology, 2019, 107(5): 2353-2363. DOI:10.1111/1365-2745.13192 |