 2026, Vol. 47


2. 热带亚热带水生态工程教育部工程研究中心,广州 510632;
3. 华东理工大学资源与环境工程学院,上海 200237
 , TAI Yi-ping1,2
 , WANG Jia-xi3 , YANG Yu-fen1,2 , RUAN Wei-feng1,2 , YANG Yang1,2 , BAI Yu-long1,2 , ZHANG Xiao-meng1,2
2. Ministry of Education Engineering Research Center of Tropical and Subtropical Aquatic Ecological Engineering, Guangzhou 510632, China;
3. School of Resources and Environmental Engineering, East China University of Science and Technology, Shanghai 200237, China
随着集约化养殖业的快速发展,抗生素作为饲料添加剂的使用量持续增长,导致养殖废水中抗生素污染问题日益严重[1]. 已有研究证实,养殖废水中普遍检出磺胺类(3.3~324.4 μg·L-1)、四环素类(57.8~141.3 μg·L-1)和喹诺酮类(17.0~55.0 μg·L-1)等多种抗生素,混合质量浓度最高可达数百μg·L-1(80.8~685.6 μg·L-1),质量浓度差异较大[2~5]. 其中,磺胺类抗生素(SAs)因其化学结构稳定、水溶性强,在环境中持久残留,更易诱导微生物抗药性[6]. 研究表明,SAs暴露可显著增加sul1和sul2等抗性基因丰度(提升2~3个数量级),并促进耐药基因的水平转移[7],构成严重的生态与公共卫生风险[8].
人工湿地作为绿色污水处理技术,其效能高度依赖湿地植物的适应性及其根际环境稳定性[9,10]. 然而,抗生素对植物具有显著胁迫效应,其与植物种类以及污染质量浓度密切相关[11]. 有研究表明,低质量浓度(10~50 μg·L-1)即抑制芦苇(Phragmites australis)根系活性与叶绿素合成[12];中高质量浓度(近百μg·L-1至mg·L-1)进一步影响风车草(Cyperus alternifolius)光合色素合成,降低其含量[13]及沉水植物(Myriophyllum verticillatum、Vallisneria spiralis和Hydrilla verticillata)生物量(抑制率29.4%~56.9%)[14]. 现有研究多聚焦单一质量浓度下少数湿地植物地上部响应,对根系功能(如根系泌氧ROL和根系分泌有机碳TOC)在污染胁迫下的协同变化机制不足,而根系微界面过程恰恰是湿地系统污染物降解的核心环节[15~17].
当前数据多局限于环境相关质量浓度(≤500 μg·L-1),对高质量浓度冲击(如疫情期和事故排放)下植物耐受极限与响应模式知之甚少;根系ROL、孔隙度和TOC分泌物等关键根系功能指标如何协同调控植物耐受性,尚未在抗生素胁迫背景下解析;传统形态指标(如生物量)灵敏度不足,亟需整合生理生化参数构建普适性评价模型[18,19].
因此,本研究以华南地区10种典型湿地植物为对象,通过构建宽谱质量浓度梯度(50~5 000 μg·L-1),量化SAs胁迫对生长、形态与生理生化的质量浓度依赖性抑制效应,揭示湿地植物从环境本底到极端污染下的全质量浓度响应规律;整合根系形态(根数、根长和孔隙度)-功能(ROL)-代谢(碳分泌)多维指标,解析根系泌氧抑制与碳分泌激增的代谢响应机制;结合主成分分析(PCA)与隶属函数法,建立基于多维响应参数的综合耐受性评分方法,筛选兼具高耐受性与修复潜力的湿地植物,以期为人工湿地应对抗生素污染提供抗逆植物选种与根系调控的理论依据.
1 材料与方法 1.1 实验试剂和材料本研究选取10种常见人工湿地植物,均购自广东省内某苗圃,包括:泽泻(Alisma plantago-aquatica,AP)、芦竹(Arundo donax,AD)、黄菖蒲(Iris pseudacorus,IP)、再力花(Thalia dealbata,TD)、纸莎草(Cyperus papyrus,CP)、灯芯草(Juncus effusus,JE)、风车草(Cyperus alternifolius,CA)、翠芦莉(Ruellia brittoniana,RB)、天使花(Angelonia salicariifolia,AS)和美人蕉(Canna indica,CI). 选取均一植物幼苗,预处理后于25%霍格兰氏营养液预培养30~40 d(诱导新根形成),随后开展水培实验.
本研究选择养殖废水中普遍检出且易诱导耐药菌产生的磺胺类抗生素(SAs)作为污染物,包括:磺胺吡啶(sulfapyridine,SPD)、磺胺甲噁唑(sulfamethoxazole,SMX)、磺胺嘧啶(sulfadiazine,SDZ)、磺胺甲基嘧啶(sulfamerazine,SMZ1)和磺胺二甲基嘧啶(sulfamethazine,SMZ2)[20]. 所有SAs标准品均购自德国Dr. Ehrensorfer公司,纯度 > 99%,参照Wang等[21]的方法,分别配制各抗生素单标储备液(100 mg·L-1,-20℃避光保存),用于建立超高效液相色谱-质谱联用系统(QTRAP5500,美国ABI SCIEX公司)的定量检测标准曲线(相关系数R2=0.999). 水培实验中5种SAs均购自上海阿拉丁公司(纯度 > 98%),采用霍格兰氏培养液配制低(50 μg·L-1)、中(500 μg·L-1)和高(5 000 μg·L-1)这3个梯度SAs混合溶液(5种抗生素等比例混合,各占总质量浓度1/5),每次换水更新处理液.
胁迫质量浓度梯度设置为50~5 000 μg·L-1,按10倍递增(低、中和高质量浓度分别覆盖实际检出范围、近混合极值和胁迫阈值),各质量浓度独立测试[11]. 此设计参考了养殖废水实测值、文献及胁迫实验等比几何级数原则,并基于前期预实验(50 μg·L-1和500 μg·L-1对美人蕉和黄菖蒲无抑制)[22],旨在通过宽范围、大梯度考察10种湿地植物的响应,以此确定胁迫效应范围及后续分子机制研究的转折点质量浓度.
1.2 实验设计本研究设置对照(0)、低(50 μg·L-1)、中(500 μg·L-1)和高(5 000 μg·L-1)这4组处理(各质量浓度含3个独立平行),采用水培系统模拟胁迫环境:4 L塑料桶装载2 L 25%霍格兰培养液(pH=6),每桶固定4株同种植物(根系悬垂),外覆遮光膜. 实验于暨南大学温室(26℃~28℃,湿度为60%~80%)开展,持续4周,每周更新SAs混合培养液并补充纯水维持液位,以抵消蒸腾作用减少的水量.
本实验结束收获植物,洗净后分别记录和测定各处理组的植物指标包括:①生长及形态指标:整株鲜重、地上部分生物量、根生物量、株高、叶片数、根数、最大根长和根孔隙度;②生理生化指标:叶绿素a、叶绿素b、总叶绿素含量、根系泌氧、根表铁膜、根系分泌物总有机碳和无机碳.
1.3 指标测定方法植物一般生长指标通过直接测量或者称重获得;根孔隙度、根系泌氧及根表铁膜分别使用比例瓶浮力差法[23]、柠檬酸钛比色法[24]和DCB-邻菲啰啉比色法[25]进行测定;叶片叶绿素含量测定参照文献[26]的方法;根系总有机碳(TOC)和无机碳(IC)采用碳分析仪测定;溶解氧DO、酸碱度pH和盐度SAL等使用便携式多参数水质检测仪(YSI)进行测定.
1.4 数据处理及分析数据分析使用Excel、SPSS 26.0(方差和相关性分析)以及Origin 2022(作图)软件.
为消除植物种间差异对耐受性评估的干扰,采用相对指标(relative indicators,RI)来进行分析,计算公式如式(1):
| (1) |
式中,RI为处理组与对照组所测指标实测数值的比值,T和CK分别为处理组和对照组指标,RI > 1表示促进,等于1表示无影响,< 1表示抑制.
利用雷达图多维对比植物耐受差异,采用主成分分析-隶属函数法综合评价植物耐受性,该成熟方法通过多维度整合克服单一指标局限性,其有效性与普适性已在农作物及林木品质筛选中广泛验证[27]. 主成分分析通过降维将多指标转化为少数综合主成分,计算各主成分的权重[Wj,公式(2)],继而结合隶属函数标准化值[Uj,公式(3)]生成综合指标评价值[D,公式(4)],计算公式如下:
| (2) |
| $U_j=\left(C_j-C_{j \min }\right) /\left(C_{j \max }-C_{j \min }\right) $ | (3) |
| (4) |
式中,Wj为第j主成分权重(由贡献率Pj计算);Uj为第j主成分隶属函数值(标准化值),用于消除指标量纲差异;Cj为第j主成分得分,其极值Cjmax/Cjmin反映各植物在第j主成分的响应变异范围;D为植物耐受性综合评价值,D值越大,耐受性越强.
2 结果与分析 2.1 生长及形态响应特征低至高质量浓度(50~5 000 μg·L-1)磺胺类抗生素处理下湿地植物呈现差异化响应(图 1和图 2):低质量浓度SAs时,仅泽泻根数、风车草株高有所增加(P > 0.05),多数指标稳定;中质量浓度SAs显著抑制黄菖蒲鲜质量、泽泻/美人蕉根干质量及最大根长以及灯芯草/美人蕉根孔隙度等指标(P < 0.05),但泽泻根数逆势增加(P < 0.05);高质量浓度SAs则普遍抑制植物生长指标(如泽泻、芦竹和美人蕉的鲜质量、根干质量、根数及最大根长降幅显著)(P < 0.05),相比之下,纸莎草高质量浓度处理下生长指标均无显著变化,凸显其强耐受力.

|
图 1 部分湿地植物在不同质量浓度SAs处理组的实验照片 Fig. 1 Experimental photographs of selected wetland plants under varying SAs treatment concentrations |

|
AP、AD、IP、TD、CP、JE、CA、RB、AS和CI分别表示:泽泻、芦竹、黄菖蒲、再力花、纸莎草、灯芯草、风车草、翠芦莉、天使花和美人蕉;不同小写字母标记同一植物各污染处理组间差异显著(P < 0.05) 图 2 10种湿地植物生长及形态指标对磺胺类抗生素胁迫的响应(n=3) Fig. 2 Growth and morphological indicators of ten wetland plants under sulfonamide antibiotic stress (n=3) |
生长及形态变化特征如图 3所示. 随着SAs质量浓度升高(50~5 000 μg·L-1),10种湿地植物的生长指标相对系数(RI)呈现质量浓度依赖性抑制(RI值由近1降至0.4~0.7),其中根系发育指标(根数、最大根长和根孔隙度)对高质量浓度SAs(5 000 μg·L-1)最为敏感(RI下降幅度最大). 仅泽泻(AP)的根数(RI > 1)和芦竹(AD)的根孔隙度表现出适应性增强,而多数植物(如芦竹、黄菖蒲、风车草等)根干质量、根数、最大根长和根孔隙度等指标显著降低(RI < 1). 地上部分指标(干质量、株高和叶片数)在纸莎草(CP)和再力花(RB)等植物中保持稳定(RI≈1),其中纸莎草全质量浓度处理下各指标RI值均 > 0.95,耐性显著. 本研究揭示,根系对SAs胁迫的响应敏感性显著高于地上部,且植物通过根系结构优化(如泽泻根数增加)或整体抗性机制(如纸莎草)实现差异化耐受策略.

|
AP、AD、IP、TD、CP、JE、CA、RB、AS和CI分别表示:泽泻、芦竹、黄菖蒲、再力花、纸莎草、灯芯草、风车草、翠芦莉、天使花和美人蕉;RI值反映指标响应(> 1表示促进,等于1表示无影响,< 1表示抑制);绿色标注表示随SAs质量浓度升高显著降低(*表示P < 0.05,**表示P < 0.01,***表示P < 0.001),红色标注表示随SAs质量浓度升高显著升高,黑色标注表示无质量浓度依赖性差异 图 3 磺胺类抗生素胁迫下10种湿地植物生长及形态相对指标(RI)的分布特征 Fig. 3 Growth and morphological relative indicators (RI) of ten wetland plants under sulfonamide antibiotic stress |
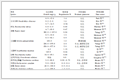
植物生长及形态指标相对系数(RI)的双因素方差分析结果如表 1所示,各植物生长及形态指标的相对系数均表现出显著差异(P=0.000),其中植物种类对根数的调控效应最显著(F=22.972),而处理质量浓度对根数相对系数(RI)的抑制效应最强(F=32.902,P < 0.05),但地上生物量RI未受显著影响(P=0.102). 植物种类的主效应表现在生物量、株高和根孔隙度等指标,而处理质量浓度的主效应表现在叶片数、根数、最大根长等指标,植物种类和处理质量浓度的交互作用对以上指标也存在显著影响(P < 0.05),尤其是在最大根长和根数方面(P=0.000),这表明根系生长特征在SAs污染下的敏感性.
|
表 1 植物生长及形态指标相对值的双因素方差分析1) Table 1 Univariate two-way analysis of variance for relative growth and morphological indicators |
2.2 生理生化响应特征
湿地植物在不同质量浓度磺胺类抗生素处理下的生理生化原始指标响应特征如图 4所示. 低质量浓度SAs(50 μg·L-1)促进部分植物叶绿素合成(如泽泻和芦竹),但差异不显著(P > 0.05);中质量浓度SAs(500 μg·L-1),风车草和美人蕉的叶绿素含量呈现下降趋势;随质量浓度升高至5 000 μg·L-1,敏感植物(再力花、风车草和美人蕉)叶绿素显著下降(P < 0.05). SAs抑制多数植物根系泌氧量(黄菖蒲和天使花等ROL显著降低,P < 0.05),但诱导芦竹、美人蕉根表铁膜富集(P < 0.05);高质量浓度下纸莎草和再力花等根系碳分泌(TOC)显著增加(P < 0.05),反映植物通过铁膜固持与碳代谢强化协同响应胁迫.

|
AP、AD、IP、TD、CP、JE、CA、RB、AS和CI分别表示泽泻、芦竹、黄菖蒲、再力花、纸莎草、灯芯草、风车草、翠芦莉、天使花和美人蕉;不同小写字母标记同一植物各污染处理组间差异显著(P < 0.05) 图 4 10种湿地植物生理生化指标对磺胺类抗生素胁迫的响应(n=3) Fig. 4 Physiological and biochemical indicators of the ten wetland plants under sulfonamide antibiotic stress (n=3) |
10种湿地植物各生理生化指标的相对系数(RI)变化特征如图 5所示. 低质量浓度SAs(50 μg·L-1)可促进多数植物的光合作用(叶绿素RI > 1),但随质量浓度升至5 000 μg·L-1,敏感植物(如风车草和美人蕉)叶绿素RI显著降低(RI < 1,P < 0.05);根系相应呈现差异化:高质量浓度SAs抑制多数植物泌氧能力(ROL-RI < 1),但显著诱导芦竹、美人蕉根表铁膜富集(RI > 1),并促使纸莎草等植物提升根系碳分泌量(TOC/IC-RI > 1),揭示湿地植物通过铁膜固持或碳代谢强化等策略应对SAs胁迫. 总体来看,低质量浓度SAs对植物的光合作用和碳释放具有一定促进作用,而高质量浓度SAs则显著抑制叶绿素含量和根系活性,部分植物表现出根系碳释放增强以应对高质量浓度胁迫环境,这涉及复杂的生理和分子层面的适应性反应.

|
AP、AD、IP、TD、CP、JE、CA、RB、AS和CI分别表示:泽泻、芦竹、黄菖蒲、再力花、纸莎草、灯芯草、风车草、翠芦莉、天使花和美人蕉;RI值反映指标响应(> 1表示促进,=1表示无影响,< 1表示抑制);绿色标注表示随SAs质量浓度升高显著降低(*表示P < 0.05,**表示P < 0.01,***表示P < 0.001),红色标注表示随SAs质量浓度升高显著升高,黑色标注表示无质量浓度依赖性差异 图 5 磺胺类抗生素胁迫下10种湿地植物生理生化相对指标(RI)的分布特征 Fig. 5 Physio-biochemical relative indicators (RI) of the ten wetland plants under sulfonamide antibiotic stress |
如表 2所示,植物种类显著影响除叶绿素b外的所有生理生化指标(P < 0.05),尤以根系碳分泌(TOC/IC)响应最突出(F=8 683.676/2 466.465,P=0.000);处理质量浓度对所有生理生化指标均具显著效应(P < 0.05),TOC受质量浓度驱动最强(F=74 661.930). 二者交互作用对根系指标效应最显著(P < 0.05),TOC(F=8 111.917)与IC(F=1 872.906)的协同效应揭示植物对SAs污染适应机制存在种间异质性.
|
|
表 2 植物生理生化指标相对值的双因素方差分析1) Table 2 Univariate two-factor ANOVA of relative physiological and biochemical indicators |
2.3 耐受性影响分析
植物生长指标(生物量和根系特征等)间呈显著正相关(P < 0.05),而生理生化响应具质量浓度依赖性:低质量浓度SAs下根数与叶绿素含量正相关,最大根长与ROL负相关(P < 0.05)[图 6(a)];中质量浓度时,根系分泌TOC与根表铁膜含量主导关联[图 6(b)];高质量浓度条件下,ROL与根孔隙度协同增强(P < 0.001)[图 6(c)]. Mantel检验揭示,ROL、根表铁膜及TOC是核心生理调控因子,生物量与根孔隙度为关键响应指标[图 6(d)].

|
(a)~(c)依次为低(50 μg·L-1)、中(500 μg·L-1)和高(5 000 μg·L-1)质量浓度SAs处理组与对照组的指标相对值(RI)相关性及Mantel检验,(d)为3种质量浓度RI均值整合分析;数字对应植物生长、形态及生理指标:1.鲜重,2.地上干重,3.根干重,4.株高,5.叶片数,6.根数,7.最大根长,8.根孔隙度,9.Chla,10.Chl b,11.TChl,12.根系泌氧,13.根表铁膜,14.总有机碳和15.无机碳;方格颜色表示植物指标之间正(紫色)负(绿色)相关关系,方格大小表示植物指标之间的相关强度(Pearson相关系数|r|;线条颜色表示环境因子与植物指标的相关关系(绿色表示正相关,灰色表示不相关,紫色表示负相关),线条粗细表示环境因子与植物指标的相关强度(Mantel检验相关系数|r|),实线表示环境因子与植物指标相关关系的显著水平(*表示P < 0.05,**表示P < 0.01,***表示P < 0.001),虚线表示不显著 图 6 植物各指标间的相关分析及环境影响的Mantel检验分析 Fig. 6 Analysis of interrelationships among plant indicators and environmental influences using Mantel test |
综上所述,湿地植物在SAs污染下表现出“低促高抑”策略:低质量浓度通过提升ROL与TOC分泌维持光合效能;高质量浓度抑制ROL并加剧TOC释放,导致系统氧-碳失衡,盐度与pH波动,对植物生理功能抑制作用增强,植物的耐受策略面临更大挑战.
2.4 耐受性综合评估基于主成分分析与隶属函数法的综合评价结果如表 3所示,主成分分析(PCA)提取5个主成分(PC1~PC2),累计方差贡献率(P)达91.8%,表明这些主成分能够充分代表原始15项指标所包含的生物学信息. 各主成分所对应的累计贡献率揭示了不同生理功能在耐受性中的贡献率,PC1(贡献率38.11%,下同)主要代表生物量积累与整体长势,PC2(20.34%)关联光合色素合成能力,PC3(14.73%)反映根系结构与氧代谢特征,PC4与PC5分别捕捉根表铁膜形成与根系碳分泌策略等特异性响应. 根据成分得分系数矩阵计算各植物5个主成分上的得分(C1~C5),将主成分得分标准化得到隶属函数值(U1~U5),并按照各项主成分贡献率来分配对应的权重(W),最终整合计算出统一的耐受性评价值(D值). 10种湿地植物对磺胺类抗生素(SAs)的耐受性(D值=1表示最强,为0表示最弱)排序为:纸莎草(D=0.783) > 泽泻(0.652) > 翠芦莉 > 天使花 > 黄菖蒲 > 再力花 > 芦竹 > 灯芯草 > 风车草(0.298) > 美人蕉(0.274).
|
|
表 3 10种湿地植物耐SAs污染能力的综合评价结果1) Table 3 Comprehensive evaluation of the tolerance to SAs pollution of the ten wetland plant species |
进一步关联分析表明,植物鲜重(r=0.781)、根干重(r=0.707)、总叶绿素(r=0.707)、叶绿素a(r=0.694)、根数(r=0.673)和TOC分泌量(r=0.673)相对值与D值呈极显著正相关(P < 0.01),揭示生物量积累、光合效能及根系碳代谢活性是影响湿地植物SAs耐受性的核心驱动因子,其中纸莎草综合耐受性最强.
3 讨论高质量浓度磺胺类抗生素(SAs,5 000 μg·L-1)显著抑制湿地植物根系发育,表现为根数减少(抑制率最高76.1%)、最大根长缩短(60.9%)、根孔隙度降低(52.2%)及根系泌氧(ROL)下降(86.4%). 有研究指出,该抑制效应源于SAs破坏根细胞膜完整性,干扰水分/离子运输[28,29]. 这一现象与植物在低质量浓度SAs(50 μg·L-1)下的响应形成鲜明对比——后者甚至促进光合色素合成(增幅6.5%~34.6%),凸显SAs胁迫的质量浓度依赖性双面效应. 这为人工湿地处理中低质量浓度抗生素废水(≤500 μg·L-1)提供了适用边界[30],而本研究对高质量浓度(5 000 μg·L-1)的探究,则验证了特殊事件下人工湿地实际修复的潜力[31].
根系防御机制的种间差异是耐受性分化的关键. 根表铁膜(RIP)在芦竹和美人蕉中随着SAs质量浓度升高而显著增加(RI > 1,P < 0.05),其多孔结构通过吸附SMX并激活Fe2+介导的·OH自由基生成促进污染物降解[32~34];相反,天使花的RIP在5 000 μg·L-1时即显著减少,揭示其耐受阈值低于其他物种. 这种差异也印证了Yue等[33]提出的“根表铁膜污染抗性的种间特异性”理论. 根系分泌物驱动的碳分配策略是另一核心耐受机制. 在低质量浓度SAs(50 μg·L-1)下,泽泻通过增加TOC分泌(增长20.97%)刺激根际微生物活性;而高质量浓度(5 000 μg·L-1)则触发纸莎草和再力花的TOC暴发性释放(12.18倍和5.84倍). 结合根干质量锐减(75.7%)与ROL抑制(86.4%)数据,表明植物将有限碳资源从结构生长转向分泌防御,这与有机酸等碳源缓解植物毒性的报道一致[35~37]. 有研究进一步证实[38~40],根系碳分配向分泌物的倾斜是根系应对高环境胁迫的普适策略,但本研究发现纸莎草能同步维持较高ROL(RI > 0.97),凸显其独特的碳-氧代谢协调能力. 光合抑制是高质量浓度SAs胁迫的另一连锁效应. 风车草总叶绿素在SAs 5 000 μg·L-1下降至对照的48%(RI=0.48),直接导致ROL减少(30%~86.4%),灯心草也呈现同样的响应模式(总叶绿素含量下降55%,ROL下降51%),皆形成“光合受损至供氧不足导致污染物氧化途径受限”的恶性循环[41~43]. 纸莎草因C4光合途径及茎部通气结构,在同等胁迫下维持ROL稳定(RI > 0.97),其叶绿素含量呈现促进(促进率21.4%),而风车草抑制率高达52%,印证植物物种光合结构特性对其代谢稳态的保障作用[44].
基于主成分分析筛选的耐受指标(根数、根干重、叶绿素和TOC等)构建的综合评价模型(D值)显示,纸莎草(0.783)和泽泻(0.650)在全质量浓度梯度中表现最优. 其耐受性源于三重协同机制:铁膜固持屏障(高RIP吸附容量)、碳代谢弹性(TOC分泌动态调控)及光合稳定性(叶绿素与ROL维持). 以上物种在南方广泛应用,并显示北方适应性潜力——尽管冬季低温短暂抑制其修复效能,但春夏季可恢复[45]. 通过混种纸莎草(碳分泌优势,高质量浓度增效> 12倍)与泽泻(中低质量浓度TOC增效稳定且最高,达1.3倍),可构建质量浓度梯度响应的互补系统,提升人工湿地的全年稳定性. 未来研究应聚焦分子机制解析与生态工程优化,推动湿地修复技术的精准化应用.
4 结论(1)质量浓度依赖性生长抑制效应:高质量浓度SAs(5 000 μg·L-1)显著抑制湿地植物生长,根干重(抑制率75.7%)、根数(76.1%)、最大根长(60.9%)及根孔隙度(52.2%)为最敏感指标,揭示根系结构损伤是限制污染物吸收的关键瓶颈.
(2)根系防御策略及种间分化:芦竹与美人蕉通过铁膜增量(RI > 1)构建氧化屏障缓解损伤,而天使花等物种则因铁膜衰减暴露脆弱性,印证根表抗性机制存在显著种间差异;SAs胁迫触发纸莎草根系有机碳与无机碳分泌最大增幅达12.19倍与2.03倍(P < 0.05),表明植物将资源从结构生长转向分泌防御以增强耐受性.
(3)光合-泌氧协同抑制效应:叶绿素含量下降(如风车草抑制率52%)与根系泌氧(ROL)减少(最高86.4%)规律响应,形成“光合受损→根系供氧受限”协同趋势,唯纸莎草维持高ROL(RI > 0.97),表现出较优适应性.
(4)耐受物种筛选:基于根数、根干重、叶绿素及TOC 4项敏感指标构建的评价方法(PCA-隶属函数法)显示,纸莎草(D=0.781)和泽泻(D=0.650)具最优综合耐受性.
| [1] | Barathe P, Kaur K, Reddy S, et al. Antibiotic pollution and associated antimicrobial resistance in the environment[J]. Journal of Hazardous Materials Letters, 2024, 5. DOI:10.1016/j.hazl.2024.100105 |
| [2] | Tang L G, Li J Z, Yu Z L, et al. Improving antibiotic resistance removal from piggery wastewater by involving zero-valent iron within an integrated anoxic-aerobic biofilm reactor[J]. Chemical Engineering Journal, 2024, 493. DOI:10.1016/j.cej.2024.152688 |
| [3] | Wang B Q, Xu Z X, Dong B. Occurrence, fate, and ecological risk of antibiotics in wastewater treatment plants in China: a review[J]. Journal of Hazardous Materials, 2024, 469. DOI:10.1016/j.jhazmat.2024.133925 |
| [4] |
陈铨乐, 卢思敏, 何良英, 等. 磺胺嘧啶和泰乐菌素对养猪废水硝化作用的差异性影响[J]. 生态毒理学报, 2023, 18(2): 286-296. Chen Q L, Lu S M, He L Y, et al. Differential effects of sulfadiazine and tylosin on nitrification of swine wastewater[J]. Asian Journal of Ecotoxicology, 2023, 18(2): 286-296. |
| [5] | Cheng D L, Ngo H H, Guo W S, et al. A critical review on antibiotics and hormones in swine wastewater: water pollution problems and control approaches[J]. Journal of hazardous materials, 2020, 387. DOI:10.1016/j.jhazmat.2019.121682 |
| [6] | Li J L, O'Brien J W, Tscharke B J, et al. Occurrence, removal, and risk assessment of antimicrobials and their transformation products in effluent from Australian wastewater treatment plants[J]. Environmental Science & Technology, 2025, 59(13): 6825-6838. |
| [7] | Yan X J, Liu W W, Wen S F, et al. Effect of sulfamethazine on the horizontal transfer of plasmid-mediated antibiotic resistance genes and its mechanism of action[J]. Journal of Environmental Sciences, 2023, 127: 399-409. DOI:10.1016/j.jes.2022.06.014 |
| [8] | Larsson D G J, Flach C F. Antibiotic resistance in the environment[J]. Nature Reviews Microbiology, 2022, 20(5): 257-269. DOI:10.1038/s41579-021-00649-x |
| [9] | McCorquodale-Bauer K, Grosshans R, Zvomuya F, et al. Critical review of phytoremediation for the removal of antibiotics and antibiotic resistance genes in wastewater[J]. Science of the Total Environment, 2023, 870. DOI:10.1016/j.scitotenv.2023.161876 |
| [10] | Zhou T, An Q Y, Zhang L, et al. Phytoremediation for antibiotics removal from aqueous solutions: a meta-analysis[J]. Environmental Research, 2024, 240. DOI:10.1016/j.envres.2023.117516 |
| [11] | Wei H M, Hashmi M Z, Wang Z. The interactions between aquatic plants and antibiotics: progress and prospects[J]. Environmental Pollution, 2024, 341. DOI:10.1016/j.envpol.2023.123004 |
| [12] | Zhang L, Bai J H, Zhang K G, et al. Characterizing bacterial communities in Phragmites australis rhizosphere and non-rhizosphere sediments under pressure of antibiotics in a shallow lake[J]. Frontiers in Microbiology, 2022, 13: 1092854. DOI:10.3389/fmicb.2022.1092854 |
| [13] | Li Y T, Zhang Y N, Wang D Y, et al. Effect of antibiotics on diverse aquatic plants in aquatic ecosystems[J]. Aquatic Toxicology, 2025, 281. DOI:10.1016/j.aquatox.2025.107289 |
| [14] | Mu X Y, Chen C L, Fan Q Y, et al. Removal and ecological impact of sulfamethoxazole and N-acetyl sulfamethoxazole in mesocosmic wetlands dominated by submerged plants: plant tolerance, microbial response, and nitrogen transformation[J]. Science of the Total Environment, 2025, 958. DOI:10.1016/j.scitotenv.2024.178034 |
| [15] | Wu B B, Wang J Y, Dai H Y, et al. Radial oxygen loss triggers diel fluctuation of cadmium dissolution in the rhizosphere of rice[J]. Environmental Science & Technology, 2024, 58(33): 14718-14725. |
| [16] | Pang Z Q, Xu P. Probiotic model for studying rhizosphere interactions of root exudates and the functional microbiome[J]. The ISME Journal, 2024, 18(1). DOI:10.1093/ismejo/wrae223 |
| [17] | Afridi M S, Kumar A, Javed M A, et al. Harnessing root exudates for plant microbiome engineering and stress resistance in plants[J]. Microbiological Research, 2024, 279. DOI:10.1016/j.micres.2023.127564 |
| [18] |
秦玉春, 邹涛, 张璇, 等. 氧氟沙星胁迫下5种湿地植物及其根系微生物群落的差异性响应[J]. 环境工程技术学报, 2023, 13(3): 1079-1087. Qin Y C, Zou T, Zhang X, et al. Differential responses of five wetland plants and their root microbial communities under ofloxacin pollution stress[J]. Journal of Environmental Engineering Technology, 2023, 13(3): 1079-1087. |
| [19] | Ohore O E, Qin Z R, Sanganyado E, et al. Ecological impact of antibiotics on bioremediation performance of constructed wetlands: microbial and plant dynamics, and potential antibiotic resistance genes hotspots[J]. Journal of Hazardous Materials, 2022, 424. DOI:10.1016/j.jhazmat.2021.127495 |
| [20] | Robles-Jimenez L E, Aranda-Aguirre E, Castelan-Ortega O A, et al. Worldwide traceability of antibiotic residues from livestock in wastewater and soil: a systematic review[J]. Animals, 2021, 12(1). DOI:10.3390/ani12010060 |
| [21] | Wang J X, Man Y, Ruan W F, et al. The effect of rhizosphere and the plant species on the degradation of sulfonamides in model constructed wetlands treating synthetic domestic wastewater[J]. Chemosphere, 2022, 288. DOI:10.1016/j.chemosphere.2021.132487 |
| [22] | Ruan W F, Wang J X, Huang J, et al. The in vivo and vitro degradation of sulfonamides in wetland plants reducing phytotoxicity and environmental pollution[J]. Environmental Science and Pollution Research, 2022, 29(43): 64972-64982. DOI:10.1007/s11356-022-20395-8 |
| [23] |
何孟轲, 杨俊兴, 郭雨乐. 厌氧环境对25种湿地植物生长状况及渗氧能力的影响[J]. 植物生理学报, 2023, 59(12): 2277-2288. He M K, Yang J X, Guo Y L. Effects of anaerobic environment on the growth and radial oxygen loss of 25 wetland plants[J]. Plant Physiology Journal, 2023, 59(12): 2277-2288. |
| [24] | Kludze H K, DeLaune R D, Patrick Jr W H. A colorimetric method for assaying dissolved oxygen loss from container‐grown rice roots[J]. Agronomy Journal, 1994, 86(3): 483-487. DOI:10.2134/agronj1994.00021962008600030005x |
| [25] | Taylor G J, Crowder A A. Use of the DCB technique for extraction of hydrous iron oxides from roots of wetland plants[J]. American Journal of Botany, 1983, 70(8): 1254-1257. DOI:10.1002/j.1537-2197.1983.tb12474.x |
| [26] |
赖胜, 邱兰兰, 杨慧林, 等. 不同微塑料胁迫下水稻(Oryza sativa)的生理生态响应以及转录组学分析[J]. 环境科学, 2025, 46(4): 2590-2599. Lai S, Qiu L L, Yang H L, et al. Physiological and Ecological response characteristics and transcriptomic change characteristics of rice (Oryza sativa) under different microplastic stresses[J]. Environmental Science, 2025, 46(4): 2590-2599. DOI:10.13227/j.hjkx.202401125 |
| [27] |
赵雷, 靳海笛, 曹晓云, 等. 六个东方铁筷子品种对干旱胁迫的生理响应及抗旱性评价[J]. 应用生态学报, 2023, 34(10): 2644-2654. Zhao L, Jin H D, Cao X Y, et al. Physiological response to drought stress and drought resistance of six Helleborus orientlis cultivars[J]. Chinese Journal of Applied Ecology, 2023, 34(10): 2644-2654. |
| [28] |
胡劲召, 张璇, 王永强, 等. 磺胺甲恶唑胁迫下人工湿地植物与根际微生物的响应[J]. 环境工程技术学报, 2022, 12(5): 1474-1483. Hu J Z, Zhang X, Wang Y Q, et al. Responses of plants and rhizosphere microorganisms in constructed wetlands under sulfamethoxazole stress[J]. Journal of Environmental Engineering Technology, 2022, 12(5): 1474-1483. |
| [29] | Duan W Y, Cui H W, Jia X Y, et al. Occurrence and ecotoxicity of sulfonamides in the aquatic environment: a review[J]. Science of the Total Environment, 2022, 820. DOI:10.1016/j.scitotenv.2022.153178 |
| [30] | Wu H M, Wang R G, Yan P H, et al. Constructed wetlands for pollution control[J]. Nature Reviews Earth & Environment, 2023, 4(4): 218-234. |
| [31] | Rocha D C, da Silva Rocha C, Tavares D S, et al. Veterinary antibiotics and plant physiology: an overview[J]. Science of the Total Environment, 2021, 767. DOI:10.1016/j.scitotenv.2020.144902 |
| [32] | Tang J, Wang P F, Xie Z X, et al. Effect of iron plaque on antibiotic uptake and metabolism in water spinach (Ipomoea aquatic Forsk.) grown in hydroponic culture[J]. Journal of Hazardous Materials, 2021, 417. DOI:10.1016/j.jhazmat.2021.125981 |
| [33] | Yue J Y, Hu X J, Xie H J, et al. Enhancing emerging pollutant removal mediated by root iron plaques: integrated abiotic and biotic effects[J]. Journal of Hazardous Materials, 2025, 485. DOI:10.1016/j.jhazmat.2024.136900 |
| [34] | Fan Y Y, Sun S S, He S B. Iron plaque formation and its effect on key elements cycling in constructed wetlands: functions and outlooks[J]. Water Research, 2023, 235. DOI:10.1016/j.watres.2023.119837 |
| [35] | Liu H W, Brettell L E, Qiu Z G, et al. Microbiome-mediated stress resistance in plants[J]. Trends in Plant Science, 2020, 25(8): 733-743. DOI:10.1016/j.tplants.2020.03.014 |
| [36] | Singh D P, Maurya S, Satnami L, et al. Roots of resistance: unraveling microbiome-driven plant immunity[J]. Plant Stress, 2024, 14. DOI:10.1016/j.stress.2024.100661 |
| [37] | Zhou T, Yu Z Y, Zhang L, et al. Removal of sulfonamides from water by wetland plants: performance, microbial response and mechanism[J]. Science of the Total Environment, 2024, 916. DOI:10.1016/j.scitotenv.2024.170181 |
| [38] |
毛梦雪, 朱峰. 根系分泌物介导植物抗逆性研究进展与展望[J]. 中国生态农业学报(中英文), 2021, 29(10): 1649-1657. Mao M X, Zhu F. Progress and perspective in research on plant resistance mediated by root exudates[J]. Chinese Journal of Eco-Agriculture, 2021, 29(10): 1649-1657. |
| [39] | Chen J, Liu S S, He L X, et al. The fate of sulfonamides in the process of phytoremediation in hydroponics[J]. Water Research, 2021, 198. DOI:10.1016/j.watres.2021.117145 |
| [40] | Zhang L, Yan C Z, Qi R, et al. Quantifying the contribution rates of sulfonamide antibiotics removal mechanisms in constructed wetlands using multivariate statistical analysis[J]. Environmental Pollution, 2022, 292. DOI:10.1016/j.envpol.2021.118463 |
| [41] | Sharma A, Kumar V, Shahzad B, et al. Photosynthetic response of plants under different abiotic stresses: a review[J]. Journal of Plant Growth Regulation, 2020, 39(2): 509-531. |
| [42] | Song Y, Feng L, Alyafei M A M, et al. Function of chloroplasts in plant stress responses[J]. International Journal of Molecular Sciences, 2021, 22(24). DOI:10.3390/ijms222413464 |
| [43] | Rehman F, Usman A, Ditta A, et al. Optimal root oxygen release from two macrophytes Saururus cernuus L. and Pistia stratiotes L. varies with light and temperature in simulated constructed wetlands microcosms[J]. Rhizosphere, 2023, 26. DOI:10.1016/j.rhisph.2023.100697 |
| [44] | Li M R, Jones M B. CO2 and O2 transport in the aerenchyma of Cyperus papyrus L[J]. Aquatic Botany, 1995, 52(1-2): 93-106. DOI:10.1016/0304-3770(95)00484-H |
| [45] | Licata M, Farruggia D, Tuttolomondo T, et al. Seasonal response of vegetation on pollutants removal in constructed wetland system treating dairy wastewater[J]. Ecological Engineering, 2022, 182. DOI:10.1016/j.ecoleng.2022.106727 |