 2026, Vol. 47


微生物是湖泊生态系统中重要的生命体和组成成分,在促进湖泊生态系统中物质的转化和能量的流动方面扮演着极为重要的角色[1]. 湖泊生态系统中微生物类群可以分为原核微生物和真核微生物,它们在湖泊生态系统中占据重要的生态位[2]. 有研究结果发现参与生境中氮素循环转化过程的主要类群为细菌,细菌中的变形菌门(Proteobacteria)、绿弯菌门(Chloroflexi)和放线菌门(Actinobacteria)是氮素循环和转化过程中最为优势的细菌门[1,3]. 湖泊生态系统中稳定的氮转化过程是维持其水生态安全的关键,氮素作为微生物生长、代谢与繁殖过程中必不可少的营养成分,其浓度和存在形态也直接影响微生物群落生长状态,水质条件和生态系统功能[4,5].
湖泊生态系统中微生物参与的氮转化过程是一个开放的循环,水体中的氮素主要来源于外源输入、内源释放和生物固氮这3个方面[6],主要包括硝化过程、反硝化过程、异化硝酸盐还原过程、同化硝酸盐还原过程、固氮过程、厌氧氨氧化和氨化过程等氮的不同形态的转化过程[7,8],其中微生物介导的硝化和反硝化等过程的中间产物氧化亚氮(N2O)是一种强有效的温室气体[9]. 先前研究结果发现蓝菌门(Cyanobacteria)和Proteobacteria主要参与了生境中的氮固定过程,好氧氨氧化细菌(AOB)和古菌(AOA)主要参与氨氧化过程,亚硝酸盐氧化细菌(NOB)参与亚硝酸盐氧化过程,子囊菌门(Ascomycota)和泉古菌门(Crenarchaeota)参与反硝化过程,浮霉菌门(Planctomycetes)参与厌氧氨氧化过程[10]. 微生物参与生境中氮转化过程是通过包括氧化亚氮还原酶基因(nosZ)、亚硝酸盐还原酶基因(nirS/nirK)和氨单加氧酶基因(amoA)等众多功能基因的表达来完成,氮转化过程也进一步对其生境中的氮滞留和N2O的排放进行调控[11~13]. 因此,研究湖泊生态系统氮转化微生物群落特征和氮转化过程对深入挖掘湖泊生态系统氮转化微生物菌种和评估区域N2O气体的排放具有重要的现实意义[14].
不同生境中影响微生物氮转化过程的因素不同[15,16]. 前人研究结果发现水体温度、pH值和总溶解固体是驱动其氮转化过程的重要因素[6]. 孙小溪等[17]研究青藏高原内陆湖泊沉积物氮移除过程及其影响因素的结果表明,盐度是湖泊沉积物中氮移除过程的决定因子. 2025年,Li等[11]研究农业饮用水库区氮循环过程及功能基因丰度的结果同样揭示了总氮和溶解有机碳是氮转化过程的功能基因丰度的显著驱动因素. 氧气、含水率、有机质、氨氮、水体深度、微塑料和人类活动也是影响各类生态系统水体介质中氮转化过程的关键因子[18~21]. 综合对比以往关于湖泊氮转化微生物群落特征的研究,发现对青藏高原内陆湖泊水体氮转化微生物群落特征的研究仍然非常有限,对氮转化微生物群落的构建过程更是知之甚少.
与低海拔湖泊相比较,青藏高原湖区的内陆湖由于特殊的地理位置,对外连通率低,自净能力差,往往具有更独特且复杂的生态结构和功能菌群[22]. 近年来,在气候变化和人类活动的影响下,青藏高原内陆湖泊出现了扩张和富营养化加剧等趋势,导致湖泊生态系统保育功能降低,从而产生了一系列环境问题[23,24]. 因此基于宏基因组测序技术,对湖泊水体中氮转化过程功能微生物进行更加深入的研究,对青藏高原内陆湖泊水资源保护与利用具有重要意义[25]. 基于此,本研究选取青藏高原东北部的典型湖泊(内陆湖)为研究对象,采集湖泊水体进行理化因素分析并基于宏基因组测序技术对湖泊水体中氮转化微生物进行非冗余基因组的构建和物种的注释,识别青藏高原内陆湖泊水体氮转化功能微生物和功能基因,进一步分析环境因子对氮转化功能微生物和功能基因的驱动作用及其群落构建过程,以期为深入理解青藏高原内陆湖泊氮循环过程和功能基因的挖掘提供本底数据和理论基础.
1 材料与方法 1.1 样品的采集和预处理2023年12月(冬季)和2024年6月(夏季)分别采集青藏高原东北部的托素湖(TSL,3个样点)、可鲁克湖(KLKL,3个样点)、尕海(GHL,夏季2个样点,冬季3个样点)和小柴旦湖(XCDL,夏季3个样点,冬季4个样点). 为了更全面的研究湖泊氮转化功能微生物的菌群特点,按照湖泊集水面积的大小对每个湖泊设置取样点,按照样点设置的原则,主要分布在出入湖口和湖边. 具体样点分布见图 1. 每个样点使用便携式取水仪在距离水面以下(约0.5 m)的位置处取水样约5 L放置在窄口无菌瓶中进行黑暗冷藏保存. 在24 h内使用孔隙直径为0.22 μm的滤膜进行抽真空过滤,得到富集微生物的滤膜后放置在50 mL的离心管中-20℃下进行黑暗冷冻保存. 送至实验室进行后续分析. 剩余水样,进行水体营养盐浓度测定.

|
图 1 不同季节采样点分布示意 Fig. 1 Distributions of the sampling sites in different seasons |
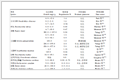
在采样的同时,使用便携式水质仪(EXO SY1 USA)原位检测水体温度(Temp)、溶解氧(DO)、pH值、盐度(SAL)和总溶解固体(TDS)的浓度. 另外实验室检测水体样本的总氮(TN)采用(HJ 636-2012),氨氮(NH4+-N)采用(HJ 666-2013),硝态氮(NO3--N)采用(HJ/T 346-2007),每个样点水体理化参数检测3次,求取平均值后作为该样点的最终数据结果,具体检测结果见表 1[26]. 地理位置信息采用便携式GPS仪,测定采样点的经度(Lon)、纬度(Lat)和海拔(Alt)信息[27].
|
表 1 不同样点在不同季节地理位置和环境因子信息1) Table 1 Information of environmental factors and geographical features of the different sampling sites in the different seasons |
1.3 总DNA的提取和宏基因组测序分析
采用DNA提取试剂盒(FastDNA® Spin Kit for Soil)提取滤膜中微生物的总DNA,提取流程参考试剂盒的操作说明. 使用2%的琼脂糖凝胶电泳对提取的DNA进行质检,合格后将样品送至上海美吉生物医药科技有限公司进行宏基因组测序分析.
宏基因组测序和分析按照如下步骤进行:①通过Coveris M220将DNA片段化后筛选出约400 bp的片段;②构建Paired-End(PE)文库;③Illumina NovaSeq平台测序;④原始下机数据使用Fastp(v.0.20.0)进行质控(去除长度小于50 bp,平均碱基质量值低于20和含N碱基的序列)获得有效序列;⑤使用Megahit软件(v.1.1.2)对有效序列进行拼装,获得Contigs序列,去除掉长度小于1 000 bp的contigs后使用MetaGene进行基因预测;⑥用CD-HIT(4.6.1)对所有样品预测的基因进行序列聚类,每个聚类选取最长的基因作为代表序列,构建非冗余基因集;⑦使用SOA Paligner软件(v.2.21)将每个样品的高质量序列与非冗余基因集进行比对,统计基因在对应样品中的丰度信息,丰度计算采用的方法为Reads Per Kilobase Million(RPKM);⑧在结果中筛选氮转化基因(ko00910)构建基因集后使用Diamond(v.0.8.35)将非冗余基因集与Non-Redundant Protein Sequence Database(NR)和Kyoto Encyclopedia of Genes and Genomes(KEGG)数据库进行对比(BLASTP比对参数设置期望值e-value为1e-5),获得氮转化物种和功能注释,然后使用物种对应的基因丰度总和计算该物种的丰度[28,29].
1.4 统计分析基于Spearman相关性分析揭示环境因子对氮转化过程功能基因丰度的影响. 使用“vegan”软件包进行冗余分析(RDA)解析环境因子对氮转化微生物群落结构的影响. 使用归一化随机率(NST)对不同季节微生物群落构建过程进行分析,当NST值小于50%时,认为确定性过程主导微生物群落的构建过程,当NST大于50%时,认为微生物群落的构建过程由随机性过程主导[30],以上分析均在R(v.4.4.0)中进行.
2 结果与分析 2.1 高原内陆湖泊氮转化微生物群落特征与构建过程参与青藏高原内陆湖泊水体氮转化过程的微生物类群主要有细菌、古菌、真核生物和病毒,夏季的占比分别为95.57%、1.06%、3.03%和0.33%,冬季的占比分别为72.11%、13.11%、12.62%和1.46%. 可以看出,细菌是青藏高原内陆湖泊水体氮转化过程的主要类群. 对构建的氮转化过程非冗余基因集进行门和属水平上的物种注释,结果如图 2和图 3所示. 在门分类水平上,不同季节参与湖泊水体氮转化过程的微生物主要有假单胞菌门(Pseudomonadota)、拟杆菌门(Bacteroidota)、放线菌门(Actinomycetota)、光合菌门(Cyanobacteria)和芽孢杆菌门(Bacillota). 整体上看,夏季不同样点参与氮转化过程的优势门为Pseudomonadota,不同样点平均相对丰度占比为39.35%,其他门还包括Bacteroidota、Actinomycetota和Cyanobacteriota,占比分别为15.73%、16.61%和5.87%. 冬季不同样点参与氮转化过程的优势门为Pseudomonadota和Actinomycetota,不同样点平均相对丰度占比分别为35.09%和34.74%.

|
图 2 在门分类水平上不同样点在夏季和冬季氮转化微生物群落组成 Fig. 2 Compositions of nitrogen transformation microbes at the phylum level of the different sampling sites in summer and winter |

|
图 3 在属分类水平上不同样点在夏季和冬季氮转化微生物群落组成 Fig. 3 Compositions of nitrogen transformation microbes at the genus level of the different sampling sites in summer and winter |
在属分类水平上,夏季氮转化微生物主要有Candidatus_Planktophila、Aquiluna、Pontimonas、Microcystis和Roseovarius等,其中优势属为Candidatus_Planktophila,不同采样点的平均占比为4.04%. 冬季氮转化微生物主要有unclassified_c__Actinomycetes、Mycobacterium、Psychrobacter、Yoonia和Pontimonas等,优势属为unclassified_c__Actinomycetes,不同采样点的平均占比为7.91%.
RDA分析可以用来判断不同环境因子对湖泊生态系统氮转化微生物群落的影响. 在剔除VIF大于10的环境因子后,RDA分析结果揭示了夏季和冬季环境因子对湖泊生态系统氮转化微生物群落结构的影响分别为69.06%和72.65%(RDA1与RDA2之和). 在夏季,环境因子对氮转化微生物群落结构的影响大小顺序为:SAL > pH > NH4+-N > NO3--N > Temp > DO > Lat,冬季环境因子对氮转化微生物群落结构的影响大小为:DO > TN > NH4+-N > Lat > pH > NO3--N,DO和TN是显著(Envfit:P < 0.05)驱动冬季湖泊水体氮转化微生物群落结构的环境因子(图 4).

|
图 4 夏季和冬季氮转化微生物与环境因子的冗余分析 Fig. 4 Redundancy analysis of nitrogen transformation microbes and environmental factors in summer and winter |
量化随机性过程和确定性过程是深入理解微生物多样性格局形成的关键,微生物群落构建机制的解析揭示其在确定性的环境选择和随机性的漂变与扩散情况. 本研究基于NST指数对不同季节氮转化微生物群落构建机制进行解析,不同采样湖泊在不同季节氮转化微生物群落构建过程存在极显著的差异(图 5). 其中GHL和XCDL氮转化微生物在不同季节受确定性过程主导,而TSL氮转化微生物在不同季节主要受随机性过程驱动. 对KLKL而言,在夏季氮转化微生物受确定性过程主导,但在冬季氮转化微生物菌群的形成由随机性过程构建.

|
图 5 夏季和冬季氮转化微生物群落构建过程 Fig. 5 Assembly processes of nitrogen transformation microbes in summer and winter |
对不同采样湖泊的氮转化物种及其贡献进行分析,结果如图 6所示. 从中可知,青藏高原内陆湖泊生态系统微生物参与氮转化过程有反硝化过程(M00529)、异化硝酸盐还原过程(M00531)、同化硝酸盐还原过程(M00530)、硝酸盐同化过程(M00615)、甲基天冬氨酸循环(M00740)、厌氧氨氧化(M00973)、完全硝化过程(M00804)、氮固定(M00175)、甲烷氧化过程(M00174)和硝化作用(M00528). 青藏高原内陆湖泊水体的Pseudomonadota主要参与反硝化过程、同化硝酸盐还原过程与硝酸盐同化过程. Actinomycetota和Bacteroidota主要参与甲基天冬氨酸循环、异化硝酸盐还原过程和氮固定过程. Thermodesulfobacteriota主要参与完全硝化过程和同化硝酸盐还原过程. Chloroflexota主要参与反硝化过程和厌氧氨氧化过程.

|
夏季:1.GHL,2.TSL,3.KLKL,4.XCDL;冬季:5.KLKL,6.GHL,7.XCDL,8.TSL 图 6 夏季和冬季氮转化物种和功能基因贡献分析 Fig. 6 Analysis of the contributions of nitrogen transformation species and functional genes in summer and winter |
氮转化是生态系统中重要的生物地球化学循环,不同季节青藏高原内陆湖泊水体氮转化的主要过程有同化硝酸盐还原过程-TH(M00531)、异化硝酸盐还原过程-YH(M00530)、固氮过程-GD(M00175)、硝化过程-XH(M00528)、反硝化过程-FXH(M00529)和厌氧氨氧化过程-YYAYH(M00973)这6个氮转化途径. 夏季青藏高原内陆湖泊微生物参与的氮转化功能基因丰度表现为:反硝化 > 同化硝酸盐还原 > 异化硝酸盐还原 > 厌氧氨氧化 > 固氮 > 硝化,冬季湖泊微生物参与氮转化功能基因丰度大小为:反硝化 > 异化硝酸盐还原 > 同化硝酸盐还原 > 厌氧氨氧化 > 固氮 > 硝化,其中不同季节微生物反硝化过程基因丰度远大于硝化基因丰度,这表明青藏高原内陆湖泊水体中微生物广泛参与了反硝化过程(图 7). 表 2是氮转化6个过程独有的功能基因丰度统计,不同功能基因丰度的变化具有明显的时间差异性,整体上看,青藏高原内陆湖泊冬季微生物氮转化功能基因丰度明显大于夏季. 分析环境因子对氮转化不同过程功能基因丰度的影响,夏季氮转化过程功能基因丰度主要与Alt、Temp、TDS和SAL显著相关,其中随着Alt、TDS和SAL的增加,氮转化过程功能基因丰度显著增加,而随着Temp的增加,氮转化过程功能基因丰度显著减少. 冬季氮转化过程功能基因丰度与Temp、DO和NH4+-N显著正相关,与Alt、TDS和SAL显著负相关(P < 0.05,图 8).

|
图 7 夏季和冬季氮转化微生物功能基因丰度 Fig. 7 Functional genes abundance of nitrogen transformation microbes in summer and winter |
|
|
表 2 不同季节不同湖泊氮转化过程功能基因总丰度统计1) Table 2 Statistics for the total abundance of functional genes of the nitrogen transformation of the different sampling lakes in different seasons |

|
*、**和***分别表示P < 0.05、P < 0.01和P < 0.001;图中圆形的大小表示Spearman相关系数的大小,圆形越大表示Spearman相关系数越大,圆形越小表示Spearman相关系数越小 on the Spearman's correlation coefficient in summer and winter 图 8 基于Spearman相关系数对夏季和冬季环境因子与氮转化功能基因的关系 Fig. 8 Relationship between environmental factors and functional genes of nitrogen transformation based |
研究湖泊氮转化微生物群落结构特征及其构建机制是深入理解湖泊生态系统物质转化和能量流动的关键,对区域水资源规划管理和利用具有重要的现实意义[31]. 本研究结果发现反硝化基因丰度是湖泊水体中氮转化过程基因丰度最高者,表明在青藏高原内陆湖泊中反硝化作用是湖泊生态系统中最广泛的氮转化过程,且冬季的反硝化过程更明显. 反硝化过程是湖泊中反硝化菌将NO3-转化为N2的过程,是水体中典型的氮移除过程,这对湖泊生态系统中硝酸盐氮污染物的去除具有积极的作用[6,32],对比夏季和冬季高原内陆湖泊反硝化过程功能基因丰度,发现冬季的反硝化过程功能基因丰度明显高于夏季(图 7和表 2),这表明高原内陆湖泊水体中反硝化过程的发生在冬季更为广泛. 这是由于冬季低水温的条件下(平均水温为-0.4℃)限制了其他微生物的代谢活性,微生物间对各类营养物质的竞争进一步降低,使反硝化过程增强[33]. 另外,反硝化的亚硝酸盐还原酶基因(nirK)丰度在夏季和冬季反硝化过程中最高,这表明对高原内陆湖泊反硝化过程而言,亚硝酸盐还原酶(nir)活性主要反映在nirK基因丰度的变化上. 研究发现nirK型反硝化菌比其他类型反硝化菌[如nirS和氧化亚氮还原酶基因(nosZ)]倾向于更多样的厌氧条件的变化[34],而青藏高原内陆湖泊水体溶解氧浓度在不同季节和不同采样湖泊之间表现出剧烈的变化(表 1)也证实了这一点. 然而本结果与之前研究华南沿海潟湖反硝化功能微生物的功能基因丰度的研究结果不一致[35],这可能是由于高原内陆湖泊中nirS比nirK型反硝化菌对相同环境变化的响应程度更敏感所致[10]. 进一步分析环境因子对氮转化过程功能基因丰度的影响,发现反硝化过程功能基因丰度的影响因素有水温、海拔、TDS、SAL和NO3-等,NO3-浓度增加使夏季和冬季反硝化基因丰度也显著增加,主要是NO3-作为反硝化过程的底物电子受体,可直接促进反硝化过程发生. 对比分析不同季节反硝化过程功能基因的影响因素,发现水温与夏季反硝化功能基因丰度显著负相关,在冬季却显著正相关(图 3),这指示了青藏高原内陆湖泊的水温对反硝化功能基因丰度影响的复杂性,相关研究也表明了水温对功能微生物功能基因的影响是通过影响微生物代谢过程中的酶活性来完成[36]. 另外,由图 3可知,DO与水温存在显著的正相关关系,这与揭示水温和DO关系的亨利定律不符合,一方面是湖泊在冬季表层水体凝结成冰,冰层阻断了大气氧和水体氧的交换,另一方面是光合作用同时驱动水温和DO的同步变化,进而共同驱动了氮转化微生物功能基因丰度的变化[37,38]. 然而,由于宏基因组测序技术只能反映微生物菌群的氮转化潜在功能,未来对高原内陆湖泊氮转化微生物功能的解析需结合δ15N同位素示踪和nirK/nirS等基因在转录组水平上进行解析,以期揭示反硝化速率是否在低温条件下同步上升.
本研究结果表明Pseudomonadota是青藏高原内陆湖泊水体氮转化微生物的优势菌,主要是由于Pseudomonadota能够通过多种途径参与生境的氮转化过程,如反硝化过程、同化硝酸盐还原过程、硝酸盐同化过程和完全硝化过程(图 7),这与之前研究寒区潜水湖泊氮转化过程的优势菌和岷江上游河流氮分布及微生物特征的结果一致[6,39]. SAL和DO分别是夏季和冬季氮转化微生物群落结构的最显著驱动因素,这与之前研究青藏高原湖泊微生物群落结构驱动因素的结果相似[40,41]. SAL对氮转化微生物群落的影响主要是通过生理胁迫完成,尤其是参与硝化过程的微生物菌群,在高盐环境胁迫下,微生物细胞内外的渗透压失衡,引起细胞活性降低甚至死亡,进而影响氮转化微生物的群落结构[42]. DO是评估微生物生境中含氧量的指标之一,能够直接影响包括硝化过程、反硝化过程和厌氧氨氧化过程等氮转化过程. 反硝化过程和厌氧氨氧化过程均是兼性厌氧或厌氧环境下发生的序列反应,因而直接影响氮转化微生物的群落结构.
研究氮转化微生物群落构建过程是深入理解氮转化功能微生物群落结构形成的关键[24,43]. 研究发现确定性过程在塑造高原内陆湖泊氮转化微生物群落结构方面起着重要的作用,这指示了环境因子的挑选作用是氮转化微生物群落结构形成的关键. 同时RDA结果显示环境因子对不同季节氮转化微生物群落结构的影响比例超过69%(图 4),说明高原内陆湖泊氮转化微生物能敏感地响应环境因子的变化. 这也在一定程度上解释了环境挑选(确定性过程)在氮转化微生物中的主导作用. 综合来看,水体理化因子对维持和调节氮转化功能微生物群落结构和功能基因丰度等方面发挥着至关重要的作用,它们通过影响多种氮转化途径,来驱动生境中氮转化过程和氮赋存. 值得注意的是,在不同季节,GHL和XCDL两个湖泊氮转化微生物群落构建过程均由确定性过程主导,但GHL的NST值均小于XCDL(图 5),这表明随机性过程对XCDL的氮转化微生物群落塑造过程的影响比GHL高,虽然GHL和XCDL均为咸水湖(平均盐度 > 1 g·L-1),但研究发现高盐生境对氮转化微生物群落塑造过程产生选择性的压力,并且盐度越高,这种选择的压力越大,对氮转化微生物的同质性选择性就越强,从而使外源微生物种类很难在这类生境中定殖[44,45].
4 结论(1)细菌是青藏高原内陆湖泊氮转化微生物的主要类群,其中假单胞菌门(Pseudomonadota)是细菌的优势门,不同季节的平均占比为37.22%.
(2)青藏高原内陆湖水体中存在6种氮转化过程,其中反硝化过程是最为广泛的氮转化过程.
(3)海拔、水温、总溶解固体和盐度是不同季节青藏高原内陆湖氮转化过程功能基因丰度的显著影响因子. 盐度和溶解氧是夏季和冬季氮转化微生物群落结构最显著的驱动因素.
| [1] |
刘倩, 陈晓, 李彦澄, 等. 湖泊沉积物的氮代谢微生物、功能基因及代谢途径分析: 以贵州省红枫湖为例[J]. 环境科学, 2024, 45(10): 6086-6095. Liu Q, Chen X, Li Y C, et al. Functional genes and metabolic pathways of nitrogen metabolism microorganisms in lake sediments: a case study of Hongfeng Lake, Guizhou Province[J]. Environmental Science, 2024, 45(10): 6086-6095. DOI:10.13227/j.hjkx.202310134 |
| [2] |
韩磊, 胡盎, 任明磊, 等. 湖泊微生物群落及其介导的碳循环过程[J]. 生命科学, 2023, 35(12): 1613-1629. Han L, Hu A, Ren M L, et al. Lake microbial communities and their mediated carbon cycling processes[J]. Chinese Bulletin of Life Sciences, 2023, 35(12): 1613-1629. |
| [3] |
杨文焕, 甄玉, 姚植, 等. 高原盐化湖泊沉积物氮代谢特征解析[J]. 中国环境科学, 2023, 43(3): 1328-1339. Yang W H, Zhen Y, Yao Z, et al. Characterization for nitrogen metabolism of sediments in highland saline lake[J]. China Environmental Science, 2023, 43(3): 1328-1339. |
| [4] |
汪韦, 郑梦启, 陈国炜, 等. 氮杂环污染物对微藻氮代谢的双重效应研究进展[J]. 中国环境科学, 2025, 45(10): 5732-5741. Wang W, Zheng M Q, Chen G W, et al. Research progress on the dual effects of nitrogen-containing heterocyclic compounds on nitrogen metabolism in microalgae[J]. China Environmental Science, 2025, 45(10): 5732-5741. |
| [5] |
代海涛. 南极苔原氮转化关键过程及其微生物驱动机制[D]. 合肥: 中国科学技术大学, 2021. Dai H T. Key processes of nitrogen transformation and their microbial driving mechanisms in Antarctic tundra[D]. Hefei: University of Science and Technology of China, 2021. |
| [6] |
田志强. 寒区浅水湖泊氮转化过程及低温生物脱氮研究[D]. 呼和浩特: 内蒙古农业大学, 2024. Tian Z Q. Nitrogen transformation processes and low-temperature biological denitrification of a shallow lake in cold areas[D]. Hohhot: Inner Mongolia Agricultural University, 2024. |
| [7] |
张梦柯, 付文静, 卢学强. 滨海湿地生态系统中古菌驱动的氮循环[J]. 微生物学报, 2025, 65(6): 2382-2400. Zhang M K, Fu W J, Lu X Q. Archaea-driven nitrogen cycling in coastal wetland ecosystems[J]. Acta Microbiologica Sinica, 2025, 65(6): 2382-2400. |
| [8] | Liu S F, Wang H Y, Chen L M, et al. Comammox Nitrospira within the Yangtze River continuum: community, biogeography, and ecological drivers[J]. The ISME Journal, 2020, 14(10): 2488-2504. DOI:10.1038/s41396-020-0701-8 |
| [9] |
张润雨, 刘博毅, 朱琳, 等. 平原城区入湖河流氧化亚氮排放时空特征[J]. 湖泊科学, 2025, 37(5): 1661-1670. Zhang R Y, Liu B Y, Zhu L, et al. Spatiotemporal characteristics of nitrous oxide emissions from urban rivers flowing into lakes on plains[J]. Journal of Lake Sciences, 2025, 37(5): 1661-1670. |
| [10] |
赵永鹏. 不同土地利用方式土壤中氮循环微生物群落特征及其影响因子研究[D]. 重庆: 西南大学, 2024. Zhao Y P. Study of nitrogen-cycling microbial community characteristics and their influencing factors in soils under different land use types[D]. Chongqing: Southwest University, 2024. |
| [11] | Li M Z, Wang W W, Yuan S W, et al. Nitrogen cycling and functional gene diversity of drinking reservoir area in agricultural districts: implications for nitrogen transformation processes[J]. Ecological Indicators, 2025, 173. DOI:10.1016/J.ECOLIND.2025.113349 |
| [12] |
张元. 寒旱区湖泊沉积物氮循环微生物菌群结构及其与环境响应研究[D]. 包头: 内蒙古科技大学, 2020. Zhang Y. Response of nitrogen cycle microorganism diversity to environmental changes in in Cold-arid[D]. Baotou: Inner Mongolia University of Science & Technology, 2020. |
| [13] |
刘鑫, 左锐, 王金生, 等. 地下水位波动带三氮迁移转化过程研究进展[J]. 水文地质工程地质, 2021, 48(2): 27-36. Liu X, Zuo R, Wang J S, et al. Advances in researches on ammonia, nitrite and nitrate on migration and transformation in the groundwater level fluctuation zone[J]. Hydrogeology & Engineering Geology, 2021, 48(2): 27-36. |
| [14] |
刘德鸿. 太湖多界面N2O产排特征及其影响因素研究[D]. 南京: 南京师范大学, 2019. Liu D H. Nitrous oxide production and emission on multiple interfaces and related influence factors in Taihu Lake[D]. Nanjing: Nanjing Normal University, 2019. |
| [15] |
谭秋阳, 吕金燕, 白献宇, 等. 典型城市内河菌群组成与氮循环功能垂向分布及溯源分析[J]. 环境科学, 2023, 44(3): 1497-1507. Tan Q Y, Lü J Y, Bai X Y, et al. Vertical distribution and source tracking analysis of bacteria composition and nitrogen metabolism function of a typical urban inland river[J]. Environmental Science, 2023, 44(3): 1497-1507. DOI:10.13227/j.hjkx.202204276 |
| [16] |
林雨彬, 秦永强, 马思远, 等. 红树林沉积物反硝化和厌氧氨氧化速率的时空变化及环境响应[J]. 热带生物学报, 2023, 14(1): 129-135. Lin Y B, Qin Y Q, Ma S Y, et al. Temporal and spatial variation and environmental response of denitrification and anaerobic ammonium oxidation rates in mangrove sediments[J]. Journal of Tropical Biology, 2023, 14(1): 129-135. |
| [17] |
孙小溪. 青藏高原湖泊微生物介导的氮移除过程及其环境效应[D]. 武汉: 中国地质大学, 2022. Sun X X. Microbially mediated nitrogen removal process and its environmental effect in the Qing-Tibetan Lakes[D]. Wuhan: China University of Geosciences, 2022. |
| [18] |
陈宏, 王泓, 吴敏, 等. 淡水湿地生态系统中微生物驱动氮转化过程研究进展[J]. 水利学报, 2020, 51(2): 158-168. Chen H, Wang H, Wu M, et al. Recent advances in microbe-driven nitrogen transformation in freshwater wetland ecosystems[J]. Journal of Hydraulic Engineering, 2020, 51(2): 158-168. |
| [19] | 宋雯. 典型海洋生境微生物群落驱动氮循环生态学机制研究[D]. 济南: 山东大学, 2024. |
| [20] |
林佳瑾, 曹惠雯, 曾岩, 等. 微塑料与水体碳氮转化的相互作用机制[J]. 环境科学, 2026, 47(6): 4130-4141. Lin J J, Cao H W, Zeng Y, et al. Mechanisms of interaction between microplastics and carbon and nitrogen transformations in aquatic environments[J]. Environmental Science, 2026, 47(6): 4130-4141. DOI:10.13227/j.hjkx.202504037 |
| [21] | Chen L M, Liu S T, Chen Q, et al. Anammox response to natural and anthropogenic impacts over the Yangtze River[J]. Science of the Total Environment, 2019, 665: 171-180. DOI:10.1016/j.scitotenv.2019.02.096 |
| [22] |
杨渐. 青藏高原湖泊微生物群落演替及其环境指示意义[D]. 武汉: 中国地质大学, 2015. Yang J. Microbial response to environmental changes in Qinghai-Tibetan Lakes and its environmental implications[D]. Wuhan: China University of Geosciences, 2015. |
| [23] |
杜丁丁. 中国西部地区湖泊碳库效应的影响因素及评价[D]. 兰州: 兰州大学, 2018. Du D D. The influence factors and evalution of 14C reservoir effects of lakes in the Western China[D]. Lanzhou: Lanzhou University, 2018. |
| [24] |
闫琦. 青藏高原湖泊微生物群落特征与构建机制[D]. 兰州: 兰州大学, 2023. Yan Q. Distribution patterns and assembly mechanisms of microbial communities in Tibetan Lakes[D]. Lanzhou: Lanzhou University, 2023. |
| [25] |
罗建桦, 陶晔, 邢鹏, 等. 湖泊微生物宏基因组学研究进展[J]. 湖泊科学, 2020, 32(1): 271-280. Luo J H, Tao Y, Xing P, et al. Mini-review: advances of metagenomics research for lake microbiomes[J]. Journal of Lake Sciences, 2020, 32(1): 271-280. |
| [26] |
艾佳, 吕杨, 钟雄, 等. 贵州草海喀斯特高原湖泊湿地甲烷氧化菌群落特征及功能探析[J]. 湖泊科学, 2022, 34(3): 906-918. Ai J, Lv Y, Zhong X, et al. The community characteristics and functions of methanotrophs in karst Lake Caohai, Guizhou Plateau[J]. Journal of Lake Sciences, 2022, 34(3): 906-918. |
| [27] |
贾海超, 王丹丹, 黄跃飞, 等. 柴达木盆地河流与湖泊水体微生物群落结构及共现网络模式差异[J]. 微生物学报, 2024, 64(12): 4918-4935. Jia H C, Wang D D, Huang Y F, et al. Differences of microbial community structures and co-occurrence networks in rivers and lakes in the Qaidam Basin[J]. Acta Microbiologica Sinica, 2024, 64(12): 4918-4935. |
| [28] | Kang L Y, Song Y T, Mackelprang R, et al. Metagenomic insights into microbial community structure and metabolism in alpine permafrost on the Tibetan Plateau[J]. Nature Communications, 2024, 15(1). DOI:10.1038/s41467-024-50276-2 |
| [29] | Chen C, Ai J, Chen L, et al. Nitrogen metabolism pathways and functional microorganisms in typical karst wetlands[J]. Environmental Science and Pollution Research, 2024, 31(15): 22494-22506. DOI:10.1007/s11356-024-32587-5 |
| [30] |
李怡, 张含笑, 张靖天, 等. 湖泊微生物群落构建机制及研究展望[J]. 中国环境监测, 2023, 39(6): 1-11. Li Y, Zhang H X, Zhang J T, et al. Advances in assembly mechanisms of microbial community in lakes[J]. Environmental Monitoring in China, 2023, 39(6): 1-11. |
| [31] |
姚莉. 湖泊氮循环研究进展[J]. 广东化工, 2020, 47(10): 112-113, 100. Yao L. Research progress of nitrogen cycle in lakes[J]. Guangdong Chemical Industry, 2020, 47(10): 112-113, 100. |
| [32] | Larose C, Dommergue A, Vogel T M. Microbial nitrogen cycling in Arctic snowpacks[J]. Environmental Research Letters, 2013, 8(3). DOI:10.1088/1748-9326/8/3/035004 |
| [33] |
孙嘉鸿. 冻融循环作用对泥炭沼泽土壤碳排放的影响及其微生物机制[D]. 长春: 东北师范大学, 2022 Sun J H. Effects of freeze-thaw on carbon emissions from peatlands and their microbial mechanisms[D]. Changchun: Northeast Normal University, 2022. |
| [34] | Xiao X, Xie G X, Yang Z H, et al. Variation in abundance, diversity, and composition of nirK and nirS containing denitrifying bacterial communities in a red paddy soil as affected by combined organic-chemical fertilization[J]. Applied Soil Ecology, 2021, 166. DOI:10.1016/J.APSOIL.2021.104001 |
| [35] |
容清, 冼汉标, 董旭辉, 等. 华南沿海潟湖反硝化微生物活性与群落特征分析[J]. 热带海洋学报, 2025, 44(6): 108-119. Rong Q, XianH B, DongX H, et al. Denitrifying microbial activity and community characteristics in coastal lagoons of South China[J]. Journal of Tropical Oceanography, 2025, 44(6): 108-119. |
| [36] | Wan Y, Ruan X H, Wang J, et al. Spatial and seasonal variations in the abundance of nitrogen-transforming genes and the microbial community structure in freshwater lakes with different trophic statuses[J]. International Journal of Environmental Research and Public Health, 2019, 16(13). DOI:10.3390/ijerph16132298 |
| [37] |
李明亮, 张明宇, 姚植, 等. 寒区典型湖泊冰封期溶解氧变化趋势及影响因素[J]. 湖泊科学, 2024, 36(6): 1806-1819. Li M L, Zhang M Y, Yao Z, et al. The trend of dissolved oxygen change and influencing factors of typical lakes in cold area during icecoverd period[J]. Journal of Lake Sciences, 2024, 36(6): 1806-1819. |
| [38] |
李新民, 罗学科, 李文, 等. 基于亨利定律的水中臭氧浓度检测方法研究[J]. 中国环境监测, 2021, 37(4): 150-155. Li X M, Luo X K, Li W, et al. Research on detection method of ozone concentration in water based on Henry's Law[J]. Environmental Monitoring in China, 2021, 37(4): 150-155. |
| [39] |
杨早, 李娜英, 仲波, 等. 岷江上游河流氮分布及潜在沉积物微生物驱动过程[J]. 湖泊科学, 2025, 37(4): 1314-1326. Yang Z, Li N Y, Zhong B, et al. Nitrogen distribution and potential microbial driving processes in the upper reaches of Minjiang River[J]. Journal of Lake Sciences, 2025, 37(4): 1314-1326. |
| [40] |
王丹丹, 黄跃飞, 杨海娇. 青藏高原东北部湖泊细菌群落结构特征季节性差异及驱动机制[J]. 湖泊科学, 2023, 35(1): 267-278. Wang D D, Huang Y F, Yang H J. Seasonal differences of lake bacterial community structures and their driving mechanisms in the northeastern of the Qinghai-Tibet Plateau[J]. Journal of Lake Sciences, 2023, 35(1): 267-278. |
| [41] | Yang J, Ma L A, Jiang H C, et al. Salinity shapes microbial diversity and community structure in surface sediments of the Qinghai-Tibetan Lakes[J]. Scientific Reports, 2016, 6(1). DOI:10.1038/srep25078 |
| [42] | Mo Y Y, Peng F, Gao X F, et al. Low shifts in salinity determined assembly processes and network stability of microeukaryotic plankton communities in a subtropical urban reservoir[J]. Microbiome, 2021, 9(1). DOI:10.1186/s40168-021-01079-w |
| [43] |
王丹丹, 黄跃飞, 杨海娇. 青藏高原湖泊沉积物与水体细菌群落共发生网络和群落构建过程差异解析[J]. 湖泊科学, 2023, 35(3): 959-971. Wang D D, Huang Y F, Yang H J. Differences of bacterial community co-occurrence network and assembly processes between sediment and water in lakes on the Qinghai-Tibet Plateau[J]. Journal of Lake Sciences, 2023, 35(3): 959-971. |
| [44] |
王丹丹, 谢燕琴, 黄跃飞, 等. 青藏高原东部不同盐度湖泊藻类群落特征及其驱动因素[J]. 中国环境科学, 2025, 45(11): 6320-6330. Wang D D, Xie Y Q, Huang Y F, et al. Characteristics and driving factors of algal communities in lakes with different salinities in the eastern Qinghai Tibet Plateau[J]. China Environmental Science, 2025, 45(11): 6320-6330. |
| [45] |
陈瑞蕊, 张建伟, 董洋, 等. 盐度对滨海土壤细菌多样性和群落构建过程的影响[J]. 应用生态学报, 2021, 32(5): 1816-1824. Chen R R, Zhang J W, Dong Y, et al. Effects of salinity on soil bacterial diversity and assembly processes in coastal soils[J]. Chinese Journal of Applied Ecology, 2021, 32(5): 1816-1824. |