 2026, Vol. 47


2. 寒旱地区水资源综合利用教育部工程研究中心,兰州 730070;
3. 兰州大学资源环境学院,兰州 730000
2. Ministry of Education Engineering Research Center of Water Resource Comprehensive Utilization in Cold and Arid Regions, Lanzhou 730070, China;
3. College of Earth and Environmental Sciences, Lanzhou University, Lanzhou 730000, China
以全球变暖和大气氮沉降增加为主要特征的气候变化已成为全球变化研究中的重要议题[1]. IPCC第六次评估报告指出,过去10 a中全球气温相比1850~1900年,平均增加了约1.1℃,并且预计2041~2060年增幅将达到1.5℃[2]. 同时,由于工业和农业生产活动加剧,我国已经成为氮沉降量最高的国家之一,20世纪80年代到21世纪初我国年均N沉降速率(以N计)增长了60%,从13.2 kg·a-1增加到21.1 kg·a-1[3]. 青藏高原因其位于高纬度和高海拔地区的特性,对气候变化的响应更加敏感和迅速[4].
土壤有机碳的形成主要依赖于植物、微生物碳的周转和保存[5,6],植物残体、根系分泌物和微生物残体通过微生物的体外或体内分解而发生转化并得以稳定[7]. 以往研究认为,植物源碳在微生物的代谢下发生复杂的分解反应后转化为稳定的土壤有机碳,是土壤有机质形成的主要来源[8]. 然而,随着研究手段的进步和分析技术的发展,土壤有机碳形成理论逐渐发展为“微生物碳泵”理论[5,7,9,10],该理论进一步聚焦了微生物同化作用介导的细胞残体积累对土壤有机碳的重要性,强调了微生物通过同化作用将不稳定的有机质转化为自身组分,其死亡后形成的细胞残体是稳定土壤有机碳库的关键贡献者[11,12]. 土壤“微生物碳泵”功能的发挥受到大气CO2升高、氮沉降、气温升高和降水格局改变等诸多气候因素的影响,进而改变微生物残体碳在土壤中的积累特征[13,14]. 以往研究发现,增温通过提高土壤温度及降低土壤含水量,从而直接或间接影响微生物群落组成、活性,进而改变土壤微生物残体碳的积累[15,16];Frey等[17]发现增温会导致土壤微生物生物量降低,从而减少微生物残体碳的积累,其效应也因研究区域和时间尺度而异[18,19]. 然而,增温对细菌与真菌残体的影响也呈现明显差异[20],如Ding等[21]在青藏高原高寒草甸的研究中发现,相较于细菌,温度升高增加了真菌对有机碳库的贡献,可能的原因与增温通过不同途径影响微生物群落有关:一方面,由于真菌残体的细胞壁主要由几丁质和黑色素组成,相较于以肽聚糖为主的细菌残体,其在土壤中更难以分解[22];另一方面,增温使植物地上生物量和地下根系生物量增加[14,22,23],植物碳输入的增加刺激了微生物的生长和死亡循环速率,从而间接导致微生物残体碳增加[24]. 同时,作为植物和微生物生长的限制性养分,氮素的输入通过改变微生物胞外酶活性、土壤矿物含量等方式直接影响土壤中微生物残体碳的形成[25,26],如崔艳荷等[27]采用室内模拟培养法研究氮添加条件下森林土壤氨基糖含量的动态变化,发现施氮使得土壤微生物残体碳的组成发生了改变,并且这种变化是由土壤中养分的状况和外加氮源的数量决定的;Meng等[28]则发现施氮通过促进特定类群微生物生长(actinobacteria,gram-negative bacteria,ascomycota and basidiomycota)和土壤酶活性,改变了植物残体向微生物残体碳的转化速率. 以往的工作普遍认为,氮沉降抑制了微生物残体碳积累,其核心机制为氮有效性改变引发的微生物代谢策略调整与土壤化学性质变化[24,29]. 一方面,“微生物氮开采假说”[30]用以解释了氮添加氮后土壤有机碳的分解,即在氮沉降提高氮有效性后,微生物通过分解土壤有机质获取氮源的行为被抑制,导致微生物残体生成量下降. 另一方面,氮限制会促使微生物将能量用于合成胞外酶以获取氮,降低碳利用效率,而氮素输入虽缓解氮限制,但长期高氮输入可能导致微生物适应低效代谢模式,从而减少残体积累[31].
当前,关于青藏高原高寒沼泽草甸生态系统对增温与施氮的响应方面,已开展的工作主要集中于植物生长生理、微生物群落结构、土壤碳通量等方面[32~34],针对土壤微生物残体碳累积及其影响因素的研究仍鲜有报道,尤其是在高寒生态系统,环境因子如何通过影响土壤微生物过程(微生物能量代谢和生长策略等)[24,35],进而改变微生物残体碳的积累及其对土壤有机碳的贡献,其具体机制仍不明确. 基于此背景,本研究以青藏高原沼泽草甸为对象,分别设置对照、增温、施氮以及增温同时施氮4组处理,通过测定土壤微生物残体碳含量、微生物群落组成及多样性,同时关注土壤养分特征及相关酶活性,分析增温与施氮条件下微生物残体碳组分特征、及其对土壤有机碳的贡献率,并利用Mantel分析和偏最小二乘路径模型厘清微生物残体碳变异的关键驱动因素. 本研究结果将为深入理解高寒草地土壤微生物残体碳的组成及变化规律,揭示其非生物学和微生物学调控机制提供数据参考,对于准确评估气候变化背景下高寒生态系统土壤碳库的稳定性和固碳潜力具有重要意义.
1 材料与方法 1.1 研究区概况本研究样地位于青藏高原北麓河风火山地区的高寒沼泽草甸(34°43'35.7″N,92°53'45.3″E),海拔4 754 m,流域面积112.5 km2,是通天河的二级支流,隶属于青海省玉树藏族自治州曲麻莱县. 该区域属于高原大陆性气候区,气候寒冷干燥,年均气温约-5.3℃,年均降水量约270 mm,年均蒸发量高达约1 478 mm. 冻结期长,植被生长季为5~9月. 该区地下埋藏多年冻土,形成不透水层,导致土壤过湿,是高寒沼泽草甸的典型分布区[36]. 主要植被类型为湿中生、湿生多年草本植物群落,优势种包括藏嵩草(Kobresia tibetica),伴生种有青藏苔草(Carex atrofusca)和矮火绒草(Leontopodium nanum)等[37],草群覆盖度达85%以上[38].
1.2 试验设计选取物种组成一致,群落结构稳定的区域,设置4种处理组:对照(CK)、增温(W)、施氮(N)、增温同时施氮(WN),每种处理设置3个重复,共计12个试验单元,以确保数据的可靠性和统计分析的准确性. 样地安装空气温湿度计(HMP155-L15,芬兰)和CR1000数据采集仪(Campbell,美国),用来测定和记录地表上方0.2 m处的空气温度. 土壤温度传感器EC-TM(Decagon Devices Inc.,美国)记录地下5 cm深度处的土壤温度. 土壤温度分辨率为0.1℃,数据由EM50自动数据采集仪(Decagon,美国)以30 min为间隔记录. 于2024年9月底,在不同试验单元内布设3个15 cm×15 cm的样方用于土壤采集,使用灭菌后的不锈钢土钻采集深度0~20 cm的土壤,将同一试验单元的样品混合后作为一个样品并做好标记,共计12个样本. 将原状土样放置保温箱冷藏带回实验室后,各土样分为2份:一份自然风干后用于测定土壤养分特征及酶活性;一份鲜样于-80℃的条件下储存,用于微生物测序分析及氨基糖测定.
1.2.1 模拟增温方式本研究采用国际冻原计划(ITEX)推荐的模拟增温方法,于2016年6月,在青藏高原风火山高寒沼泽草甸,选取物种组成一致,群落结构稳定的区域,设置开顶式增温系统(OTCs)[39],OTCs增温装置采用六边形圆台结构的增温小室,六面均由有机玻璃制成,透光95%,小室高度为0.8 m,圆台斜边均与地面成60°倾角. 根据样地中已设置的增温小室内2024年测定资料(图 1),生长期平均气温相比对照点提高了5.69℃,5 cm地温相比对照点提高了2.65℃,增温效果良好.

|
图 1 2024年6~9月增温小室内外月平均气温与5 cm地温 Fig. 1 Monthly air temperature and 5 cm soil temperature inside and outside the OTCs during the growing season from June to September in 2024 |
所使用的氮肥为NH4NO3(分析纯). 每年植被生长季初期(6月)第一次施氮,每一个月用NH4NO3水溶液的形式在施氮处理(N和WN)喷施1次,分4次输入. 每次按照处理氮输入水平要求[以N计,10 g·(m2·a)-1],将需要施加的NH4NO3溶解于200 mL水中,用喷壶均匀喷洒. 同时,在其他未施氮处理(CK和W)喷洒相同体积的水,以减少水分输入对试验造成的系统误差.
1.3 测定项目与方法土壤有机碳(SOC)采用重铬酸钾氧化-外加热法测量[40];总氮(TN)采用半微量凯氏定氮法测量[40];铵态氮(NH4+-N)、硝态氮(NO3--N)和亚硝氮(NO2--N)采用氯化钾溶液提取-分光光度法测定[41];总磷(TP)、无机磷(I-P)和有机磷(O-P)采用碱熔-钼锑抗分光光度法测定[40]. N-乙酰-β-D-葡萄糖苷酶(NAG)采用对硝基苯酚显色法测量[42];β-葡萄糖苷酶(BG)采用硝基酚比色法测定,脲酶(URE)采用苯酚钠-次氯酸钠比色法,多酚氧化酶(PPO)和过氧化物酶(POD)采用可见分光光度法测定[43];土壤碱性磷酸酶(ALP)的测定使用了土壤碱性磷酸酶试剂盒(Solarbio,北京).
1.4 土壤氨基糖测定方法采用邻苯二甲醛(OPA)柱前在线衍生-高效液相色谱法测定氨基糖[44],主要包括胞壁酸(MurN)、氨基甘露糖(ManN)、氨基半乳糖(GalN)和氨基葡萄糖(GluN). 称取1 g鲜土于水解管中,加入盐酸,在烘箱中水解6 h,待水解液冷却至室温后,摇匀溶液静置过夜. 用N-Evap-112氮吹仪(Organomation,美国)在氮气水浴30℃吹干,超纯水再次吹干后过滤,该土壤氨基糖提取液于4℃保存待测. 本研究利用含有4种氨基糖的混合标准样品进行定量分析,使用Ultimate 3000高效液相色谱仪(Thermo Fisher,美国)测定.
1.5 土壤微生物扩增子分析方法采用Magnetic Soil And Stool DNA Kit试剂盒(TIANGEN BIOTECH,北京)提取土样基因组DNA,提取后用含量1%的琼脂糖凝胶电泳检测DNA质量. 选用针对真菌的带有Barcode信息的引物ITS3-2024F(GCATCGATGAAGAACGCAGC)、ITS4-2409R(TCCT CCGCTTATTGATATGC)对真菌ITS2区进行扩增;选用针对细菌的带有Barcode信息的引物341F(5′-CC TAYGGGRBGCASCAG-3′)和806R(5′-GGACTACNN GGGTATCTAAT-3′)对细菌16S rDNA的V3-V4区进行扩增. 高保真酶Phusion® High-Fidelity PCR Master Mix with GC Buffer(New England Biolabs,美国)用于PCR扩增. 30 μL PCR反应体系为:15 μL Phusion Master Mix(2×),引物Primer(2 μmol·L-1)各1.5 μL,DNA模板(1 ng·μL-1)10 μL,超纯水2 μL. PCR反应条件为:98℃预变性1 min;98℃变性10 s,50℃退火30 s,72℃延伸30 s,进行30个循环;72℃延伸5 min. 使用浓度2%的琼脂糖凝胶对PCR产物进行电泳检测回收,用GeneJET胶回收试剂盒(Thermo Scientific,美国)进行纯化. 使用TruSeq DNA PCR-Free Library Preparation Kit建库试剂盒构建文库,构建好的文库经过Qubit定量和文库检测合格后,使用NovaSeq 6000测序平台(诺禾致源生物信息科技有限公司,北京)进行上机测序.
1.6 数据处理 1.6.1 微生物残体碳含量计算真菌残体碳(FNC)和细菌残体碳(BNC)的计算过程如下[45]:
| (1) |
| (2) |
式中,179.2表示GluN的相对分子质量,9表示真菌GluN转化为FNC的转化值,45表示细菌MurN转化为BNC的转化因子. 总微生物残体碳(MNC)为FNC和BNC的总和. 上述指标单位均为mg·g-1.
1.6.2 统计分析通过SPSS Statistics 26(International Business Machines Corporation,美国)软件进行单因素方差分析(one-way ANOVA)判断不同处理下微生物残体碳以及生物与非生物因素差异性,采用Origin 2022(OriginLab Corporation,美国)软件绘图;使用R(Version 4.4.3)软件对FNC、BNC与土壤细菌和真菌主要门类进行Mantel r相关性分析;使用R软件“plspm”包中的偏最小二乘路径模型(PLS-PM)完成路径分析.
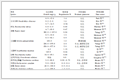
2 结果与分析 2.1 增温与施氮对土壤养分特征的影响相比CK,W内土壤SOC含量无显著变化,N和WN内SOC则分别显著下降了55.24%和44.38%(P < 0.05)(表 1). 土壤TN含量在W和WN内则分别显著下降了39.01%和24.65%(P < 0.05);NO3--N含量在W内降低90.39%(P < 0.05),在N和WN内分别显著升高244.17%和925.68%(P < 0.05). 土壤TP在N及WT内分别显著下降了13.60%、11.38%(P < 0.05). O-P含量在N及WN内分别显著下降了38.26%、32.82%(P < 0.05).
|
表 1 不同处理内土壤养分特征1) Table 1 Soil nutrient properties in different treatments |
2.2 增温与施氮对土壤酶活性的影响
相比CK,土壤NAG、BG和PPO活性在W、N和WN内均呈显著降低趋势(表 2). 其中在W内,NAG、BG和PPO活性降低了14.10%、17.86%和32.67%(P < 0.05),在N内则降低了54.54%、32.51%和39.30%(P < 0.05),而在WN内降低幅度分别为19.83%、13.11%和32.77%(P < 0.05). 土壤POD活性仅在WN内降低,降幅为31.05%(P < 0.05). URE活性的变化则与上述相反,在W、N及WN内均呈显著升高的趋势,相比CK分别显著增加了15.25%、66.23%和84.47%(P < 0.05).
|
|
表 2 不同处理内土壤酶活性/U·g-1 Table 2 Soil enzyme activities in different treatments/U·g-1 |
2.3 增温与施氮对微生物多样性与群落组成的影响
相比CK,真菌Chao1指数在W和N处理内分别显著下降36.52%和59.03%(P < 0.05),Shannon指数在W、N和WN处理内分别降低10.65%、19.32%和8.82%(P < 0.05),Simpson指数则在W、N和WN处理内分别下降1.71%、3.33%和3.00%(P < 0.05)(表 3). 细菌的α多样性在W、N及WN处理内均无显著差异.
|
|
表 3 不同处理下土壤微生物 Chao1、Shannon和Simpson 指数 Table 3 Microbial Chao1, Shannon, and Simpson indices in soil in different treatments |
对真菌和细菌以门水平分类进行筛选,真菌主要门类有子囊菌门(Ascomycota)、毛霉门(Mucoromycota)、担子菌门(Basidiomycota)、壶菌门(Chytridiomycota)、蜡蚧轮枝菌(Lecanicillium muscarium)、隐真菌门(Cryptomycota)、芽枝霉门(Blastocladiomycota)、捕虫霉门(Zoopagomycota)和新胃菌门(Neocallimastigomycota)(图 2). 其中Ascomycota、Mucoromycota、Basidiomycota和Chytridiomycota 4种菌门的占比超过90%. 在不同处理中,W内Chytridiomycota、Cryptomycota和Blastocladiomycota占比有所降低,对于其余菌门影响较小. N内Ascomycota、Mucoromycota和Basidiomycota的占比有所增加,Chytridiomycota和Cryptomycota的占比有所下降.

|
(a)真菌,(b)细菌 图 2 不同处理下土壤真菌和细菌门水平相对丰度 Fig. 2 Relative abundance at the soil fungal and bacterial phylum level under different treatments |
细菌主要门类有变形菌门(Proteobacteria)、酸杆菌门(Acidobacteria)、放线菌门(Actinobacteria)、芽单胞菌门(Gemmatimonadetes)、厚壁菌门(Firmicutes)、硝化螺旋菌门(Nitrospirae)、拟杆菌门(Bacteroidetes)、疣微菌门(Verrucomicrobia),绿弯菌门(Chloroflexi)和棒状杆菌门(Rokubacteria)(图 2). 其中Proteobacteria、Acidobacteria、Actinobacteria和Gemmatimonadetes这4种菌门的占比超过80%. 相比CK,在W、N及WN处理内Acidobacteria占比有所增加,而Actinobacteria占比有所下降.
2.4 增温与施氮对微生物残体碳的影响相比CK,土壤ManN含量在N内显著上升了365.05%(P < 0.05);土壤GalN含量在N内降低75.71%(P < 0.05);土壤GluN含量在W内上升21.67%(P < 0.05),在N、WN内分别降低57.42%、47.79%(P < 0.05);总氨基糖则在N内上升了192.94%(P < 0.05)(图 3).

|
MurN表示土壤胞壁酸,ManN表示土壤氨基甘露糖,GalN表示土壤氨基半乳糖,GluN表示土壤氨基葡萄糖,Total AS表示土壤总氨基糖;a、b、c和d表示同一指标在不同处理间的显著性差异(P < 0.05),下同 图 3 不同处理下土壤氨基糖含量 Fig. 3 Contents of amino sugars in soil under different treatments |
相比CK,土壤FNC含量在W内显著升高23.20%(P < 0.05),在N和WN内下降了61.86%和50.86%(P < 0.05)(图 4);各处理间BNC含量无显著差异;MNC则在W内升高25.33%(P < 0.05),在N和WN内下降55.11%和43.11%(P < 0.05). 就对SOC的贡献而言,FNC/SOC在W内升高26.76%(P < 0.05),在N和WN内下降15.81%和19.05%(P < 0.05);而BNC/SOC在N和WN内增加了92.24%和73.58%(P < 0.05);MNC/SOC仅在W内升高28.96%(P < 0.05).

|
图 4 不同处理下 FNC、BNC和MNC 的含量及FNC/SOC、BNC/SOC和MNC/SOC Fig. 4 Contents of FNC, BNC, and MNC and their contribution to SOC in soil under different treatments |
Mantel检验分析了土壤FNC和BNC与细菌、真菌门水平物种相对丰度之间的相关关系(图 5). 结果表明,在真菌中,Ascomycota(r=0.541,P=0.008)、Mucoromycota(r=0.719,P=0.010)、Basidiomycota(r=0.419,P=0.016)和Zoopagomycota(r=0.454,P=0.015)与FNC呈显著相关;在细菌中Acidobacteria(r=0.310,P=0.048)和Rokubacteria(r=0.446,P=0.005)与FNC呈显著相关. BNC与细菌和真菌门水平物种相对丰度之间的相关关系则未达显著水平.

|
a1.Ascomycota,a2.Mucoromycota,a3.Basidiomycota,a4.Chytridiomycota,a5.Lecanicillium muscarium,a6.Cryptomycota,a7.Blastocladiomycota,a8.Zoopagomycota,a9.Neocallimastigomycota,b1.Proteobacteria,b2.Acidobacteria,b3.Actinobacteria,b4.Gemmatimonadetes,b5.Firmicutes,b6.Nitrospirae,b7.Bacteroidetes,b8.Verrucomicrobia,b9.Chloroflexi,b10.Rokubacteria 图 5 真菌和细菌各门类与FNC和BNC的Mantel关联分析 Fig. 5 Mantel correlation analysis of fungal and bacterial phyla with FNC and BNC |
FNC、BNC和MNC与各因子的相关性分析见图 6. FNC和MNC与POD、真菌Simpson指数和细菌Chaol指数呈显著正相关(P < 0.05),与SOC、TP、O-P和NAG呈极显著正相关(P < 0.01),与NO3--N和URE呈极显著负相关(P < 0.05). BNC则仅与TN呈显著负相关(P < 0.05).

|
*表示P < 0.05,**表示P < 0.01,***表示P < 0.001;红色表示正相关,蓝色表示负相关,颜色深浅表示相关性强弱,圆圈面积表示相关系数绝对值大小;1.SOC,2.TN,3.NH4+-N,4.NO3--N,5.NO2--N,6.TP,7.I-P,8.O-P,9.A-P,10.NAG,11.BG,12.PPO,13.POD,14.URE,15.ALP,16.真菌Chao1指数,17.真菌Shannon指数,18.真菌Simpson指数,19.细菌Chao1指数,20.细菌Shannon指数,21.细菌Simpson指数,22.FNC,23.BNC,24.MNC 图 6 微生物残体碳与土壤养分特征、酶活性和α多样性的相关性分析 Fig. 6 Correlations of MNC with soil nutrient properties, enzyme activities, and α diversities |
将各因子进行标准化处理,用偏最小二乘路径模型(PLS-PM)探究各因子对MNC的直接、间接影响(图 7). PLS-PM解释了MNC 89.2%的方差,解释了土壤养分特征、α多样性和酶活性92.4%、60.8%和87.6%的方差,模型拟合优度为0.6962. 结果显示,增温对酶活性有着显著的直接影响(路径系数=-0.29,P < 0.05);而施氮对于土壤养分特征具有显著的直接影响(路径系数=0.96,P < 0.001),进而间接影响着MNC(路径系数=-1.05,P < 0.001).

|
*表示P < 0.05,**表示P < 0.01,***表示P < 0.001;橙色箭头表示正相关关系,绿色箭头表示负相关关系,箭头所列数字为标准化路径系数;R2值表示该变量所解释的因变量的比例;GOF为全局拟合优度,用于综合评估模型的整体预测能力 图 7 MNC与土壤养分特征、酶活性和α多样性的偏最小二乘路径模型 Fig. 7 PLS-PM of MNC with soil nutrient properties, enzyme activities, and α diversities |
土壤养分特征(SOC,TN和TP等),通过调控养分供应和环境条件,显著改变微生物群落结构及植物生长发育,进而影响生态系统功能[46,47]. 本研究发现,增温显著降低了TN和NO3--N含量(表 1),这与温度升高促进了植物生物量增加,加速植物对土壤有效氮的吸收有关[47]. 施氮则显著增加了NO3--N含量,但SOC、TP和O-P含量显著降低(表 1). 分析原因,氮源的增加会促进土壤中微生物群落的生长和代谢活动,从而加速了土壤有机质的分解,释放出更多的二氧化碳并降低土壤SOC水平[48];另一方面,额外的氮源有助于微生物尤其是硝化细菌的生长和繁殖,加速了氮的转化过程,进一步促进了NO3--N的积累[49],而微生物活性的增加还会促进磷的矿化过程,从而导致TP的下降[50].
在土壤酶活性与微生物α多样性中,本研究发现,增温、施氮以及增温同时施氮显著降低了土壤NAG、BG和PPO活性(表 2). 温度升高加速土壤有机碳的分解速率,使微生物优先消耗碳源用于呼吸而非酶的生产,由此引起的底物匮乏会导致碳循环酶(NAG和BG)活性降低[48];同时,高寒生态系统土壤微生物群落适应长期低温环境,而升温超出酶合成的适宜温度会导致相关基因表达下调或代谢紊乱[50]. 另一方面,氮素添加引起的硝态氮的升高通常会造成土壤酸化[51],从而抑制微生物活性并导致其分泌酶数量减少,而土壤pH的变化也会引起酶的空间构象改变,从而抑制酶的催化活性[52]. 同时,当氮供应增加时,微生物倾向于优先利用易分解的有机质,而非需要多酚氧化酶参与的顽固性有机质(如木质素),因此参与分解复杂碳源的相关酶合成受到抑制[53]. 与上述酶活性相反,URE活性在施氮处理(N和WN)显著上升(表 2),表明氮施加促进了土壤氮的矿化作用,为了有效利用这些氮源,微生物加速了脲酶的合成,从而加速了尿素转化为可用氮的过程[49]. 基于上述分析,增温与施氮显著地改变土壤碳、氮、磷等关键养分的有效性,影响了微生物的功能策略,导致优势类群挤压其他物种的生态位[51];而增温与施氮引起的土壤湿度下降、pH降低会直接抑制微生物的生长繁殖[52],使各处理(W、N和WN)内真菌α多样性均显著下降(表 3).
3.2 微生物残体碳对增温与施氮的响应土壤微生物残体碳是陆地生态系统有机碳库的重要组成部分,其在土壤中的积累和转化对土壤碳储量和养分循环具有至关重要的影响[53]. 增温显著增加了真菌残体碳(FNC)和微生物残体碳(MNC)含量,二者在SOC中的占比也明显增加(图 4). 分析原因,增温加速微生物的整体代谢速率和有机物分解,加快微生物的生命周期和周转;同时,增温也能通过刺激植物生长和光合作用,增加根系分泌物等有机碳输入,为微生物提供更多碳源[54],从而促进微生物的生长,增加残体的产生.
本研究中,施氮显著降低了FNC含量及其对SOC的贡献,而BNC对SOC的贡献则有显著增加(图 4). 首先,真菌通常更依赖于较高的碳氮比,施氮使得碳氮比降低,从而抑制了真菌的生长[55];其次,真菌主要分解土壤中的复杂有机物(如木质素和纤维素等),而细菌则更擅长分解简单的有机物(如单糖、氨基酸等)[56],施氮(NH4NO3水溶液)条件下细菌群体快速利用无机氮进行生长和代谢,同时消耗底物中可利用碳源,最终使真菌群落的生长和基本代谢受限[57,58];此外,尽管施氮可能促进了细菌的生长和繁殖[59],但同时也加速了细菌残体的分解,而SOC在施氮条件下显著的降低则导致细菌残体碳的比例相对上升.
在WN处理内,施氮对真菌抑制效应似乎占据主导(图 4). 增温虽然能提高代谢速率,但施氮带来的C∶N比失衡以及碳源快速消耗,共同抑制了真菌的生长[60],导致真菌残体碳含量及贡献率显著降低,未能体现增温的潜在促进作用. 细菌残体碳对SOC贡献的增加,则反映了细菌在氮肥和温度双重刺激下的相对优势.
3.3 土壤养分特征、酶活性、真菌群落和微生物残体碳之间的相关性Mantel检验分析发现了特定微生物类群与FNC含量之间的显著相关性,在真菌群落中,子囊菌门(Ascomycota)、担子菌门(Basidiomycota)、毛霉门(Mucoromycota)和捕虫霉门(Zoopagomycota)与FNC间呈显著相关(图 5). 子囊菌门和担子菌门作为土壤生态系统中主要的真菌生物量贡献者和有机物分解者,其菌丝体和孢子等残体的积累是真菌残体碳的重要直接来源,其细胞壁中富含的几丁质和黑色素等难降解组分有助于真菌残体碳的相对稳定存在[61]. 在细菌群落方面,酸杆菌门(Acidobacteria)和棒状杆菌门(Rokubacteria)与FNC的显著相关性(图 5)则反映了它们在真菌残体碳分解转化过程中的作用[62]. 酸杆菌门成员广泛,部分种类具有分解复杂有机物的能力,可能参与了真菌残体碳中难降解组分的利用[61]. 棒状杆菌门则是几丁质等复杂聚合物的分解者,真菌残体富含的几丁质为其提供了丰富的底物,因此其丰度与真菌残体碳含量正相关[63].
在土壤养分特征中,SOC、TP和O-P与FNC存在显著的正相关,TN与BNC以及NO3--N与FNC和MNC间均存在显著负相关关系(图 6). SOC作为关键因子显著影响细菌残体碳与真菌残体碳的积累,这与SOC通过矿物结合作用及碳源供给促进微生物活性紧密相关[64]. 首先,真菌通过分解有机物来获取碳和能量,较高的SOC水平意味着更多的基质和多样化的底物,进一步提高真菌的总体生物量;其次,富含有机碳的土壤通常支持更强健的植物生长,更多的植物投入会促进真菌的生长[55]. 另一方面,磷元素对微生物生长的直接刺激作用,磷是真菌生长和发挥作用所必需的基本生物分子的重要组成部分,是陆地生态系统中的限制性营养物质,磷的有效性增加(TP和O-P)可以使得真菌更快地合成ATP、DNA、RNA和细胞膜[65],当真菌生长速度加快,营养胁迫变少,每单位碳消耗可以产生更大的生物量,从而增加真菌残体碳的积累. 与之相反,TN和NO3--N与BNC和FNC间的负相关关系则反映了土壤酸化对酶活性的抑制以及对微生物群落的胁迫效应[64];充足的氮素供应也可以缓解分解者对氮素的需求,由此导致微生物残体碳产生后被更快地消耗,从而降低了其积累量. PLS-PM结果进一步表明,微生物残体碳主要受土壤养分特征的调控(图 7),原因与外源氮输入加速了碳源消耗,间接降低微生物残体碳有关[57].
在生物因素维度,真菌残体碳与NAG、POD、真菌Simpson指数和细菌Chaol指数呈显著正相关,与URE呈显著负相关(图 6). NAG直接作用于真菌残体碳的主要成分(几丁质)的分解产物,更高的真菌残体碳意味着有更多的底物可供利用[66],诱导微生物产生更多的NAG. 较高的POD通常出现在富含难分解有机物(如木质素)的环境中,这些环境往往也支持大量的真菌生长[67],反映了有利于真菌生长的特定分解活动的生态位,进而产生更多的真菌残体碳. URE的显著负贡献表明,施氮提升了土壤氮素有效性,一方面通过缓解微生物的氮限制促进了URE活性的提高,另一方面也激发了微生物对现有土壤有机质的分解,从而导致真菌残体碳含量降低.
4 结论(1)增温导致土壤TN含量,NAG、BG、PPO活性以及真菌α多样性显著下降;施氮导致土壤SOC、TP和O-P含量,NAG、BG和PPO活性以及真菌α多样性显著下降,土壤NO3--N含量和URE活性则明显升高;在增温同时施氮下,SOC、TN、TP和O-P含量,NAG、BG、PPO活性以及真菌α多样性均显著下降,NO3--N含量和URE活性则显著升高.
(2)增温与施氮对土壤微生物残体碳的积累表现出截然相反的效应. 其中,增温通过直接影响微生物代谢和间接改变植物碳输入及土壤养分特征有效性,促进了真菌残体碳的积累及其对SOC的贡献,导致FNC和FNC/SOC显著增加;而施氮增加了土壤氮素的有效性,缓解了微生物分解过程中的氮限制,使真菌群落的生长和基本代谢受限,导致FNC和FNC/SOC显著下降;BNC/SOC在施氮、增温同时施氮下显著增加,表明氮源添加促进了土壤中微生物群落的生长和代谢活动,加速了土壤SOC的分解.
(3)土壤养分是调控高寒沼泽草甸土壤微生物残体碳动态的主导因素,其中SOC,TP,O-P,TN和NO3--N与MNC含量间均呈显著相关关系;相比之下,虽然特定的微生物类群(如真菌门类中子囊菌门、毛霉门、担子菌门和捕虫霉门,细菌门类中酸杆菌门和棒状杆菌门)、土壤酶活性(URE,POD和URE)及微生物α多样性(真菌Simpson指数和细菌Chao1指数)与MNC均存在显著相关性,但路径分析表明这些因素对MNC的直接影响并不显著.
| [1] |
邹珊, 吕富成. 青藏高原两种特殊的植被类型: 高寒草原和高寒草甸[J]. 地理教学, 2016(2): 4-7, 46. Zou S, Lv F C. Two special vegetation types in Qinghai-Tibet Plateau: alpine grassland and alpine meadow[J]. Geography Teaching, 2016(2): 4-7, 46. |
| [2] | IPCC. Climate change 2021: the physical science basis[R]. Cambridge: Cambridge University Press, 2021. |
| [3] |
高文静. 高寒草地氮磷添加对土壤微生物群落和碳矿化的影响[D]. 兰州: 兰州大学, 2023. Gao W J. Effects of nitrogen and phosphorus addition on soil microbial community and carbon mineralization in an alpine grassland[D]. Lanzhou: Lanzhou University, 2023. |
| [4] |
陈霈嘉, 王训, 王定勇. 典型冰川退缩区铅的来源、累积及历史沉降——以青藏高原海螺沟冰川退缩区为例[J]. 中国环境科学, 2021, 41(8): 3704-3713. Chen P J, Wang X, Wang D Y. Lead sources, accumulation and historical deposition in typical glacial retreat area: a case study of Hailuogou glacial retreat area, Qinghai-Tibet Plateau[J]. China Environmental Science, 2021, 41(8): 3704-3713. |
| [5] | Cotrufo M F, Soong J L, Horton A J, et al. Formation of soil organic matter via biochemical and physical pathways of litter mass loss[J]. Nature Geoscience, 2015, 8(10): 776-779. DOI:10.1038/ngeo2520 |
| [6] | You Q L, Cai Z Y, Pepin N, et al. Warming amplification over the Arctic Pole and Third Pole: trends, mechanisms and consequences[J]. Earth-Science Reviews, 2021, 217. DOI:10.1016/j.earscirev.2021.103625 |
| [7] | Liang C, Schimel J P, Jastrow J D. The importance of anabolism in microbial control over soil carbon storage[J]. Nature Microbiology, 2017, 2(8). DOI:10.1038/nmicrobiol.2017.105 |
| [8] | Oglesby R T, Christman R F, Driver C H. The biotransformation of lignin to humus—facts and postulates[J]. Advances in Applied Microbiology, 1968, 9: 171-184. |
| [9] | Camenzind T, Mason-Jones K, Mansour I, et al. Formation of necromass-derived soil organic carbon determined by microbial death pathways[J]. Nature Geoscience, 2023, 16(2): 115-122. DOI:10.1038/s41561-022-01100-3 |
| [10] |
徐英德, 孙良杰, 王阳, 等. 土壤微生物群落对玉米根茬和茎叶残体碳的利用特征[J]. 中国环境科学, 2020, 40(10): 4504-4513. Xu Y D, Sun L J, Wang Y, et al. Characteristics of microbial utilization of maize root-and straw derived carbon[J]. China Environmental Science, 2020, 40(10): 4504-4513. |
| [11] |
李芳芳, 李中文, 李宇轩, 等. "微生物碳泵"作用下的土壤有机碳稳定性及其吸附特性研究进展[J]. 农业环境科学学报, 2022, 41(6): 1155-1163. Li F F, Li Z W, Li Y X, et al. Stability of soil organic carbon in the "microbial carbon pump" process and its adsorption characteristics: a review[J]. Journal of Agro-Environment Science, 2022, 41(6): 1155-1163. |
| [12] |
周正虎, 刘琳, 侯磊. 土壤有机碳的稳定和形成: 机制和模型[J]. 北京林业大学学报, 2022, 44(10): 11-22. Zhou Z H, Liu L, Hou L. Soil organic carbon stabilization and formation: mechanism and model[J]. Journal of Beijing Forestry University, 2022, 44(10): 11-22. |
| [13] | Cai M K, Zhao G, Zhao B, et al. Climate warming alters the relative importance of plant root and microbial community in regulating the accumulation of soil microbial necromass carbon in a Tibetan alpine meadow[J]. Global Change Biology, 2023, 29(11): 3193-3204. DOI:10.1111/gcb.16660 |
| [14] |
秦冬锐, 黄懿梅, 黄倩, 等. 黄土高原典型林草地不同土层微生物残体碳对土壤有机碳组分的贡献及其影响因素[J]. 环境科学, 2025, 46(9): 5705-5717. Qin D R, Huang Y M, Huang Q, et al. Contribution of microbial necromass carbon to soil organic carbon fractions and its influencing factors in different soil layers of typical forest land and grassland in the Loess Plateau, China[J]. Environmental Science, 2025, 46(9): 5705-5717. DOI:10.13227/j.hjkx.202408038 |
| [15] | Melillo J M, Butler S, Johnson J, et al. Soil warming, carbon-nitrogen interactions, and forest carbon budgets[J]. Proceedings of the National Academy of Sciences of the United States of America, 2011, 108(23): 9508-9512. |
| [16] | Pold G, Melillo J M, Deangelis K M. Two decades of warming increases diversity of a potentially lignolytic bacterial community[J]. Frontiers in Microbiology, 2015, 6. DOI:10.3389/fmicb.2015.00480 |
| [17] | Frey S D, Lee J, Melillo J M, et al. The temperature response of soil microbial efficiency and its feedback to climate[J]. Nature Climate Change, 2013, 3(4): 395-398. DOI:10.1038/nclimate1796 |
| [18] |
卢孟雅, 丁雪丽. 基于Meta分析的增温对土壤微生物残体积累影响[J]. 土壤学报, 2024, 61(5): 1444-1454. Lu M Y, Ding X L. A meta-analysis of soil microbial necromass accumulation in response to climate warming[J]. Acta Pedologica Sinica, 2024, 61(5): 1444-1454. |
| [19] |
种碧莹, 金显玲, 徐海燕, 等. 长期增温和围栏封育对高寒草原土壤微生物残体碳积累的影响不显著[J]. 冰川冻土, 2023, 45(4): 1391-1400. Chong B Y, Jin X L, Xu H Y, et al. Long-term warming and fencing had no significant effects on the carbon accumulation from soil microbial necromass in alpine grassland[J]. Journal of Glaciology and Geocryology, 2023, 45(4): 1391-1400. |
| [20] |
杨聪颖. 冬季增温和刈割作用下青藏高原高寒草原土壤有机碳含量及其组分变化的评估[D]. 杨凌: 西北农林科技大学, 2024. Yang C Y. Assessment of changes of soil organic carbon content and its components in alpine steppe of Qinghai-Tibet Plateau under winter warming and clipping[D]. Yangling: Northwest A & F University, 2024. |
| [21] | Ding X L, Chen S Y, Zhang B, et al. Warming increases microbial residue contribution to soil organic carbon in an alpine meadow[J]. Soil Biology and Biochemistry, 2019, 135: 13-19. DOI:10.1016/j.soilbio.2019.04.004 |
| [22] |
阳东桥, 张子寒, 卢孟雅, 等. 表土和底土中微生物残体对增温的差异性响应[J]. 土壤学报, 2026, 63(1): 315-328. Yang D Q, Zhang Z H, Lu M Y, et al. Differential responses of microbial necromass to warming in topsoil and subsoil[J]. Acta Pedologica Sinica, 2026, 63(1): 315-328. |
| [23] | Ding X L, Chen S Y, Zhang B, et al. Warming yields distinct accumulation patterns of microbial residues in dry and wet alpine grasslands on the Qinghai-Tibetan Plateau[J]. Biology and Fertility of Soils, 2020, 56(7): 881-892. DOI:10.1007/s00374-020-01474-9 |
| [24] | Liang C, Balser T C. Warming and nitrogen deposition lessen microbial residue contribution to soil carbon pool[J]. Nature Communications, 2012, 3. DOI:10.1038/ncomms2224 |
| [25] |
杨艳, 赵远, 胡汗, 等. 微生物残体碳的贡献率和储量在全球的分布规律及其驱动因素[J]. 环境科学, 2025, 46(10): 6522-6530. Yang Y, Zhao Y, Hu H, et al. Distribution and driving factors of contribution rate and stock of global microbial necromass carbon[J]. Environmental Science, 2025, 46(10): 6522-6530. DOI:10.13227/j.hjkx.202408272 |
| [26] |
杨静怡, 王旭, 孙立飞, 等. 氮磷添加对长白山温带森林土壤微生物群落组成和氨基糖的影响[J]. 应用生态学报, 2020, 31(6): 1948-1956. Yang J Y, Wang X, Sun L F, et al. Effects of nitrogen and phosphorus addition on soil microbial community and amino sugar in a temperate forest on Changbai Mountain, Northeast China[J]. Chinese Journal of Applied Ecology, 2020, 31(6): 1948-1956. |
| [27] |
崔艳荷, 张威, 何红波, 等. 外源氮素添加对森林土壤氨基糖转化的影响[J]. 生态学杂志, 2016, 35(4): 960-965. Cui Y H, Zhang W, He H B, et al. Effect of nitrogen addition on transformation of amino sugars in forest soil[J]. Chinese Journal of Ecology, 2016, 35(4): 960-965. |
| [28] | Meng X T, Zhang X C, Li Y N, et al. Nitrogen fertilizer builds soil organic carbon under straw return mainly via microbial necromass formation[J]. Soil Biology and Biochemistry, 2024, 188. DOI:10.1016/j.soilbio.2023.109223 |
| [29] | Zhang W, Cui Y H, Lu X K, et al. High nitrogen deposition decreases the contribution of fungal residues to soil carbon pools in a tropical forest ecosystem[J]. Soil Biology and Biochemistry, 2016, 97: 211-214. DOI:10.1016/j.soilbio.2016.03.019 |
| [30] | Craine J M, Morrow C, Fierer N. Microbial nitrogen limitation increases decomposition[J]. Ecology, 2007, 88(8): 2105-2113. DOI:10.1890/06-1847.1 |
| [31] |
冯晓娟, 戴国华, 刘婷, 等. 从生物地球化学视角理解土壤碳封存的机制和潜在途径[J]. 中国科学: 地球科学, 2024, 67(11): 3421-3432. Feng X J, Dai G H, Liu T, et al. Understanding the mechanisms and potential pathways of soil carbon sequestration from the biogeochemistry perspective[J]. Science China Earth Sciences, 2024, 67(11): 3386-3396. |
| [32] | Li M J, Ge Y Q, Ganjurjav H, et al. Warming intensified the effects of nitrogen addition on N2O emissions from alpine meadow in the northern Qinghai-Tibet Plateau[J]. Advances in Climate Change Research, 2024, 15(1): 101-112. DOI:10.1016/j.accre.2024.01.007 |
| [33] |
许庆民, 顾晓梦, 王云英, 等. 模拟氮沉降显著提高青藏高原高寒草地氧化亚氮排放速率[J]. 草地学报, 2023, 31(12): 3785-3792. Xu Q M, Gu X M, Wang Y Y, et al. Simulated nitrogen deposition significantly increases nitrous oxide emission rate from alpine grassland on the Tibetan Plateau[J]. Acta Agrestia Sinica, 2023, 31(12): 3785-3792. |
| [34] |
暴涵, 陈克龙, 章妮, 等. 模拟增温对青海湖湿地土壤产甲烷菌群落的影响[J]. 环境科学与技术, 2023, 46(3): 40-47. Bao H, Chen K L, Zhang N, et al. Effects of simulated warming on soil methanogens community in wetland of Qinghai Lake[J]. Environmental Science & Technology, 2023, 46(3): 40-47. |
| [35] | Yang S S, Sun J Y, Wang C, et al. Residue quality drives SOC sequestration by altering microbial taxonomic composition and ecophysiological function in desert ecosystem[J]. Environmental Research, 2024, 250. DOI:10.1016/j.envres.2024.118518 |
| [36] |
张涛, 王根绪, 杨燕, 等. 青藏高原多年冻土区不同草地类型生态系统呼吸季节差异性[J]. 冰川冻土, 2018, 40(6): 1255-1264. Zhang T, Wang G X, Yang Y, et al. The seasonal variation of ecosystem respiration in different vegetation types in the permafrost regions of Qinghai-Tibet Plateau[J]. Journal of Glaciology and Geocryology, 2018, 40(6): 1255-1264. |
| [37] |
唐川川, 王根绪, 张莉, 等. 青藏高原高寒沼泽化草甸群落生物量及地下CNP对积雪增加的响应[J]. 冰川冻土, 2021, 43(2): 618-627. Tang C C, Wang G X, Zhang L, et al. Responses of plant community biomass and below-ground CNP stocks to snow addition in alpine swamp meadow on the Tibetan Plateau[J]. Journal of Glaciology and Geocryology, 2021, 43(2): 618-627. |
| [38] |
白炜, 奚晶阳, 王根绪. 短期增温与施氮对青藏高原高寒沼泽草甸生态系统CO2排放的影响[J]. 生态学杂志, 2019, 38(4): 927-936. Bai W, Xi J Y, Wang G X. Effects of short-term warming and nitrogen addition on CO2 emission during growing season in an alpine swamp meadow ecosystem of Qinghai-Tibetan Plateau[J]. Chinese Journal of Ecology, 2019, 38(4): 927-936. |
| [39] |
陈若欣, 尹正辉, 斯确多吉, 等. 模拟增温和加雪对高寒草甸植物群落和土壤养分的影响[J]. 高原科学研究, 2024, 8(4): 22-30. Chen R X, Yin Z H, Tsechoe-Dorji, et al. Effects of simulated warming and snow addition on plant community and soil nutrient in alpine meadow[J]. Plateau Science Research, 2024, 8(4): 22-30. |
| [40] | 鲁如坤. 土壤农业化学分析方法[M]. 北京: 中国农业科技出版社, 2000. |
| [41] | HJ 634-2012, 土壤氨氮、亚硝酸盐氮、硝酸盐氮的测定氯化钾溶液提取-分光光度法[S]. |
| [42] | Parham J A, Deng S P. Detection, quantification and characterization of β-glucosaminidase activity in soil[J]. Soil Biology and Biochemistry, 2000, 32(8-9): 1183-1190. DOI:10.1016/S0038-0717(00)00034-1 |
| [43] | 关松萌. 土壤酶及其研究法[M]. 北京: 农业出版社, 1986. |
| [44] |
杨洋, 张心昱, 张应华, 等. 高效液相色谱分析土壤氨基糖的质量控制方法[J]. 土壤, 2023, 55(5): 1152-1159. Yang Y, Zhang X Y, Zhang Y H, et al. Quality control for determining amino sugar contents in soil by high performance liquid chromatography[J]. Soils, 2023, 55(5): 1152-1159. |
| [45] | Zhang X D, Amelung W. Gas chromatographic determination of muramic acid, glucosamine, mannosamine, and galactosamine in soils[J]. Soil Biology and Biochemistry, 1996, 28(9): 1201-1206. DOI:10.1016/0038-0717(96)00117-4 |
| [46] |
李琳, 向丹, 武亚芬, 等. 长期不同施肥方式对日光温室番茄土壤养分和微生物群落结构的影响[J]. 应用生态学报, 2022, 33(2): 415-422. Li L, Xiang D, Wu Y F, et al. Effects of long-term different fertilization patterns on soil nutrients and microbial community structure of tomato in a solar greenhouse[J]. Chinese Journal of Applied Ecology, 2022, 33(2): 415-422. |
| [47] |
宋蒙亚, 李忠佩, 刘明, 等. 不同林地凋落物组合对土壤速效养分和微生物群落功能多样性的影响[J]. 生态学杂志, 2014, 33(9): 2454-2461. Song M Y, Li Z P, Liu M, et al. Effects of mixture of forest litter on nutrient contents and functional diversity of microbial community in soil[J]. Chinese Journal of Ecology, 2014, 33(9): 2454-2461. |
| [48] | Pan W K, Zhou J J, Tang S, et al. Utilisation and transformation of organic and inorganic nitrogen by soil microorganisms and its regulation by excessive carbon and nitrogen availability[J]. Biology and Fertility of Soils, 2023, 59(4): 379-389. DOI:10.1007/s00374-023-01712-w |
| [49] | Li F, Peng Y F, Chen L Y, et al. Warming alters surface soil organic matter composition despite unchanged carbon stocks in a Tibetan permafrost ecosystem[J]. Functional Ecology, 2020, 34(4): 911-922. DOI:10.1111/1365-2435.13489 |
| [50] |
吴菲, 高章伟, 张睿博, 等. 增温对高寒草甸土壤微生物多样性及功能潜力的影响[J]. 北京林业大学学报, 2025, 47(1): 29-38. Wu F, Gao Z W, Zhang R B, et al. Effects of warming on soil microbial diversity and functional potential in alpine meadows[J]. Journal of Beijing Forestry University, 2025, 47(1): 29-38. |
| [51] |
张永春. 长期不同施肥对土壤酸化作用的影响研究[D]. 南京: 南京农业大学, 2012. Zhang Y C. Research of long term fertilization on soil acidification[D]. Nanjing: Nanjing Agricultural University, 2012. |
| [52] | Sardans J, Peñuelas J, Estiarte M. Warming and drought alter soil phosphatase activity and soil P availability in a Mediterranean shrubland[J]. Plant and Soil, 2006, 289(1-2): 227-238. DOI:10.1007/s11104-006-9131-2 |
| [53] |
张彬, 陈奇, 丁雪丽, 等. 微生物残体在土壤中的积累转化过程与稳定机理研究进展[J]. 土壤学报, 2022, 59(6): 1479-1491. Zhang B, Chen Q, Ding X L, et al. Research progress on accumulation, turnover and stabilization of microbial residues in soil[J]. Acta Pedologica Sinica, 2022, 59(6): 1479-1491. |
| [54] |
向雪梅, 德科加, 林伟山, 等. 增温对青藏高原高寒草甸土壤微生物群落的影响[J]. 生态学杂志, 2024, 43(6): 1681-1690. Xiang X M, De K J, Lin W S, et al. The impact of warming on soil microbial communities in an alpine meadow of the Qinghai-Tibet Plateau[J]. Chinese Journal of Ecology, 2024, 43(6): 1681-1690. |
| [55] | Khan K S, Mack R, Castillo X, et al. Microbial biomass, fungal and bacterial residues, and their relationships to the soil organic matter C/N/P/S ratios[J]. Geoderma, 2016, 271: 115-123. DOI:10.1016/j.geoderma.2016.02.019 |
| [56] |
姜永孟. 亚热带森林恢复对土壤微生物残体碳和木质素的影响[D]. 福州: 福建师范大学, 2022. Jiang Y M. Effects of subtropical forest restoration on soil microbial residual carbon and lignin[D]. Fuzhou: Fujian Normal University, 2022. |
| [57] | Zhang J F, Zhou J G, Sayer E J, et al. Nitrogen deposition enhances soil organic carbon and microbial residual carbon in a tropical forest[J]. Plant and Soil, 2023, 484(1-2): 217-235. DOI:10.1007/s11104-022-05787-6 |
| [58] | Zhou J, Jiang X, Zhou B K, et al. Thirty four years of nitrogen fertilization decreases fungal diversity and alters fungal community composition in black soil in Northeast China[J]. Soil Biology and Biochemistry, 2016, 95: 135-143. DOI:10.1016/j.soilbio.2015.12.012 |
| [59] |
张淑红, 高巍, 张恩平, 等. 长期定位施氮对连作番茄土壤可培养微生物数量的影响[J]. 土壤通报, 2012, 43(1): 60-65. Zhang S H, Gao W, Zhang E P, et al. Effect of long-term nitrogen application on culturable microorganisms quantity of tomato continuous cropping[J]. Chinese Journal of Soil Science, 2012, 43(1): 60-65. |
| [60] | Cui J W, Zhu R L, Wang X Y, et al. Effect of high soil C/N ratio and nitrogen limitation caused by the long-term combined organic-inorganic fertilization on the soil microbial community structure and its dominated SOC decomposition[J]. Journal of Environmental Management, 2022, 303. DOI:10.1016/j.jenvman.2021.114155 |
| [61] | Li S S, Du Y H, Guo P, et al. Effects of different types of N deposition on the fungal decomposition activities of temperate forest soils[J]. Science of the Total Environment, 2014, 497-498: 91-96. DOI:10.1016/j.scitotenv.2014.07.098 |
| [62] |
占奥丽, 黄敏, 尹龙, 等. 土壤碳循环微生物作用研究进展[J]. 华中农业大学学报, 2024, 43(4): 70-81. Zhan A L, Huang M, Yin L, et al. Roles of microorganisms in carbon cycling in soil[J]. Journal of Huazhong Agricultural University, 2024, 43(4): 70-81. |
| [63] |
王宝荣. 土壤微生物残体对不同生态系统有机碳形成的贡献及机理[D]. 杨凌: 中国科学院教育部水土保持与生态环境研究中心, 2022. Wang B R. Features and mechanisms of the contribution of microbial necromass to soil organic carbon formation in different ecosystems[D]. Yangling: Research Center of Soil and Water Conservation and Ecological Environment, Chinese Academy of Sciences and Ministry of Education, 2022. |
| [64] |
贺美, 秦书琪, 冯雪徽, 等. 青藏高原多年冻土微生物残体碳的分布特征及其驱动因素[J]. 科学通报, 2024, 69(7): 925-938. He M, Qin S Q, Feng X H, et al. Spatial distributions and key drivers of microbial necromass carbon in permafrost deposits across the Tibetan Plateau[J]. Chinese Science Bulletin, 2024, 69(7): 925-938. |
| [65] | Vitousek P M, Porder S, Houlton B Z, et al. Terrestrial phosphorus limitation: mechanisms, implications, and nitrogen-phosphorus interactions[J]. Ecological Applications, 2010, 20(1): 5-15. DOI:10.1890/08-0127.1 |
| [66] |
赵博. 高寒湿地生物地貌演替对植物和微生物残体碳积累的影响[D]. 兰州: 兰州大学, 2023. Zhao B. Effects of biogeomorphic succession on plant and microbial necromass accumulation in alpine wetlands on the Tibetan Plateau[D]. Lanzhou: Lanzhou University, 2023. |
| [67] |
郁红艳, 曾光明, 黄国和, 等. 木质素降解真菌的筛选及产酶特性[J]. 应用与环境生物学报, 2004, 10(5): 639-642. Yu H Y, Zeng G M, Huang G H, et al. Screening of lignin-degrading fungi and their enzyme production[J]. Chinese Journal of Applied & Environmental Biology, 2004, 10(5): 639-642. |