 2026, Vol. 47


2. 国家土壤质量福安观测实验站,福安 355015;
3. 福建省农业科学院,福州 350003
2. China National Agricultural Experimental Station for Soil Quality, Fu'an 355015, China;
3. Fujian Academy of Agricultural Sciences, Fuzhou 350003, China
福建省是我国重点产茶区之一,2023年福建省茶园面积达22.75万hm2,茶叶产量45.05万t,其中乌龙茶和白茶产量位居全国第一,茶产业早已经成为带动福建省农村经济发展、增加农民收入、助推产业振兴、建设美丽乡村的传统优势产业. 有研究表明,茶树是多年生氮敏感经济作物,适宜的施氮量能够促进茶树生长和品质化学物质的合成[1,2],表现为较高的氨基酸含量和适宜的酚氨比[3],从而显著提高茶叶产量和产值. 当前,受到经济利益驱使和劳动力成本上升等诸多因素的影响,我国茶园氮肥大多以三元复合肥和尿素氮的形式输入(比例超过90%)[4],全国氮肥平均施用量444 kg·hm-2,有超过50%比例的茶园氮肥施用过多. 过量施用氮肥造成茶树氮肥利用率低(我国茶园氮肥的当季利用率约为30%)[5],其余的则通过地表径流、地下淋溶、氨挥发及温室气体(N2O、NO及N2)等多种途径损失[6,7],造成肥料浪费和茶叶品质下降[8],还增加了茶企和茶农生产成本. 此外,长期过量施用氮肥是导致茶园土壤酸化加剧和养分不均衡退化的核心原因之一[9],因而合理的施氮量是改善土壤肥力,促进茶叶稳产和品质提升的重要栽培措施.
氮肥管理是调控茶园生产力的关键措施,施氮最直接的影响是改变土壤微生物的分解底物(养分有效性)[10]以及微环境(氧分压和通气性等)[11],进而间接影响微生物数量、丰度、组成及相关酶活性[12],从而引起微生物群落结构和功能类群的变化. 有研究表明,适宜施氮量或短期施氮不会对土壤微生物群落产生显著影响[13,14],但是长期高氮肥施用对土壤微生物丰度和多样性、微生物群落结构及稳定性和微生物碳氮利用效率等产生负面影响[15,16],且随着施氮量和持续时间增加而加剧. 也有部分研究结果表明[17],施氮能够促进土壤微生物生长,提高土壤微生物多样性. 在滨海新围垦滩涂盐渍土(水稻-冬小麦轮作地)氮肥试验结果表明[18],施氮量均显著提高盐渍土总碳氮库容、微生物生物量碳氮、碳氮矿化速率和硝化潜势,土壤细菌群落丰度与多样性随施氮量增加而提高. Feng等[19]分析了中国10个20 a田间施肥试验结果,发现全国范围内土壤细菌多样性对施肥的响应取决于生态环境,在高降水和高土壤肥力地区的酸性土壤中,施用化肥导致的土壤酸化对土壤细菌多样性产生负面影响. 由此可见,氮肥对土壤微生物群落的影响受施氮量、施肥方式、生态系统类型、土地利用方式及气候条件等多种因素共同作用,酸性土壤中氮肥对微生物的负面影响可能更显著.
在茶园生态系统中,茶园施肥管理措施通过改变土壤理化性质直接影响土壤微生物数量和群落或影响茶树根系分泌物的反馈间接对土壤微生物数量和群落产生影响[20,21]. 田间试验结果表明(11 a)[22],长期施用氮肥改变了茶园土壤细菌群落特征,群落多样性降低,群落功能减弱,群落稳定性降低. 另外一项5 a的田间试验也证实[23],适宜施氮量(360 kg·hm-2)提高茶叶产量和品质,施氮并未明显改变茶园土壤微生物多样性,但显著改变了茶园土壤微生物群落结构,且微生物多样性对茶叶产量和品质有明显影响. 可见,氮肥在提高茶叶产量和品质方面发挥着无可替代的作用,对茶园土壤微生物群落结构及功能也产生了深刻的影响. 另外,由于茶园施氮量也受其茶树生长状态和生产季节的影响,土壤水热因子的季节性波动也是影响微生物群落多样性和组成的重要因素,因此土壤微生物群落的季节性动态也需要进一步研究. 然而,不同施氮量对茶园土壤细菌群落结构及功能的季节动态影响仍未明确,特别是关于群落构建更鲜有报道. 在此背景下,本文以茶园长期定位试验中不同施氮量处理的土壤样本为研究对象,采用高通量测序技术,测定春茶和秋茶期间土壤细菌群落结构,结合分子生态网络、群落组装及功能预测的研究方法,分析了不同施氮量条件下土壤微生物网络特征、功能多样性及群落构建的差异,综合分析土壤细菌和环境因子的互作关系,探讨了土壤细菌群落组成及多样性与茶叶生产力的关系,以期为确定茶园合理施氮量提供科学依据.
1 材料与方法 1.1 研究区概况长期试验地位于福建省农业科学院茶叶研究所试验基地(119°57'E,22°22'N),海拔约91 m,该区域属于中亚热带季风气候,冬季干冷,夏季温暖潮湿,年均气温19.3℃,年均降雨量1 646 mm. 田间试验在露天水泥池中进行(图 1),水泥池底部密封处理,可以确保养分物质不会在试验小区之间流动,从而减少田间试验误差. 水泥池面积为1.8 m2(内径长2 m,宽0.9m),水泥池高0.9 m,土深为0.8 m. 供试土壤为社口镇山地的砂质红壤,原始土壤pH值为4.85,ω(有机碳)为3.69 g·kg-1,ω(全氮)为0.30 g·kg-1,ω(碱解氮)为26.40 mg·kg-1,ω(有效磷)为4.81 mg·kg-1,ω(有效钾)为60.32 mg·kg-1,C/N为12.38. 水泥池种植茶树品种为福建省农业科学院茶叶研究所选育茶树良种“优4”,每小区种植5丛,丛距30 cm,茶树定植时间为2010年3月(移栽茶树长势一致的3 a生茶树).

|
(a)田间每个独立的小水泥池(空白处为其它试验处理),(b)田间航拍效果,(c)用水泥池隔离的小区,(d)每个小区的单独尺寸;N0、N1、N2和N3分别表示不施氮肥、低量氮肥、中量氮肥和高量氮肥小区,空白小区为其它处理 图 1 长期施氮田间试验设置 Fig. 1 Designation of long-term nitrogen application location field experiment in tea garden |
田间大型水泥池试验共设置4个处理,分别为:①不施氮肥N0(0 kg·hm-2);②低量氮肥N1(112.5 kg·hm-2);③中量氮肥N2(225 kg·hm-2);④高量氮肥N3(450 kg·hm-2),均以N计. 每个试验处理设置4次重复,完全随机排列(具体小区布置图见1),各试验小区施肥开始于2011年冬季基肥. 试验地施氮量、施氮时间、施氮方式、茶园管理措施等详细描述见文献[24],氮肥每年按照春季追肥(30%)、秋季追肥(30%)和冬季基肥(40%)分比例施入,氮肥品种为尿素;每个处理钾肥按照300 kg·hm-2(K2O)施入硫酸钾,施肥时期和比例与氮肥一致;每个处理磷肥按照150 kg·hm-2的P2O5作底肥,磷肥为过磷酸钙,冬季基肥期一次性施入. 施肥方式为表层撒施后覆土. 试验期间茶园除草、病虫害管理、修剪等农艺措施均按照当地常规模式进行.
于2020年4月17日(第10 a试验,茶叶春茶开采期)和10月8日(茶叶秋茶开采期)采集试验地土壤样品. 各小区采用五点法,分别采集两株茶树中间、茶树树冠滴水线附近的0~20 cm土层土壤样品,当日用冰盒运回实验室,充分混合均匀,去除根系、石块等杂物后,分为3份. 一部分过2 mm筛后,保存于-80℃超低温冰箱用于后续土壤微生物DNA提取及测序等基因测试;一部分2 mm筛后置于4℃保存用于土壤酶活性、硝态氮和铵态氮含量等测定;剩余部分自然风干,分别过2 mm和0.15 mm筛后测定土壤理化性质测定. 同步,人工采摘每个水泥池小区的鲜叶样品,称重计算鲜叶产量. 随机称取50~100 g鲜叶放入液氮保鲜,带回实验室后立即放入-80℃冰箱低温保存,以用于茶叶品质成分分析.
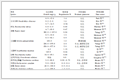
1.3 研究方法 1.3.1 测定指标和方法土壤理化性质参照《土壤农化分析》[25]测定:采用pH计测定土壤pH(水土比为1︰2.5),土壤有机质(SOM)采用重铬酸钾氧化-外加热法,土壤全氮(TN)采用凯氏定氮法,土壤碱解氮(AN)用碱解扩散法,土壤全磷(TP)采用氢氧化钠碱熔-钼锑抗比色法测定,土壤有效磷(AP)采用钼锑抗比色法,土壤全钾(TK)采用氢氧化钠熔融-火焰光度计法测定,土壤速效钾(AK)采用火焰分光光度计法. 土壤酶活性采用试剂盒法测定,包括脲酶(urease,UR)、硝酸还原酶(nitrate reductase,NIR)、土壤多酚氧化酶(polyphenol oxidase,PPO)、过氧化氢酶(catalase,CAT)、土壤蔗糖酶(invertase enzyme,INV)和酸性磷酸酶(acid phosphatas,ACP),操作步骤按照说明书进行,试验地各处理土壤理化性质见表 1.
|
表 1 研究区茶园土壤理化性质1) Table 1 Soil physicochemical properties in tea garden |
茶叶品质的测定:游离氨基酸(AA)总量采用茚三酮比色法,茶叶中茶多酚(TP)含量采用福林酚比色法,茶叶中咖啡碱(CF)和儿茶素组分采用高效液相色谱法(HPLC),具体步骤参考文献[26];酚氨比(TP/AA)是指茶多酚与游离氨基酸的比值,是衡量鲜叶品质的重要指标.
1.3.2 土壤细菌DNA提取、PCR扩增及测序采用土壤DNA提取试剂盒(E.Z.N.A.® Soil DNA Kit DNA,USA)提取土壤DNA,提取过程参照说明书进行. 使用1%的琼脂糖凝胶电泳检测抽提的基因组DNA的质量,使用NanoDrop2000(美国Thermo Scientific公司)检测DNA浓度和纯度. 细菌选用16S rRNA基因V3-V4可变区通用引物338F(5'-ACT CCTACGGGAGGCAGCAG-3')和下游引物806R(5'-G GACTACHVGGGTWTCTAAT-3')进行PCR扩增[27]. 使用2%琼脂糖凝胶回收PCR产物并纯化,测序工作委托上海美吉生物医药科技有限公司采用Illumina MiSeq PE300平台进行.
1.4 数据处理与统计分析使用Flash(Version 1.2.11)软件对双端原始测序序列进行质控后,采用UPARSE((Version 11)软件按照97%的序列相似度对质控拼接后的序列进行操作分类单元OTU(oerational taxonomic unit)聚类,利用RDP Classifier(Version 2.13)比对Silva 138基因数据库进行OTU物种分类学注释,并在不同物种分类水平下统计每个样本的群落组成. 采用Mothur软件(Version 1.30.2)计算Alpha多样性指标(包括Chao 1、Ace和Shannon指数),并采用one-way ANOVA(单因素方差分析)进行Alpha多样性的组间差异分析;使用基于Bray-Curtis距离算法的PCoA分析检验不同施氮量和季节样本间土壤细菌微生物群落结构的相似性,并结合PERMANOVA非参数检验分析样本组间细菌群落结构差异性. 土壤细菌生态功能预测采用FAPROTAX(1.2.1)软件进行分析,具体分析由美吉生物云平台(https://www.majorbio.com/)分析完成. 土壤细菌群落结构和生态功能与环境因子之间的相关性采用冗余分析(RDA),采用R语言vegan包进行分析和作图. 土壤细菌网络构建时合并了春季和秋季数据进行分析,挑选各处理平均相对丰度占比前200的OTUs进行共现性网络分析,OTU之间的相关性用Spearman相关系数(相关系数 > 0.8且P < 0.05)来构建网络,并采用Gephi软件(0.9.7)对物种信息、节点和边等数值进行可视化分析[28],同时计算鲁棒性(每个网络随机移除50%的节点)表征网络的稳定性[29]. 分别采用Sloan中性群落模型(neutral community model,NCM)[30]和标准化随机率(normalized stochasticity ratio,NST)[31]来定量评估细菌群落构建过程中的随机性.
2 结果与分析 2.1 长期施氮对茶园土壤细菌Alpha多样性的影响通过对不同处理的土壤样本细菌OTUs维恩图分析发现(图 2),春季土壤中N0、N1、N2和N3处理中的共有细菌OTU数目为2 340个,而独有的细菌OTU数量分别为490、285、159和246;在秋季土壤中,N0、N1、N2和N3处理中的共有细菌OTU数目为2 248个,而独有的细菌OTU数分别为763、212、188和154. 总体而言,长期施氮后茶园土壤细菌总OTU和独有OTU数目下降,尤其是高氮(N3)处理.

|
图 2 长期施氮处理土壤细菌OTU维恩图 Fig. 2 OTU Venn of soil bacteria under long-term nitrogen fertilization treatments |
从图 3中可以看出,土壤细菌Alpha多样性指数在不同施氮处理间存在显著差异. 在春季和秋季两个采样期,低氮处理(N1)细菌Ace和Chao1指数略高于N0处理,但差异不显著,中高氮处理(N2和N3)处理细菌Ace、Chao1和Shannon指数显著低于N0处理. 与N1处理相比,N2和N3处理显著降低了细菌Ace、Chao1和Shannon指数(P < 0.05);N3处理土壤细菌Sobs、Ace、Chao1和Shannon指数均显著低于N2处理. 双因素方差分析表明,施氮量对细菌Alpha多样性指数均有极显著影响(P < 0.01),季节变化对细菌Shannon指数有显著影响,施氮量和季节的交互作用对土壤细菌Alpha多样性指数没有显著影响. 总体而言,长期低氮(N1)处理提高了茶园土壤细菌Alpha多样性,中高氮处理则显著降低了土壤细菌Alpha多样性,季节变化仅仅影响了土壤细菌Shannon指数.

|
*表示P < 0.05,**表示P < 0.01,***表示P < 0.001,NS表示差异不显著,分别表示施氮量、季节及两者交互作用对土壤细菌Alpha多样性指数的影响,下同 图 3 长期施氮对茶园土壤细菌群落的Alpha多样性指数的影响 Fig. 3 Alpha diversity index of soil bacterial communities in under different nitrogen additions |
从32份茶园土壤样品中检测到的细菌可划分为37个门、119个纲、273个目、448个科、850个属和1 769个种. 如图 4所示,在门分类水平上,在春季和秋季两个采样时期中丰度含量相对较高(> 1%)的有放线菌门(Actinobacteriota)、变形菌门(Proteobacteria)、酸杆菌门(Acidobacteriota)、绿弯菌门(Chloroflexi)、厚壁菌门(Firmicutes)、浮霉菌门(Planctomycetota)、芽单胞菌门(Gemmatimonadota)、WPS-2、GAL15、疣微菌门(Verrucomicrobiota)和黏球菌门(Myxococcota),其中绿弯菌门、放线菌门、变形菌门和酸杆菌门是绝对优势菌门,占到了所有细菌总数的78.76%~83.77%. 双因素方差分析表明,施氮显著影响了茶园土壤放线菌门、酸杆菌门、厚壁菌门、黏球菌门、WPS-2、GAL15、疣微菌门和拟杆菌门(Bacteroidota)的相对丰度;与N0处理相比,N3处理均降低了两个季节酸杆菌门和黏球菌门的相对丰度,N2和N3显著增加了厚壁菌门的相对丰度,N0和N1之间差异不显著. 季节变化对细菌群落的放线菌门、变形菌门、酸杆菌门、厚壁菌门、浮霉菌门、疣微菌门和拟杆菌门的相对丰度有显著影响,但二者互作对土壤细菌群落组成没有显著影响.

|
分别表示施氮量、季节及两者交互作用对土壤细菌群落(门)相对丰度的影响 图 4 不同施氮处理下土壤细菌群落门水平上的相对丰度 Fig. 4 Relative abundance of soil bacterial phylum level under different nitrogen additions |
为研究长期施氮对茶园土壤微生物群落结构的影响,在OTU水平上进行PCoA分析. 从整体上看(图 5),两个采样季节茶园土壤细菌群落的样点在4个施氮量条件下显著分离,置换多元方差分析(PERMANOVA)也表明细菌群落组成在不同施氮量条件下存在显著差异(R2=0.570 6;P=0.001;R2=0.645 9;P=0.001);春茶采样期,沿PC1轴N0、N1、N2和N3有显著差异(P < 0.05),各处理PC2轴差异不显著;秋茶采样期,沿PC1和PC2轴N0、N1、N2和N3均有显著差异(P < 0.05). 同时,不同采样季节土壤细菌群落结构也存在显著差异,春季和秋季的茶园土壤细菌群落结构沿着PC2轴明显分离(R2=0.098 8,P=0.017). 综上所述,长期施氮和季节变化均显著改变茶园土壤细菌群落组成,但细菌群落结构对于施氮量更为敏感.

|
图 5 基于Bray-Curtis距离算法的土壤细菌群落PCoA分析 Fig. 5 Principal co-ordinates analysis based on Bray-Curtis distance method of soil bacterial community structure |
利用FAPROTAX数据库对土壤细菌生态功能进行注释,共得到58个功能类群,主要以:化能异养(以热酸菌属、类芽孢杆菌属、军团菌属及类诺卡氏菌属为主)、好氧化能异养(以热酸菌属、类芽孢杆菌属、军团菌属及类诺卡氏菌属为主)、纤维素分解(以热酸菌属、噬纤维菌属及生孢噬胞菌属为主)、固氮作用(以慢生根瘤菌属、g__Nostoc_PCC-7107及固氮螺菌属等为主)、尿素代谢功能(土壤红色杆菌属、玫瑰单胞菌属及马赛菌属)及硝酸盐还原作用(芽孢杆菌属、类芽孢杆菌属及贪铜菌属为主)等为主,其中化能异养(33.01%)、好氧化能异养(32.34%)和纤维素分解(11.76%)三者比例达到了77.11%. 选取细菌功能分组相对丰度的TOP15进行了方差分析(图 6),与N0处理相比,春茶采样期间N2或N3处理显著增加了化能异养、好氧化能异养、纤维素分解、尿素代谢功能、硝酸盐还原作用和铁呼吸的相对丰度,显著降低了固氮作用、动物寄生虫或共生体、捕食性/外寄生性细菌、细胞内寄生物、芳香族化合物降解作用、人致病菌肺炎及光合营养的相对丰度,人类病原体和叶绿体功能类群相对丰度则变化不显著. 在秋茶采样期间,施氮显著改变了与化能异养、好氧化能异养、纤维素分解、固氮作用、捕食性/外寄生性细菌、芳香族化合物降解作用、人致病菌肺炎、光合营养及无脊椎动物寄生虫(invertebrate_parasites)相关的OTUs的相对丰度,其它功能类群差异不显著.

|
图 6 不同施氮量条件下基于FAPROTAX预测的功能细菌相对丰度(相对丰度排名前15) Fig. 6 Relative abundance of functional bacteria based on FAPROTAX prediction among the nitrogen additions(TOP 15) |
基于Bray-Curtis距离对细菌群落生态功能结构进行PCoA排序,结果表明两个采样季节不同施氮量水平下细菌生态功能结构组成显著不同(图 6,P < 0.001). 结合PERMANOVA分析结果显示,土壤细菌群落功能对施氮量的敏感响应程度明显不同,春季和秋季采样期N0-N1的土壤细菌群落生态功能差异不显著(P=0.07;P=0.012),春季N2-N3处理的土壤细菌群落功能差异不显著(P=0.15),秋季N1-N2处理的土壤细菌群落功能差异不显著(P=0.27),两个季节低氮处理和高氮处理(N0-N2、N0-N3和N1-N3)之间差异显著(P < 0.05). 总体而言,长期施氮显著改变了基于FAPROTAX细菌功能类群,低氮处理(N0和N1)和高氮处理(N3)之间差异显著,尤其在春茶采样期间.
2.4 长期施氮对土壤细菌共现网络和拓扑属性的影响分别构建了不同施氮量条件下茶园土壤细菌群落的分类学(门水平)的网络图. 从图 7可以看出,茶园土壤细菌网络中的OTU节点主要来自于酸杆菌门、放线菌门、绿弯菌门、变形菌门、厚壁菌门、GAL15和芽单胞菌门. 施氮降低了细菌网络的模块化个数,N1和N2处理细菌网络都被分为7个主要的模块. 从细菌网络的拓扑结构来看(表 2),与N0处理相比,N1增加了细菌网络边数、平均度、平均聚类系数和网络密度,意味着提高了细菌网络的复杂性;与N0处理相比,N2和N3处理则显著降低了细菌网络边数、平均度和网络密度,表明中高氮处理降低了土壤细菌网络的复杂性. 同时,大多数细菌微生物之间均为正互相作用,正相关比例为72.29%~90.45%,这表明在施氮处理下的土壤中细菌微生物是以协同合作为主导,施氮降低了细菌网络的正相关比例,降幅为7.08%~21.06%. 进一步通过移除50%随机节点计算了细菌网络的鲁棒性发现,N1处理下的细菌网络鲁棒性有所提高,N2和N3处理则显著降低了细菌网络的鲁棒性. 这些结果表明,低氮处理增加了细菌网络的稳定性,而中高氮处理则降低了细菌网络的稳定性.

|
括号内数值表示共现性网络中主要节点中细菌门的比例 图 7 不同施氮条件下土壤细菌分类学(门)的共现性网络 Fig. 7 Co-occurrence networks of soil bacterial taxonomy(phylum) in different nitrogen additions |
|
|
表 2 茶园土壤细菌网络拓扑结构 Table 2 Soil bacterial network properties at different nitrogen additions |
2.5 长期施氮对茶园细菌群落构建的影响
土壤细菌群落组装由确定性过程和随机性过程两者驱动. 利用中性群落模型(NCM)分析发现,茶园土壤细菌群落构建主要受到随机过程驱动(所有样本:R2= 0.803). 与N0处理相比,N2和N3处理土壤细菌群落构建方面表现出更高的随机性(N0:R2 =0.762;N2:R2=0.774;N3:R2=0.795). 同时,N1处理细菌群落的迁移率(Nm=30 178)要明显高于N0处理,而N3处理细菌群落的迁移率(Nm=22 535)则显著低于N0处理,这表明高氮处理细菌群落的扩散限制更强. 基于归一化随机率(NST)分析发现(图 8),N0、N1、N2和N3处理下细菌群落的NST值分别为79.85%、81.33%、79.83%和62.12%,N3处理NST值显著低于N0处理,这说明高氮处理下细菌受确定性过程的影响增加.

|
连续的蓝色实线表示最佳拟合中性模型;蓝色虚线表示最佳拟合中性模型的95%置信区间;绿色圆点表示出现频率高于中性群落模型预测的OTU;黑色圆点表示出现频率在中性模型的95%置信区间内中性群落模型预测的OTU;红色圆点表示出现频率低于中性群落模型预测的OTU 图 8 不同施氮处理茶园土壤细菌群落的中性模型拟合和归一化随机率 Fig. 8 Fit of the neutral community model (NCM) and normalized stochasticity ratio (NST) of bacterial community assembly in different nitrogen additions |
土壤细菌群落多样性、细菌主要门与理化性质的相关性见图 9. 从中可以看出,土壤细菌Beta多样性与土壤SOM、TN、AN、NH4+-N、TP、UR、PPO和ACP之间呈显著正相关,与土壤AK和pH之间呈显著负相关;土壤细菌Shannon指数、Ace指数和Chao1指数与土壤SOM、TN、AN、NO3--N、NH4+-N、TP、UR、PPO和ACP之间呈显著负相关,与土壤AK和pH之间呈显著正相关;土壤AP、TK、CAT和INV与土壤细菌Alpha多样性指数之间相关性不显著. 在门分类水平下,放线菌门、厚壁菌门和WPS-2的相对丰度与TN、AN、NH4+-N、UR和ACP之间呈显著正相关,厚壁菌门和WPS-2的相对丰度与AK和pH之间呈显著负相关;酸杆菌门和黏球菌门的相对丰度与SOM、TN、AN、NO3--N、UR和ACP之间呈显著负相关,与AK之间呈显著正相关;变形菌门的相对丰度与NO3--N和CEC之间呈显著正相关,与NH4+-N、CAT和ACP之间呈显著负相关;浮霉菌门的相对丰度与NH4+-N、AP和ACP之间呈显著负相关;芽单胞菌门的相对丰度与AN和NO3--N之间呈显著负相关,与AK和pH之间呈显著正相关;GAL15相对丰度与NIR之间呈显著正相关,与AN和TP之间呈显著负相关.

|
图 9 土壤细菌群落结构与土壤理化性质之间的相关性热图 Fig. 9 Correlation heat map between soil bacterial community structure and soil physical and chemical properties |
在门水平上,利用冗余分析(RDA)方法研究了土壤细菌群落结构(门水平)及功能类群与环境因子的关系(图 10). 门水平下,前两个排序轴RDA1(57.32%)和RDA2(8.08%)总共解释了土壤细菌群落总变异的65.4%,其中NH4+-N(P=0.001)、ACP(P=0.001)、NO3--N(P=0.002)、PER(P=0.002)、AK(P=0.002)、TN(P=0.003)、AP(P=0.013)和pH(P=0.044)是解释群落差异的主要因素;对于细菌群落生态功能而言,前两个排序轴RDA1(75.14%)和RDA2(1.95%)总共解释了土壤细菌群落总变异的77.09%,其中NH4+-N(P=0.001)、AK(P=0.001)、TN(P=0.001)、AP(P=0.004)、ACP(P=0.004)、UR(P=0.005)和SOM(P=0.011)是解释细菌生态功能差异的主要因素.

|
图 10 土壤细菌群落结构组成和预测功能与土壤理化性质的RDA分析 Fig. 10 RDA analysis of structural composition, predicted function, and soil physicochemical properties of bacterial communities |
通过Pearson相关性分析,探讨茶叶产量、品质与茶园土壤细菌群落和生态功能类群之间的相关性(图 11). 从图 11可以看出,土壤细菌多样性指数与茶叶产量、游离氨基酸含量之间呈显著负相关,与茶多酚含量、酚氨比、表没食子儿茶素没食子酸酯和表儿茶素没食子酸酯之间呈显著正相关;放线菌门、厚壁菌门和WPS-2与茶叶产量和游离氨基酸含量之间呈显著正相关,与大多数儿茶素组分之间呈显著负相关;酸杆菌门、粘球菌门与茶叶产量和游离氨基酸含量之间呈显著负相关,与茶多酚含量、酚氨比和咖啡碱含量之间呈显著正相关;酸杆菌门和浮霉菌门与大多数儿茶素组分之间(表没食子儿茶素除外)呈显著正相关. 对于细菌生态功能而言,纤维素分解、需氧化能异养、铁呼吸、硝酸盐还原作用、化能异养和尿素代谢与茶叶产量和游离氨基酸含量之间呈显著正相关,与茶多酚含量、酚氨比及大多数儿茶素组分之间呈显著负相关;人类病原体和动物寄生虫或共生体与茶多酚含量、酚氨比及大多数儿茶素组分之间呈显著负相关;叶绿体与酚氨比及大多数儿茶素组分之间呈显著正相关.

|
Yield表示产量,AA表示游离氨基酸总量,P表示茶多酚,TP/AA表示酚氨比,CF表示咖啡碱,EGCG表示表没食子儿茶素没食子酸酯,ECG表示表儿茶素没食子酸酯,CG表示儿茶素没食子酸酯,EC表示表儿茶素,GC表示没食子儿茶素,EGC表示表没食子儿茶素,C表示儿茶素,TC表示总儿茶素 图 11 土壤细菌群落和生态功能类群与茶叶品质之间的相关性 Fig. 11 Correlation heat map between soil bacterial community structure, ecological function, and tea quality |
多项研究表明,农田长期施用氮肥导致土壤酸化和土壤质量下降[32],从而降低土壤细菌多样性并改变其群落组成[33,34],且高量氮肥对细菌的影响比低量化肥的影响更显著. 在本研究结果显示,低氮处理(N1)提高了土壤细菌Ace和Chao1指数,中高氮处理(N2和N3)处理则显著降低了土壤细菌Ace、Chao1和Shannon指数,这一结果在以前的研究中也已经得到证实[35]. Tang等[36]在浙江绍兴龙井茶园一项5 a的田间试验证实,施用高量氮肥显著降低了细菌多样性,施氮后土壤pH降低是影响细菌群落演替的重要因素. Wang等[33]研究也表明,在全球范围内施氮显著降低了土壤细菌多样性(-2.3%),土壤pH是调节土壤细菌多样性变化主要因素. 相较于中性土壤作物,茶树偏好酸性(pH 4.0~5.5)和耐铝环境,长期低pH和高铝离子环境下土壤细菌群落之间的资源竞争加剧,耐酸耐铝细菌会在茶树根际土壤富集[37,38]. 本研究中,中高氮处理下茶园土壤pH 4.66~4.89,显著降低了0.34~0.48个单位,过低的pH会刺激了嗜酸和嗜氮微生物的生长,且生物间的竞争性导致其它微生物生长变慢或消失死亡,从而导致了微生物多样性降低[39]. 此外,长期施氮造成土壤养分和酶活性变化也会影响土壤细菌多样性. 本研究中,土壤细菌群落多样性与大多数土壤养分指标(SOM、TN、AN和NO3--N等)和酶活性(脲酶、多酚氧化酶和酸性磷酸酶)呈显著负相关(图 9),与土壤AK、pH和NIR之间呈显著正相关,其中pH与细菌群落多样性相关性最强,其次是TN、AN和SOM. 长期施氮处理明显提高了茶园土壤UR、TN和无机氮含量,低氮处理会促进土壤微生物生长的正面效应,可能抵消土壤酸化带来的危害,从而提高微生物多样性;在连续10 a的高氮处理情况下,土壤养分增加对微生物生物量的刺激作用减弱,养分富集引起的土壤酸化可能沿着土壤微食物网产生级联影响[40],进而影响土壤微生物生态系统稳定性.
长期施氮还显著影响了土壤细菌群落的组成,明显提高了(尤其是N3处理)土壤变形菌门和厚壁菌门的相对丰度,并降低酸杆菌门和黏球菌门的相对丰度,这意味着氮肥施用会促进土壤中富养型微生物的生长,而抑制贫养型微生物的生长. 以往的研究结果表明,氮肥施用导致土壤氮有效性的增加,变形菌门和厚壁菌门这类富养型微生物类群能够在高肥力环境中较好地繁殖[41],而贫养型微生物(酸杆菌门和浮霉菌门)的生长就会受到抑制[42]. 相关分析结果也显示,变形菌门、厚壁菌门和WPS-2的相对丰度与TN、AN、NH4+-N、UR和ACP之间呈显著正相关. 此外,众多研究表明低pH的土壤环境更适合酸杆菌门的生长[43],但对于pH强敏感的酸杆菌门的相对丰度却显著降低,揭示“养分输入因子”对此类菌群的决定作用大于“土壤酸化因子”,酸杆菌门的相对丰度与SOM、TN、AN、NH4+-N和UR之间呈显著负相关也证实这一结论[44]. 同时,细菌群落组分PCoA分析表明,土壤细菌群落随着长期施氮水平的不同而彼此分离,这说明连续氮肥施用成功塑造了茶园土壤细菌群落结构(图 5). 结合冗余分析结果显示,土壤NH4+-N、ACP、NO3--N、PER、AK、TN、AP和pH是驱动长期施氮条件下茶园土壤细菌群落结构的主要因素.
3.2 长期施氮对茶园土壤细菌功能、共线性网络和群落构建的影响长期施氮使得土壤细菌群落结构发生变化的同时,也可能使土壤细菌功能类群产生显著影响. 与N0处理相比,N2和N3处理显著增加了化能异养、好氧化能异养、纤维素分解、尿素代谢功能、硝酸盐还原作用和铁呼吸的相对丰度(P < 0.05),显著降低了固氮作用、动物寄生虫或共生体、捕食性/外寄生性细菌、细胞内寄生物、芳香族化合物降解作用、人致病菌肺炎及光合营养的相对丰度(P < 0.05). 化能异养类、发酵类和纤维素分解类功能与碳循环相关,氮肥施用显著增加了茶树地上部生物量,提供了大量的碳流入,促进了土壤细菌对碳的吸收和利用,这暗示氮肥施用增加了土壤细菌降解有机质和排放温室气体(CO2和CH4)的能力[45,46]. 在氮代谢方面,N3处理显著提高了硝酸盐还原作用的相对丰度,N2和N3处理显著降低了固氮作用、硝酸呼吸、氮呼吸作用、亚硝酸盐呼吸、亚硝酸盐反硝化、氧化亚氮反硝化、硝酸盐反硝化、反硝化和硝化作用的相对丰度,这与先前的研究结果基本一致[47,48]. PCoA分析结果也显示,长期不同施氮量显著改变了两个季节中茶园土壤细菌生态功能类群(图 6),低氮处理(N0和N1)和高氮处理(N3)之间差异显著,尤其春茶采样期间,这表明长期施氮重新构建了全新的茶园土壤细菌群落的生态功能.
在土壤生态系统中,土壤微生物物种间同时以多种方式发生相互作用而形成的网状关系[49]. 与以往的研究结果相似[50,51],低氮处理(N1)增加了细菌网络边数、平均度、平均聚类系数和网络密度(表 2),施用低量氮肥茶园土壤细菌之间的相互作用更为强烈,相互作用较多的微生物类群可能对土壤生物肥力产生积极的影响[52];随着施氮量增加,中高氮处理(N2和N3)则降低了细菌网络边数、平均度和网络密度,细菌网络的鲁棒性明显下降,表明中高氮处理降低了土壤细菌网络的复杂性和稳定性,这种现象可能归因于长期施氮处理下细菌物种多样性的降低. 同时,施氮降低了土壤细菌网络的正相关比例(降幅为7.08%~21.06%),表明施氮带来养分和凋落物输入的增加可能缓解了微生物能量和养分限制,进而导致不同类群间的捕食、互惠、竞争等互作关系加强[53]. 从细菌群落构建的结果来看,中性群落模型分别可以解释N0、N1、N2和N3处理茶园土壤细菌群落76.2%、73.8%、77.4%和79.5%的变化,这说明随机性过程主导了细菌群落构建,类似的结果在Tang的研究中也有报道[36]. 同时,N1处理细菌群落的迁移率要明显高于N0处理,而N3处理细菌群落的迁移率则显著低于N0处理,这表明高氮处理细菌群落的扩散限制更强. 基于归一化随机率分析发现,N0、N1、N2和N3处理下细菌群落的NST值分别为79.85%、81.33%、79.83%和62.12%,N3处理NST值显著低于N0处理,这说明高氮处理下细菌受确定性过程的影响增加. 长期施氮导致茶园土壤氮的可用性增加和土壤pH值显著降低,可能对土壤细菌群落施加了强大的环境过滤,因而导致高氮处理下细菌群落组装的确定性增加[54]. 另外,Xun等[55]研究表明高多样性细菌群落中随机性过程占主导地位,而低多样性群落中确定性过程占主导地位,这与本研究结论一致.
3.3 土壤细菌群落对茶叶产量和品质的影响氮肥施用是茶农提升茶叶产量和品质的重要耕作措施,合理的施氮量对维持土壤微生物功能群落的稳定、改善土壤肥力、提高产量和品质至关重要[35,56]. 本研究中,茶叶产量、游离氨基酸含量与放线菌门、厚壁菌门和WPS-2之间呈显著正相关,与酸杆菌门和黏球菌门之间呈显著负相关,这暗示放线菌门、厚壁菌门和WPS-2的增加有助于提高茶叶产量和游离氨基酸含量. 同时,放线菌门、厚壁菌门和WPS-2与大多数儿茶素组分之间呈显著负相关,酸杆菌门、黏球菌门与茶多酚含量、酚氨比和咖啡碱含量之间呈显著正相关,这与Wang等[57]对核桃茶间作茶园的研究结果相似. 氮肥施用导致茶园土壤氮素含量及有效性增加,选择性富集了放线菌门和厚壁菌门这类富营养型细菌群落,而该类细菌在促进有机物和纤维素的降解方面发挥着重要作用[58,59],因而可能通过增强对茶树凋落物降解能力来促进茶树生长. 同时,增施氮肥会促进植物根系分泌物中糖、糖醇和酚类物质的积累,这类代谢物通过化学信号招募更多氮代谢相关微生物,从而促进茶树根系合成更多的游离氨基酸[60]. 另外,特定微生物类群(鞘氨醇单胞菌属、假单胞菌属、甲基杆菌属及芽孢杆菌属等)还可以通过代谢互作过程对茶多酚进行了氧化、缩合和降解等反应[61],改变了儿茶素组成和含量,从而影响茶叶的品质和风味. 对于细菌生态功能而言,纤维素分解、好氧化能异养、铁呼吸、硝酸盐还原作用、化能异养和尿素代谢与茶叶产量和游离氨基酸含量之间呈显著正相关,与茶多酚含量、酚氨比及大多数儿茶素组分之间呈显著负相关,这也进一步说明施氮通过增强细菌中有机物分解与利用、氮素转化等生态过程来促进游离氨基酸的形成,并降低茶叶酚氨比. 尽管土壤微生物群落与茶树的代谢途径紧密相关,但是茶树根际和叶际的微生物组可能对于茶叶品质的形成更为重要,今后有必要重点从特异性(高茶氨酸、低咖啡碱等)茶树品种根际和叶际中挖掘出优异微生物类群,进一步通过合成菌群设计来验证其田间效果,从而开发出更高效、适用于茶园可持续发展的微生物产品.
4 结论田间水泥池茶园,连续10 a施氮显著改变了土壤细菌多样性和群落结构,两个采样季细菌多样性均随着施氮量增加呈现先增高后降低的趋势,中高氮处理显著降低了细菌群落多样性. 长期施氮会提高土壤变形菌门和厚壁菌门的相对丰度,并降低酸杆菌门和黏球菌门的相对丰度,铵态氮、酸性磷酸酶和硝态氮是影响细菌群落差异的最主要因素. FAPROTAX功能预测表明,长期施氮显著改变了两个季节茶园土壤细菌的生态功能,中高氮处理显著降低了参与氮素循环中功能类群的相对丰度,其中铵态氮、有效钾和全氮是解释细菌生态功能差异的最主要因素. 低量施氮增加了土壤细菌网络的稳定性,中高氮处理都降低了细菌网络的稳定性. 随机性过程主导了细菌群落构建,高氮处理增强了确定性过程在群落组装中的作用. 相关性分析表明,放线菌门、厚壁菌门和WPS-2与茶叶产量和大多数茶叶品质指标密切相关.
| [1] | Dong F, Hu J H, Shi Y Z, et al. Effects of nitrogen supply on flavonol glycoside biosynthesis and accumulation in tea leaves (Camellia sinensis)[J]. Plant Physiology and Biochemistry, 2019, 138: 48-57. DOI:10.1016/j.plaphy.2019.02.017 |
| [2] | Zhang W J, Ni K, Long L Z, et al. Nitrogen transport and assimilation in tea plant (Camellia sinensis): a review[J]. Frontiers in Plant Science, 2023, 14. DOI:10.3389/fpls.2023.1249202 |
| [3] |
刘美雅, 汤丹丹, 矫子昕, 等. 适宜氮肥施用量显著提升夏季绿茶品质[J]. 植物营养与肥料学报, 2021, 27(8): 1407-1419. Liu M Y, Tang D D, Jiao Z X, et al. Suitable nitrogen fertilization rate effectively improve the quality of summer green tea[J]. Journal of Plant Nutrition and Fertilizers, 2021, 27(8): 1407-1419. |
| [4] | Wang Z T, Geng Y B, Liang T. Optimization of reduced chemical fertilizer use in tea gardens based on the assessment of related environmental and economic benefits[J]. Science of the Total Environment, 2020, 713. DOI:10.1016/j.scitotenv.2019.136439 |
| [5] |
韩文炎, 马立锋, 石元值, 等. 茶树施用控释氮肥的产量和品质效应[J]. 土壤通报, 2007, 38(6): 1145-1149. Han W Y, Ma L F, Shi Y Z, et al. Effects of slow releasing urea on yield and quality of tea[J]. Chinese Journal of Soil Science, 2007, 38(6): 1145-1149. |
| [6] | Wu Y Z, Li Y, Fu X Q, et al. Effect of controlled-release fertilizer on N2O emissions and tea yield from a tea field in subtropical central China[J]. Environmental Science and Pollution Research, 2018, 25(25): 25580-25590. DOI:10.1007/s11356-018-2646-2 |
| [7] |
张珂彬, 刘新亮, 康曼, 等. 间种高粱及施用大颗粒尿素对茶园N2O排放的影响[J]. 环境科学, 2020, 41(5): 2434-2444. Zhang K B, Liu X L, Kang M, et al. N2O emissions from tea plantations with sorghum intercropping and application of big urea pills[J]. Environmental Science, 2020, 41(5): 2434-2444. DOI:10.13227/j.hjkx.201911090 |
| [8] |
苏有健, 廖万有, 丁勇, 等. 不同氮营养水平对茶叶产量和品质的影响[J]. 植物营养与肥料学报, 2011, 17(6): 1430-1436. Su Y J, Liao W Y, Ding Y, et al. Effects of nitrogen fertilization on yield and quality of tea[J]. Journal of Plant Nutrition and Fertilizers, 2011, 17(6): 1430-1436. |
| [9] | Wang D, Liu B J, Li F, et al. Status and influential factors of soil nutrients and acidification in Chinese tea plantations: a meta-analysis[J]. Soil, 2025, 11(1): 175-191. DOI:10.5194/soil-11-175-2025 |
| [10] |
张薇, 王润泽, 李彤彤, 等. 黄土区农田土壤细菌和真菌群落对长期施氮的响应特征[J]. 植物营养与肥料学报, 2024, 30(2): 232-241. Zhang W, Wang R Z, Li T T, et al. Responses of bacterial and fungal community to long-term nitrogen application in Loess Plateau[J]. Journal of Plant Nutrition and Fertilizers, 2024, 30(2): 232-241. |
| [11] | Ren N, Wang Y, Ye Y L, et al. Effects of continuous nitrogen fertilizer application on the diversity and composition of rhizosphere soil bacteria[J]. Frontiers in Microbiology, 2020, 11. DOI:10.3389/fmicb.2020.01948 |
| [12] | Ullah S, Raza M M, Abbas T, et al. Responses of soil microbial communities and enzyme activities under nitrogen addition in fluvo-aquic and black soil of North China[J]. Frontiers in Microbiology, 2023, 14. DOI:10.3389/fmicb.2023.1249471 |
| [13] | Leff J W, Jones S E, Prober S M, et al. Consistent responses of soil microbial communities to elevated nutrient inputs in grasslands across the globe[J]. Proceedings of the National Academy of Sciences of the United States of America, 2015, 112(35): 10967-10972. |
| [14] | Li J, Li Z A, Wang F M, et al. Effects of nitrogen and phosphorus addition on soil microbial community in a secondary tropical forest of China[J]. Biology and Fertility of Soils, 2015, 51(2): 207-215. DOI:10.1007/s00374-014-0964-1 |
| [15] | Wang Z, Tao T T, Wang H, et al. Forms of nitrogen inputs regulate the intensity of soil acidification[J]. Global Change Biology, 2023, 29(14): 4044-4055. DOI:10.1111/gcb.16746 |
| [16] | Dai Z M, Su W Q, Chen H H, et al. Long-term nitrogen fertilization decreases bacterial diversity and favors the growth of Actinobacteria and Proteobacteria in agro-ecosystems across the globe[J]. Global Change Biology, 2018, 24(8): 3452-3461. DOI:10.1111/gcb.14163 |
| [17] | Niu Y Y, Duan Y L, Li Y Q, et al. Soil microbial community responses to short-term nitrogen addition in China's Horqin Sandy Land[J]. PLoS One, 2021, 16(5). DOI:10.1371/journal.pone.0242643 |
| [18] | Yao R J, Yang J S, Wang X P, et al. Response of soil characteristics and bacterial communities to nitrogen fertilization gradients in a coastal salt-affected agroecosystem[J]. Land Degradation & Development, 2021, 32(1): 338-353. |
| [19] | Feng Y Z, Delgado-Baquerizo M, Zhu Y G, et al. Responses of soil bacterial diversity to fertilization are driven by local environmental context across China[J]. Engineering, 2022, 12: 164-170. DOI:10.1016/j.eng.2021.09.012 |
| [20] | Jiang Y H, Lin X Q, Wang H B, et al. Evaluation of fertilization on microbial assembly, metabolites of root exudates and rhizosphere soil in tea plant[J]. Scientia Horticulturae, 2024, 338. DOI:10.1016/j.scienta.2024.113812 |
| [21] | Wang B, Wang S, Li G Y, et al. Reducing nitrogen fertilizer usage coupled with organic substitution improves soil quality and boosts tea yield and quality in tea plantations[J]. Journal of the Science of Food and Agriculture, 2025, 105(2): 1228-1238. DOI:10.1002/jsfa.13913 |
| [22] | Ma L F, Yang X D, Shi Y Z, et al. Response of tea yield, quality and soil bacterial characteristics to long-term nitrogen fertilization in an eleven-year field experiment[J]. Applied Soil Ecology, 2021, 166. DOI:10.1016/j.apsoil.2021.103976 |
| [23] | Yang X D, Ni K, Shi Y Z, et al. Heavy nitrogen application increases soil nitrification through ammonia-oxidizing bacteria rather than archaea in acidic tea (Camellia sinensis L.) plantation soil[J]. Science of the Total Environment, 2020, 717. DOI:10.1016/j.scitotenv.2020.137248 |
| [24] | Chen Y Z, Wang F, Wu Z D, et al. Effects of long-term nitrogen fertilization on the formation of metabolites related to tea Quality in subtropical China[J]. Metabolites, 2021, 11(3). DOI:10.3390/metabo11030146 |
| [25] | 鲁如坤. 土壤农业化学分析方法[M]. 北京: 中国农业科技出版社, 2000. |
| [26] | Zeng L T, Watanabe N, Yang Z Y. Understanding the biosyntheses and stress response mechanisms of aroma compounds in tea (Camellia sinensis) to safely and effectively improve tea aroma[J]. Critical Reviews in Food Science and Nutrition, 2019, 59(14): 2321-2334. DOI:10.1080/10408398.2018.1506907 |
| [27] | Mori H, Maruyama F, Kato H, et al. Design and experimental application of a novel non-degenerate universal primer set that amplifies prokaryotic 16S rRNA genes with a low possibility to amplify eukaryotic rRNA genes[J]. DNA Research, 2014, 21(2): 217-227. DOI:10.1093/dnares/dst052 |
| [28] | Deng Y, Jiang Y H, Yang Y F, et al. Molecular ecological network analyses[J]. BMC Bioinformatics, 2012, 13: do-113.. |
| [29] | Yuan M M, Guo X, Wu L W, et al. Climate warming enhances microbial network complexity and stability[J]. Nature Climate Change, 2021, 11(4): 343-348. DOI:10.1038/s41558-021-00989-9 |
| [30] | Sloan W T, Lunn M, Woodcock S, et al. Quantifying the roles of immigration and chance in shaping prokaryote community structure[J]. Environmental Microbiology, 2006, 8(4): 732-740. DOI:10.1111/j.1462-2920.2005.00956.x |
| [31] | Ning D L, Deng Y, Tiedje J M, et al. A general framework for quantitatively assessing ecological stochasticity[J]. Proceedings of the National Academy of Sciences of the United States of America, 2019, 116(34): 16892-16898. |
| [32] | Zhang Y J, Ye C, Su Y W, et al. Soil acidification caused by excessive application of nitrogen fertilizer aggravates soil-borne diseases: evidence from literature review and field trials[J]. Agriculture, 2022, 340. DOI:10.1016/j.agee.2022.108176 |
| [33] | Wang X D, Feng J G, Ao G K L, et al. Globally nitrogen addition alters soil microbial community structure, but has minor effects on soil microbial diversity and richness[J]. Soil Biology and Biochemistry, 2023, 179. DOI:10.1016/j.soilbio.2023.108982 |
| [34] | Chen C, Li S L, Chen Q L, et al. Fertilization regulates global thresholds in soil bacteria[J]. Global Change Biology, 2024, 30(8). DOI:10.1111/gcb.17466 |
| [35] | Liu Y, Tan X P, Fu S L, et al. Canopy and understory nitrogen addition alters organic soil bacterial communities but not fungal communities in a temperate forest[J]. Frontiers in Microbiology, 2022, 13. DOI:10.3389/fmicb.2022.888121 |
| [36] | Tang S, Zhou J J, Pan W K, et al. Impact of N application rate on tea (Camellia sinensis) growth and soil bacterial and fungi communities[J]. Plant and Soil, 2022, 475(1-2): 343-359. DOI:10.1007/s11104-022-05372-x |
| [37] | Yang Y R, Kim J, Chung J O, et al. Variations in the composition of tea leaves and soil microbial community[J]. Biology and Fertility of Soils, 2022, 58(2): 167-179. DOI:10.1007/s00374-021-01615-8 |
| [38] | Jiang X L, Li W W, Han M L, et al. Aluminum-tolerant, growth-promoting endophytic bacteria as contributors in promoting tea plant growth and alleviating aluminum stress[J]. Tree Physiology, 2022, 42(5): 1043-1058. DOI:10.1093/treephys/tpab159 |
| [39] | Zhang X M, Liu W, Zhang G M, et al. Mechanisms of soil acidification reducing bacterial diversity[J]. Soil Biology and Biochemistry, 2015, 81: 275-281. DOI:10.1016/j.soilbio.2014.11.004 |
| [40] | Hu Z K, Delgado-Baquerizo M, Fanin N, et al. Nutrient-induced acidification modulates soil biodiversity-function relationships[J]. Nature Communications, 2024, 15(1). DOI:10.1038/s41467-024-47323-3 |
| [41] | Wang J Q, Shi X Z, Zheng C Y, et al. Different responses of soil bacterial and fungal communities to nitrogen deposition in a subtropical forest[J]. Science of the Total Environment, 2021, 755. DOI:10.1016/j.scitotenv.2020.142449 |
| [42] | Fierer N, Lauber C L, Ramirez K S, et al. Comparative metagenomic, phylogenetic and physiological analyses of soil microbial communities across nitrogen gradients[J]. The ISME Journal, 2012, 6(5): 1007-1017. DOI:10.1038/ismej.2011.159 |
| [43] | Jiao S, Chu H Y, Zhang B G, et al. Linking soil fungi to bacterial community assembly in arid ecosystems[J]. iMeta, 2022, 1(1). DOI:10.1002/imt2.2 |
| [44] | Zhou Z H, Zheng M H, Xia J Y, et al. Nitrogen addition promotes soil microbial beta diversity and the stochastic assembly[J]. Science of the Total Environment, 2022, 806. DOI:10.1016/j.scitotenv.2021.150569 |
| [45] | Yang X D, Ni K, Shi Y Z, et al. Metagenomics reveals N-induced changes in carbon-degrading genes and microbial communities of tea (Camellia sinensis L.) plantation soil under long-term fertilization[J]. Science of the Total Environment, 2023, 856. DOI:10.1016/j.scitotenv.2022.159231 |
| [46] |
涂昊泽, 林杉, 王军, 等. 秸秆添加对长期施肥旱地红壤N2O和CO2排放的影响[J]. 环境科学, 2024, 45(6): 3716-3724. Tu H Z, Lin S, Wang J, et al. Effects of straw addition on N2O and CO2 emissions from red soil subjected to different long-term fertilization[J]. Environmental Science, 2024, 45(6): 3716-3724. DOI:10.13227/j.hjkx.202307130 |
| [47] | Hu Y, Chen M, Yang Z L, et al. Soil microbial community response to nitrogen application on a swamp meadow in the arid region of central Asia[J]. Frontiers in Microbiology, 2022, 12. DOI:10.3389/fmicb.2021.797306 |
| [48] | Sun R B, Wang F H, Hu C S, et al. Metagenomics reveals taxon-specific responses of the nitrogen-cycling microbial community to long-term nitrogen fertilization[J]. Soil Biology and Biochemistry, 2021, 156. DOI:10.1016/j.soilbio.2021.108214 |
| [49] | Fuhrman J A. Microbial community structure and its functional implications[J]. Nature, 2009, 459(7244): 193-199. DOI:10.1038/nature08058 |
| [50] | Wang J, Liao L R, Ye Z C, et al. Different bacterial co-occurrence patterns and community assembly between rhizosphere and bulk soils under N addition in the plant-soil system[J]. Plant and Soil, 2022, 471(1-2): 697-713. DOI:10.1007/s11104-021-05214-2 |
| [51] | Ling N, Zhu C, Xue C, et al. Insight into how organic amendments can shape the soil microbiome in long-term field experiments as revealed by network analysis[J]. Soil Biology and Biochemistry, 2016, 99: 137-149. DOI:10.1016/j.soilbio.2016.05.005 |
| [52] | Liu Y, Yang Y H, Deng Y, et al. Long-term ammonium nitrate addition strengthens soil microbial cross-trophic interactions in a Tibetan alpine steppe[J]. Ecology, 2025, 106(3). DOI:10.1002/ecy.70057 |
| [53] | Huang R L, McGrath S P, Hirsch P R, et al. Plant-microbe networks in soil are weakened by century-long use of inorganic fertilizers[J]. Microbial Biotechnology, 2019, 12(6): 1464-1475. DOI:10.1111/1751-7915.13487 |
| [54] | Liu W X, Liu L L, Yang X, et al. Long-term nitrogen input alters plant and soil bacterial, but not fungal beta diversity in a semiarid grassland[J]. Global Change Biology, 2021, 27(16): 3939-3950. DOI:10.1111/gcb.15681 |
| [55] | Xun W B, Li W, Xiong W, et al. Diversity-triggered deterministic bacterial assembly constrains community functions[J]. Nature Communications, 2019, 10(1). DOI:10.1038/s41467-019-11787-5 |
| [56] | Yin R X, Li L L, Li X, et al. Positive effects of nitrogen fertilization on the flavor ingredients of tea (Wuniuzao), soil physicochemical properties, and microbial communities[J]. Environmental Technology & Innovation, 2025, 37. DOI:10.1016/j.eti.2024.103911 |
| [57] | Wang H Q, Yuan W X, Huang W, et al. Walnut-tea intercropping model: variations in secondary metabolites and microbial interactions in tea under metabolomics perspective[J]. Industrial Crops and Products, 2025, 227. DOI:10.1016/j.indcrop.2025.120774 |
| [58] |
周斯豪, 王美琦, 宋瑶, 等. 长期秸秆还田对下茬还田秸秆的降解及土壤微生物群落的影响[J]. 环境科学, 2025, 46(1): 532-542. Zhou S H, Wang M Q, Song Y, et al. Legacy effects of long-term straw returning on straw degradation and microbial communities of the aftercrop[J]. Environmental Science, 2025, 46(1): 532-542. DOI:10.13227/j.hjkx.202312205 |
| [59] | Liu J J, Sui Y Y, Yu Z H, et al. Soil carbon content drives the biogeographical distribution of fungal communities in the black soil zone of northeast China[J]. Soil Biology and Biochemistry, 2015, 83: 29-39. DOI:10.1016/j.soilbio.2015.01.009 |
| [60] | Xin W, Zhang J M, Yu Y D, et al. Root microbiota of tea plants regulate nitrogen homeostasis and theanine synthesis to influence tea quality[J]. Current Biology, 2024, 34(4): 868-880.e6. DOI:10.1016/j.cub.2024.01.044 |
| [61] | Bharadwaj P, Devi C J, Thakur D. Unlocking rhizosphere dynamics: exploring mechanisms of plant-microbe interactions for enhanced tea (Camellia sinensis (L.) O. Kuntze) productivity[J]. Current Microbiology, 2025, 82(6). DOI:10.1007/s00284-025-04235-9 |