 2026, Vol. 47


紫色土在我国西南地区分布广泛,是四川盆地最重要的农业土壤资源,对该区域农业生产和生态环境具有重要影响[1]. 已有研究表明,1988~2016年间西南地区紫色土pH呈现显著下降趋势,较初始监测阶段降低了0.24个单位[2],1981~2012年间,重庆紫色土区土壤显著酸化,平均pH值下降了0.30个单位[3]. 土壤酸化会加速土壤养分流失,作物根系生长不良,导致重金属活性增强、微生物多样性和功能性减弱、土传病害严重,致使作物减产,严重制约农业可持续发展[4]. 生物炭作为一种环保的土壤改良剂,具有高度的稳定性和丰富的孔隙结构,能够改善土壤理化性质,增加土壤保水保肥能力,同时还可为微生物提供栖息场所和碳源,对土壤微生物群落产生重要影响[5~7]. 因此,研究生物炭对不同母质发育的酸性紫色土的酸化指标及微生物群落结构的影响对于优化酸性紫色土管理措施和提高土壤质量具有重要意义.
生物炭因其稳定的多孔结构和丰富的表面官能团,能够对土壤pH和盐基离子交换量等方面的理化特性产生作用. 陈斐杰等[8]研究表明,生物炭中的碳酸盐和氢氧化物可以与土壤中的H+发生中和反应,释放出K+、Na+、Ca2+和Mg2+等盐基阳离子,从而降低土壤中的交换性酸度. 陈灿等[9]研究还发现,生物炭与土壤长时间共育后,其表面会生成更多的含氧官能团,从而提高其对NH4+-N的吸附能力. 而生物炭对土壤理化性质产生的变化又会对微生物群落结构造成影响. Zheng等[10]研究表明,生物炭的施加会改变土壤理化环境条件,进而对微生物生境造成影响,促使微生物群落出现变化. 此外,施加生物炭还能为微生物生长提供适宜的环境,增强土壤微生物活性,提升土壤微生物丰度. Bamminger等[11]运用磷脂脂肪酸方法,研究在温带农田土壤添加2%生物炭对土壤微生物丰度的影响,结果表明生物炭能够使土壤中微生物总生物量增多,增加土壤微生物丰度. Luo等[12]研究发现,不同热解温度制备的生物炭对酸性土壤中微生物的影响存在差异,总体上细菌和真菌的数量均有所增加.
土壤母质作为土壤形成的物质基础,不仅直接影响土壤的理化特性,还对土壤微生物的群落结构与活性产生重要作用. 肖银屏[13]研究南方柑橘园3种母质土壤(红砂岩、花岗岩和第四纪红土)发现土壤母质会影响土壤理化性质从而改变土壤自养微生物群落结构和固碳能力. 付瑞桐等[14]研究发现石灰岩发育的土壤中微生物生物量碳和微生物生长速率较高,而碎屑岩发育的土壤中微生物生物量较低. Li等[15]以玄武岩、花岗岩、变质岩和海相沉积物这4种不同母质的土壤为研究对象,发现母质可能通过土壤性质影响细菌群落组成过程、多样性及土壤酶相关功能. 以上研究均表明,母质通过调控土壤性质影响微生物群落与功能.
纵观国内外已有的研究,目前生物炭主要集中在对区域土壤改良效果和耕地质量提升[16,17]、环境效应[18,19]、微生物群落[20]、施用量[21,22]以及改性生物炭的应用[23,24]等方面. 然而,现有研究多聚焦同一类型的土壤,而对不同地质时期形成的不同母质发育而来的酸性紫色土添加生物炭对微生物群落结构的影响程度以及微生物群落共现网络关系还不是十分清楚. 因此,本文选取4种母质发育的酸性紫色土作为研究对象,通过添加等量生物炭的63d室内培养,分析生物炭施用对不同母质发育的不同酸性紫色土铵态氮和硝态氮含量、交换性酸及盐基离子含量变化和微生物群落组成、多样性等方面的影响,以期为生物炭在不同母质发育的酸性紫色土改良中的应用提供科学依据.
1 材料与方法 1.1 供试材料供试土壤为4种不同母质发育的紫色土,分别为:①沙溪庙组母质(J2s)发育的酸紫壤土,采自重庆市江津区永兴镇黄庄农业科技示范园区(29°04′08″N,106°11′19″E);②夹关组母质(K2j)发育的酸紫砂土,采自重庆市江津区四面山镇二台村(28°39′27″N,106°25′27″E);③蓬莱镇组母质(J3p)发育的酸紫砂泥土,采自重庆市江津区四屏镇双凤村(28°43′58″N,106°24′54″E);④遂宁组母质(J3s)发育的酸紫泥土,采自重庆市铜梁区平滩镇青杠村(29°50′25″N,105°52′02″E),4种土壤均在9月采样,前茬作物均为玉米. 各采样点均采用“S”型五点法采集0~20 cm耕层土壤,混合后按“四分法”保留8 kg土样. 带回实验室一份经自然风干后,剔除细根、石砾等杂质,依次过2 mm筛和0.25 mm筛,备用,用于土壤基本理化性质测定;另取一份新鲜样品置于-20℃冰箱中保存,供土壤硝态氮、铵态氮和微生物的测定.
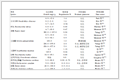
供试生物炭为玉米秸秆在500℃高温厌氧条件裂解2 h而成. 其ω(全氮)为8.34 g·kg-1、ω(全磷)为2.31 g·kg-1、ω(全钾)为16.12 g·kg-1和ω(有机碳)为42.21 g·kg-1,pH为9.46. 供试土壤基本理化性质见表 1.
|
表 1 供试土壤基本理化性质1) Table 1 Basic physical and chemical properties of the tested soil |
1.2 试验设计
本试验共设置4个处理,分别为:①沙溪庙组母质(J2s)发育的酸紫壤土(M1),②夹关组母质(K2j)发育的酸紫砂土(M2),③蓬莱镇组母质(J3p)发育的酸紫砂泥土(M3),④遂宁组母质(J3s)发育的酸紫泥土(M4). 各处理按土样干质质量比的3%[25]加入等量生物炭,混匀,每个处理设21个重复,共计84个培养罐.
分别称取供试土壤风干土样30.00 g于烧杯中,按质量含水量30 %的比例加水(每100 g土中添加30 g水),在25℃(±2℃)黑暗条件下恒温预培养7 d. 预培养后的土样与生物炭混合均匀,调节土壤质量含水量至45%,然后再在25℃(±2℃)恒温箱中暗培养. 在培养的第1、3、7、15、27、43和63 d分别破坏性取样测定相关指标,每个取样时间点,对每个处理取3个重复进行测定,共获得7个时间点、4个处理和3个重复,共计84个样品.
1.3 测定指标和方法 1.3.1 基本理化性质测定土壤pH采用玻璃电极法(土水比1∶5)测定;土壤有机质(SOM)采用K2Cr2O7容量法-外置加热法测定;土壤全氮(TN)采用浓硫酸消煮-蒸馏滴定法测定;速效磷(AP)采用0.5 mol·L-1 NaHCO3浸提-钼锑抗比色-紫外分光光度法测定. 土壤硝态氮(NO3--N)采用2mol·L-1 KCl溶液浸提-紫外分光光度法测定;铵态氮(NH4+-N)采用2mol·L-1 KCl溶液浸提-靛酚蓝比色法测定. 净硝化速率(NNE)和净氨化速率(NAE)分别依据单位时间内硝态氮、铵态氮的变化量进行计算表征.
1.3.2 土壤酸化指标测定土壤交换性酸(QA)的含量采用1 mol·L-1 KCl浸提-NaOH中和滴定法测定. 土壤盐基离子(EB)采用1 mol·L-1 NH4Ac(土水比1∶5)振荡浸提,交换性钾、钠(
根据E.Z.N.A.® soil DNA kit进行微生物群落总基因组DNA抽提,在1.0%琼脂糖凝胶上进行电泳检测后,使用NanoDrop2000测定DNA浓度和纯度. PCR扩增与测序文库构建参照Zhou等[27]的研究. 通过对比细菌和真菌的Amplicon sequence variants(ASVs)代表序列与细菌(扩增引物:338F/806R)和真菌(扩增引物:ITS-1F/ITS-1R)数据库,获取ASV代表序列及其丰度信息进行物种分类学、群落多样性(包括Chao1和Shannon指数)和物种差异的统计学分析.
1.3.4 数据分析采用Excel 2021进行前期处理;采用Origin 2024和Graphpad Prism 10.1.2软件绘制图片;使用SPSS Statistics 26.0软件的One-way ANOVA方差分析进行不同处理间的多重比较;采用Mothur 1.30软件计算微生物群落α-多样性指数(Chao1和Shannon指数);采用R语言软件的vegan包进行主坐标分析来可视化微生物群落β-多样性;采用LEfSe软件筛选出在门至属分类水平上丰度存在显著差异的细菌与真菌类群;微生物群落共现网络的分析结果利用NetworkX网络分析工具包通过Spearman方法(R=0.6,P < 0.001)计算得出,并借助Gephi绘制网络图;采用PICRUSt2和FUNGuild分别进行细菌和真菌的功能预测分析;采用Spearman相关性构建门水平下微生物群落组成与土壤环境因子的关系;采用Canoco5.0软件进行冗余分析,以评估环境因子对土壤细菌及真菌群落组成演变的作用.
2 结果与分析 2.1 生物炭添加对不同酸性紫色土铵态氮和硝态氮含量的影响由图 1(a)可知,在培养时期内所有处理NH4+-N含量总体上均呈现下降的趋势,且M4处理NH4+-N均高于其他处理. 在第7~63 d,各处理NH4+-N由大到小依次为:M4 > M1 > M3 > M2,其对应的含量变化范围分别为54.07~8.14、12.52~4.46、9.20~3.83和8.16~3.11 mg·kg-1. 培养结束后,ω(NH4+-N)范围在3.11~8.14 mg·kg-1,从高到低为:M4 > M1 > M3 > M2(P < 0.05),其对应的变化率分别为-84.65%、-64.84%、-61.53%和-80.40%.

|
不同小写字母表示不同处理间差异显著,P < 0.05 图 1 培养期间不同母质酸性紫色土铵态氮和硝态氮的动态变化及培养结束时不同母质酸性紫色土硝化特征 Fig. 1 Dynamic changes in ammonium nitrogen and nitrate nitrogen in acidic purple soils of different parent materials during cultivation and nitrification characteristics of acidic purple soils of different parent materials at the end of cultivation |
从图 1(b)可以看出,NO3--N变化趋势与NH4+-N截然相反,根据其增幅大致可分为3个阶段:初期(第1~7 d),NO3--N含量增长较快,第7 d的NO3--N含量为第1 d的106.7%~162.3%;中期(第7~15 d),各处理增速减缓,第15 d的NO3--N含量为第1 d的108.9%~170.2%;末期(第15~63 d),NO3--N含量大幅度增加,第63 d的NO3--N含量为第1d的190.3%~400.9%. 培养结束后,ω(NO3--N)范围在14.63~26.29 mg·kg-1,从高到低为:M4 > M2 > M1 > M3(P < 0.05).
2.2 生物炭添加下酸性紫色土交换性酸和盐基离子含量变化状况生物炭添加条件下不同母质发育的酸性紫色土交换性酸及盐基离子含量见表 2. M3处理的QA含量最高;
|
|
表 2 培养结束时不同母质发育的酸性紫色土交换性酸和盐基离子含量1)/cmol·kg-1 Table 2 Exchangeable acid and base ion content of acidic purple soil with different parent material development at the end of cultivation/cmol·kg-1 |
与培养前未添加生物炭的状态相比,各处理组的交换性酸及盐基离子变化量存在显著差异(图 2). 各处理的

|
不同小写字母表示不同处理间差异显著,P < 0.05 图 2 培养前后不同母质发育的酸性紫色土交换性酸和盐基离子变化量 Fig. 2 Changes in exchangeable acid and base ions in acidic purple soil with different parent material development before and after cultivation |
Chao1指数和Shannon指数可反映土壤微生物群落结构的多样性,其值越大表示微生物群落多样性越高[28]. 生物炭添加下,4种不同母质发育的酸性紫色土的微生物群落结构的多样性存在显著差异. M1处理中的细菌群落的Chao1指数和Shannon指数最低[图 3(a)和3(b)],M4处理的细菌Chao1指数显著高于M1(P < 0.01)[图 3(a)],而各处理间细菌的Shannon指数未呈现显著性差异[图 3(b)]. 与细菌不同,M1与M4处理的真菌群落Chao1指数持平,M2处理的Shannon指数最高,M2和M3处理的Chao1指数均显著高于M1和M4处理(P < 0.001),M2处理的真菌群落的Chao1指数显著大于M3(P < 0.01)[图 3(c)]. M2处理的真菌群落的Shannon指数大于M1和M4(P < 0.05)[图 3(d)].

|
细菌:(a)、(b)、(e),真菌:(c)、(d)、(f);*表示P < 0.05,**表示P < 0.01,***表示P < 0.001 图 3 生物炭添加下不同母质发育的酸性紫色土微生物群落多样性 Fig. 3 Microbial community diversity in acidic purple soils with different parent material development under biochar addition |
主坐标分析(PCoA)揭示了不同处理之间微生物群落结构组成和功能上的差异,不同母质的酸性紫色土在添加生物炭后土壤的细菌和真菌群落组成均呈现出显著差异,4个处理的样点分别占据4个不同的象限:M1处理沿第二轴正方向分布,M2处理集中分布在第三象限左下方,M3处理分布在第二象限左下角,M4处理位于第四象限右上角,PC1和PC2轴累计解释度为63.92%(R=1,P=0.001)[图 3(e)]. 土壤真菌群落也呈现出类似的分异规律,各处理样点沿坐标轴显著分离:M1处理分布于第四象限下方,M2处理集中于第二象限左下方,M3处理占据第三象限右上方,M4处理分布于第一象限左上方,PC1轴和PC2轴总共解释真菌群落差异度的68.36%(R=1,P=0.001)[图 3(f)].
2.4 生物炭添加对土壤微生物群落组成的影响 2.4.1 土壤细菌群落组成生物炭添加背景下,不同母质发育的酸性紫色土的细菌群落门水平和属水平组成分别如图 4(a)和图 4(b)所示,4组处理的相对丰度存在显著差异. M1处理以绿弯菌门、放线菌门和变形菌门为优势菌门,相对丰度分别为16.15%、9.91%和6.48%. 其优势菌门主要由norank_ f_JG30-KF-AS9、norank_o_Gaiellales和鞘脂单胞菌属(Sphingomonas)组成. M2处理的优势菌门为放线菌门、变形菌门和厚壁菌门(Firmicutes),相对丰度分别为12.85%、6.44%和6.09%,其中前两门的相对富集属与M1组一致,而厚壁菌门的相对富集属则主要是芽孢杆菌属(Bacillus). M3处理的优势菌门组成与M1处理相似,相对富集的主要贡献者也与M1处理相似. M4处理的优势菌门为绿弯菌门、变形菌门和酸杆菌门(Acidobacteriota),相对丰度分别为10.18%、7.16%和6.55%,其Top2菌门(绿弯菌门和变形菌门)的相对贡献属与M1处理一致,而酸杆菌门的富集属主要由norank_o_Vicinamibacterales组成.

|
(a)和(b)分别为细菌排名前10的门水平物种和排名前15的属水平物种,(c)和(d)分别为真菌排名前10的门水平物种和排名前15的属水平物种 图 4 生物炭添加下不同母质发育的酸性紫色土微生物群落相对丰度分布 Fig. 4 Relative abundance distribution of microbial communities in acidic purple soils with different parent material development under biochar addition |
生物炭添加背景下,不同母质发育的酸性紫色土中门和属水平真菌群落的相对丰度分别如图 4(c)和图 4(d)所示. 在M1处理中,真菌群落的优势菌门为子囊菌门、被孢霉门和担子菌门,其相对丰度分别为78.28%、3.10%和1.10%,Condenascus、Entomortierella和Saitozyma分别为上述3个优势菌门的主要贡献者. M2处理呈现出与M1处理类似的群落组成结构,其优势菌门依次为担子菌门、子囊菌门和被孢霉门,相对丰度分别为38.35%、28.37%和7.26%. Apiotrichum、绒毛盘菌属(Lasiobolus)和被孢霉属(Mortierella)分别为M2处理中上述相应门类别的相对富集属. M3处理的优势菌门与M1处理相同,但其关键贡献属呈现差异性分布,在M3处理中,子囊菌门的相对富集属为镰刀菌属(Fusarium);担子菌门的相对富集属则与M1处理一致,被孢霉门的主要贡献属与M2处理相同. M4处理的优势菌门包括子囊菌门、壶菌门(Chytridiomycota)和被孢霉门. 其中,M4处理下壶菌门的相对富集属主要由unclassified_p_Chytridiomycota组成,而子囊菌门和被孢霉门的相对富集主要贡献属与M3处理相似.
2.5 生物炭添加后土壤微生物的LEfSe差异分析利用LEfSe分析显示生物炭添加背景下4种不同母质发育酸性紫色土细菌和真菌群落的生物标志物(图 5). 通过对比分析可知,在细菌门水平下,WPS-2门和髌骨菌门(Patescibacteria)是M1处理中的优势类群,厚壁菌门、放线菌门和芽单胞杆菌门(Gemmatimonadota)是M2处理中的优势类群,M3和M4处理的优势类群分别为绿弯菌门和拟杆菌门(Bacteroidota). 在属水平下,norank_p_WPS-2、norank_ f_JG30-KF-AS9、unclassified_o_Saccharimonadales和norank_o_B12-WMSP1是M1处理中的优势类群. norank_o_Gaiellales、Clostridium_sensu_stricto_1、Terrisporobacter、罗丹杆菌属(Rhodanobacter)和norank_c_AD3是M2处理中的优势类群. norank_o_Acidobacteriales、1921-2、norank_ f_LWQ8属和FCPS473属是M3处理中的优势类群. 黄色土源菌属(Flavisolibacter)、norank_o_Subgroup_7、norank_ f_Roseiflexaceae、鞘脂单胞菌属和norank_o_SBR1031是M4处理中的优势类群.

|
图 5 生物炭添加下不同母质发育的酸性紫色土微生物群落从门到属水平差异物种分析 Fig. 5 Differential species analysis of microbial communities from phylum to genus level in acidic purple soil developed from different parent materials under the biochar addition |
对真菌群落而言,子囊菌门和单毛壶菌门(Monoblepharomycota)是M1处理中的优势类群,担子菌门是M2处理中的优势类群,壶菌门和被孢霉门是M4处理中的优势类群,而M3处理没有优势门水平类群. 在属水平上,Condenascus、毛壳菌属(Chaetomium)、Monoblepharidales_gen_Incertae_sedis、unclassified_ f_Aspergillaceae、Spiromastix、曲霉属(Aspergillus)、黄丝曲霉属(Talaromyces)和枝孢瓶霉属(Cladophialophora)是M1处理中的优势类群. Apiotrichum、绒毛盘菌属、Solicoccozyma、外瓶霉属(Exophiala)和unclassified_ f_Nectriaceae属是M2处理中的优势类群. Saitozyma、镰刀菌属、木霉属(Trichoderma)、Ustilaginoidea、unclassified_o_Chaetothyriales和Curreya是M3处理中的优势类群. unclassified_p_Chytridiomycota、unclassified_o_Spizellomycetales、翅孢壳属(Emericellopsis)、Entomortirella、杯梗孢属(Cyphellophora)、根泡壶菌属(Rhizophlyctis)、短梗蠕孢属(Trichocladium)和织球壳属(Plectosohaerella)是M4处理中的优势类群.
2.6 生物炭添加后土壤微生物群落功能分析 2.6.1 土壤细菌群落功能组成生物炭添加背景下不同母质发育的酸性紫色土的细菌群落功能情况如图 6(a)所示,总体来看,各处理的优势功能类别呈现出高度的一致性,排名前5的优势功能为“氨基酸运输和代谢”“翻译、核糖体结构和生物发生”“能量产生和转化”“细胞壁、膜和包膜生物发生”“转录”. 在已知功能类别里,“氨基酸运输和代谢”“翻译、核糖体结构和生物发生”和“能量产生和转化”等,它们的相对丰度在不同母质处理间虽有细微差别,但整体分布较为相近.

|
图 6 生物炭添加下不同母质发育的酸性紫色土微生物群落功能预测 Fig. 6 Prediction of microbial community function in acidic purple soils developed from different parent materials under biochar addition |
通过FUNGuild工具对生物炭添加背景下不同母质发育的酸性紫色土的真菌群落进行功能预测[图 6(b)]. M1处理真菌中以动物病原-粪便腐生-内生-附生-植物腐生-木质腐生、未定义腐生菌和未知为主. M2处理的真菌以土壤腐生为主导功能群,未定义腐生和未知占比次之. M3处理的真菌以真菌寄生-未定义腐生、未定义腐生和未知为主. M4处理真菌中未知相对丰度最高,其次为未定义腐生和内生-垃圾腐生-土壤腐生-未定义腐生.
2.7 生物炭添加后土壤微生物群落网络分析为了探究基于门水平微生物群落的共现性特征,分别构建了细菌-细菌和真菌-真菌的共现网络来研究生物炭添加条件下不同母质发育酸性紫色土中土壤微生物间互作关系的对比分析. 由图 7和表 3分析可知,M1处理的网络节点数和边数最多,分别为119个,324条,M4处理的节点数和边数最少,分别为62个,148条,表明M1处理中细菌共现网络的复杂性最高. 在正相关比例方面,M1处理中正相关比例最高,占比为76.54%,M3处理的正相关比例最低,占比为61.49%. 生物炭添加条件下,不同母质发育酸性紫色土的细菌网络之间的平均度差异较大,M2处理平均度最高,为6.84,而M3处理平均度最低,为2.72,表明M2处理的细菌物种间的相互关系更为密集. 模块性结果显示,M3处理的模块化指数最高,为0.87,M4处理的模块化指数最低,为0.71,表明M3处理下的细菌群落其模块化程度更高.

|
图 7 生物炭添加下不同母质发育的酸性紫色土细菌共现网络图 Fig. 7 Co-occurrence network of acidic purple soil bacteria under different parent material development with biochar addition |
|
|
表 3 生物炭添加下不同母质发育的酸性紫色土细菌共现网络拓扑参数 Table 3 Topological parameters of the co-occurrence network of acidic purple soil bacteria under different parent material development with biochar addition |
图 8和表 4显示了生物炭添加背景下不同母质发育酸性紫色土真菌群落的共现网络分析. 在节点数和边数方面,M3处理的真菌网络节点数最多,为111个,而M4处理节点数最少,为59个,M3处理的边数最多,为712条,M1处理的边数最少,为264条,表明M3处理的共现网络复杂度最高. 在正相关比例方面,所有处理的正相关比例远远大于负相关比例,从高到低为:M4(99.12%) > M3(92.42%) > M2(88.53%) > M1(86.74%),均表现出显著的正相关主导特征,其中M4处理的正相关比例极高,表明M4处理的真菌类群之间具有极为显著的协同作用. M4处理还表现出最高的平均度,为15.42,而M1处理的平均度最低,为7.54,表明M4处理中真菌群落物种的相互关系更密集. 模块性结果显示,M2和M3处理的模块化指数最高,均为0.67,M4处理的模块化指数最低,为0.61,表明M2和M3处理在结构上展现出更强的模块化特征. 总的来讲,根据以上不同处理的网络特征参数比较可知,M3处理的共现网络的复杂性和稳定性更高.

|
图 8 生物炭添加下不同母质发育的酸性紫色土真菌共现网络图 Fig. 8 Co-occurrence network of fungi in acidic purple soils with different parent materials under the addition of biochar |
|
|
表 4 生物炭添加下不同母质发育的酸性紫色土真菌共现网络拓扑参数 Table 4 Topological parameters of the fungal co-occurrence network in acidic purple soils with different parent materials under biochar addition |
2.8 土壤微生物群落组成与土壤环境因子的关系
在细菌群落中,酸杆菌门与C/N呈显著负相关(P < 0.01),而放线菌门与C/N呈显著正相关(P < 0.01),见图 9(a). 拟杆菌门与AP呈显著正相关(P < 0.01),与pH呈正相关(P < 0.05). 绿弯菌门与SOM和TN呈显著负相关(P < 0.01). 镰刀菌属与C/N呈显著正相关(P < 0.01). 芽单胞菌门(Gemmatimonadetes)与SOM和TN呈显著正相关(P < 0.01),而髌骨菌门相反,与SOM和TN呈显著负相关(P < 0.01). 变形菌门未受土壤因子的影响. WPS-2门与SOM和TN呈强负相关(P < 0.01),同时与pH呈负向性(P < 0.05). 在真菌群落中,子囊菌门受SOM和TN显著抑制(P < 0.01). 担子菌门与AP呈显著负相关(P < 0.01),且与pH呈负相关(P < 0.05). 壶菌门和被孢霉门均受C/N显著负相关作用(P < 0.01).

|
*表示P < 0.05,**表示P < 0.01;橙色表示正相关,绿色表示负相关,颜色深浅表示相关性强弱,矩形面积表示相关系数绝对值大小 图 9 生物炭添加下不同母质发育的酸性紫色的门水平优势物种与土壤因子的相关分析 Fig. 9 Correlation analysis between acid purple-colored dominant species at the door level and soil factors under different parent material development with biochar addition |
基于冗余分析(RDA),土壤理化性质对细菌群落的影响如图 9(b)所示,RDA1轴和RDA2轴分别解释细菌门水平群落结构变异的49.97%和31.97%. 其中,SOM(解释率为48.4%,P < 0.01)和TN(解释率为31.0%,P < 0.01)能显著地解释细菌门水平群落结构变化. 对于真菌群落[图 9(c)],RDA1轴和RDA2轴的解释率分别为58.11%和38.56%. 其中,C/N(解释率为47.8%,P < 0.01)、SOM(解释率为26.7%,P < 0.01)和AP(解释率为18.3%,P < 0.01)能显著地解释真菌门水平群落结构变化.
3 讨论 3.1 生物炭添加对酸性土壤阳离子交换-淋溶机制土壤中的有机氮转化为NH4+-N后,在好氧条件和微生物作用下通过硝化作用转化为NO3--N,因此土壤中NH4+-N含量减少而NO3--N含量增加[29]. 本研究结果表明,在等量生物炭添加条件下,遂宁组母质发育紫色土的净硝化和净氨化速率远高于其他三者. 这可能是由于:一是生物炭可以吸附去除土壤中硝化作用抑制剂,从而促进硝化作用[30];二是生物炭对NH4+-N具有较强的吸附能力,减少了NH4+-N淋失风险,同时为硝化作用提供了底物[31].
生物炭对酸性紫色土的改良效果还体现在其对各离子平衡的调控作用上. 本研究发现,各处理QH+均减少,这与赵凯丽等[32]的研究类似,这可能是因为酸性土壤中QH+的减少通常与土壤酸化有关,酸化过程中,土壤中的H+会增加,导致交换性酸的增加,从而影响土壤的pH值. 本试验还发现,生物炭施用后各处理的
不同母质发育的酸性紫色土,因其成土环境及理化性状各异,生物炭添加下不同母质发育的酸性紫色土门和属水平的细菌群落相对丰度存在显著差异,但优势菌门却存在相似性. Nielsen等[35]和Kolton等[36]研究发现,经生物炭处理的土壤中超过90%的细菌群落由变形菌门、拟杆菌门、放线菌门、厚壁菌门和酸杆菌门组成,与本研究结果一致. 本研究发现厚壁菌门和芽孢杆菌属类群在夹关组母质发育的紫色土中被富集,这与Cleverland等[37]的研究结果类似,这一现象与该类菌群对活性有机碳组分含量升高的高效响应能力密切相关,它们能够在低有效磷含量的环境中展现竞争优势,进而通过对生物炭的外源碳输入的响应实现快速生长. 酸杆菌门细菌在遂宁组母质发育的紫色土中呈现相对富集的现象,这与Kalam等[38]的研究结果类似,一方面,遂宁组酸紫泥土中较高的微生物可利用碳、氮、磷养分,能够缓解酸杆菌与其他嗜高营养水平微生物之间可能存在的营养竞争;另一方面,遂宁组酸紫泥土相对较低的C/N满足了贫营养型酸杆菌的营养需求.
在细菌共现网络中,沙溪庙组发育的紫色土的节点数与边数最多,且正相关比例最高,表明该网络具有更高的复杂性以及细菌的协同性更强. 这可能是因为该处理富集了绿弯菌门和放线菌门等典型的K-策略者. 这类细菌生长缓慢,擅长分解土壤中复杂的有机质,并能通过产生次级代谢产物与其他物种建立广泛的互惠关系[39]. 蓬莱镇组发育的紫色土的细菌网络呈现出最低的平均度和最高的模块化指数,表明其全局连接稀疏但局部模块内部连接紧密. 这可能是由于在砂质土壤这种养分分布不均的环境中,生物炭的高表面积和吸附营养物质的能力,能够为微生物提供附着位点,从而促进微生物的生长和活性,聚集形成紧密的群落模块[40],这种结构能够增强群落的稳定性与抵抗力[41]. 与之相比,遂宁组酸紫泥土的节点数、平均度和模块化指数较低,反映其微生物互作简单化,可能对环境扰动更为敏感[42,43]. 相比之下,真菌网络比细菌网络更为复杂,且以正相关关系为主,这可能是因为生物炭引入的大量顽固性碳,而真菌在分解释放顽固性碳方面更具倾向性,能够为土壤中的真菌类群生长提供有利条件[44]. 不同母质的紫色土共现网络特征也存在显著差异. 具体而言,蓬莱镇组酸紫砂泥土表现出最复杂的真菌共现网络,其功能预测由“真菌寄生-未定义腐生”功能群主导,可能是因为腐生菌之间倾向于形成协同关系以共同分解底物,而寄生菌通常与宿主真菌形成拮抗关系. 这种协同与拮抗并存的局面可能增加了网络中互作关系的多样性,从而构建了更为复杂的网络结构. 此外,蓬莱镇组酸紫砂泥土和夹关组酸紫砂土均表现出最高的网络模块化系数,但蓬莱镇组酸紫砂泥土的节点数、边数和平均度相对较高,表明其群落内部分工明确、互作紧密,生态系统稳定性更强[45].
3.3 生物炭添加对酸性土壤微生物群落功能预测的影响利用PICRUSt2和FUNGuild对生物炭添加下不同母质发育的土壤微生物群落功能进行了预测. 本研究结果表明,细菌功能趋于稳定和一致,而不同母质的紫色土真菌功能存在显著差异. 具体而言,尽管不同母质发育的紫色土理化性质各不相同,但所有处理中的细菌优势功能均集中在“氨基酸运输和代谢”和“能量产生和转化”等,这表明施用生物炭为微生物群落提供了丰富的营养源,促进其代谢活动和功能表现. 可能是因为生物炭作为一种普适性的改良剂,通过缓冲土壤酸度、提供栖息地和改善水肥条件,为大多数细菌的基本代谢创造了有利环境[46].
对于真菌群落的功能组成,不同母质发育的酸性紫色土呈现出显著差异. 沙溪庙组酸紫壤土支持了从腐生到动物病原等最为多样的功能类群,表明其可能形成了一个功能复杂、成熟度较高的生态系统. 在夹关组酸紫砂土中,真菌功能向“土壤腐生”高度集中,生物炭主要作为碳源支持了分解土壤有机质的功能. 遂宁组酸紫泥土的功能则集中于各类分解凋落物和土壤有机质的腐生菌,可能是由于生物炭改善了土壤物理结构,以促进好氧分解活动. 值得注意的是,蓬莱镇组酸紫砂泥土主要以“真菌寄生-未定义腐生”功能群为主,可能意味着生物炭创造的微生物富集反而加剧了物种竞争.
3.4 土壤微生物群落结构的主要驱动因子生物炭通过改变不同母质发育的酸性紫色土的理化性质调控微生物活性及其群落结构特征. 本试验RDA结果表明,SOM和TN是调控细菌群落结构的关键环境因子,这与陈鲜妮等[47]的研究结果相一致,SOM对细菌群落结构具有极显著影响,但其潜在机制尚不清楚,可能与有机质的组成有关,有机质因结构复杂(涵盖木质素、纤维素和腐植酸等成分),其分解过程会引发组分演变,进而导致土壤环境改变并对土壤微生物产生影响. Feng等[48]也发现TN在微生物群落构建过程中扮演着重要角色. 在对土壤真菌群落的研究中,RDA结果显示,C/N、SOM和AP能显著地解释真菌门水平群落结构变化,这与Zheng等[49]的研究结果类似,C/N反映了微生物的底物质量,该比值的变化可以在有限的资源下诱导特定真菌物种的选择性生长. 因此,C/N被认为是影响土壤真菌群落结构的主要因素. 在本研究中,各处理下真菌群落表现出更大的差异,且与土壤环境因子之间存在显著差异. 这与Chen等[4,50]的研究结果一致,可能是由于大多数真菌擅长通过分解生物炭带来的包含木质素和纤维素等难降解的外源有机碳,使其在外源碳利用效率上显著优于依赖简单碳源的细菌群落.
4 结论(1)生物炭添加下不同母质发育的酸性紫色土NO3--N和盐基离子含量均增加,而NH4+-N、
(2)施用生物炭后,细菌α-多样性表现为遂宁组酸紫泥土最高,真菌α-多样性则在夹关组酸紫砂土最高.
(3)生物炭添加下细菌群落的共现网络表现为沙溪庙组酸紫壤土的正相关比例最高,蓬莱镇组酸紫砂泥土的模块化指数最高. 在真菌群落中,遂宁组酸紫泥土的正相关比例最高,夹关组酸紫砂土和蓬莱镇组酸紫砂泥土处理的模块化指数最高.
(4)生物炭添加背景下不同母质发育的酸性紫色土细菌群落的功能组成保持了高度的相似性,而真菌群落的功能组成则表现出显著差异.
(5)SOM和TN是细菌群落结构的主要调节因子,C/N、SOM和AP则是真菌群落结构的主要调节因子.
| [1] |
凌云, 刘汉燚, 张小婷, 等. 西南地区典型土壤酸化特征及其与重金属形态活性的耦合关系[J]. 环境科学, 2023, 44(1): 376-386. Ling Y, Liu H Y, Zhang X T, et al. Characteristics of typical soil acidification and effects of heavy metal speciation and availability in southwest China[J]. Environmental Science, 2023, 44(1): 376-386. DOI:10.13227/j.hjkx.202202070 |
| [2] |
王齐齐, 徐虎, 马常宝, 等. 西部地区紫色土近30年来土壤肥力与生产力演变趋势分析[J]. 植物营养与肥料学报, 2018, 24(6): 1492-1499. Wang Q Q, Xu H, Ma C B, et al. Change of soil fertility and productivity of purple soil in Western China in recent 30 years[J]. Journal of Plant Nutrition and Fertilizers, 2018, 24(6): 1492-1499. |
| [3] | Li Q Q, Li S, Xiao Y, et al. Soil acidification and its influencing factors in the purple hilly area of southwest China from 1981 to 2012[J]. CATENA, 2019, 175: 278-285. DOI:10.1016/j.catena.2018.12.025 |
| [4] | Chen L D, Zhou W, Luo L, et al. Short-term responses of soil nutrients, heavy metals and microbial community to partial substitution of chemical fertilizer with spent mushroom substrates (SMS)[J]. Science of the Total Environment, 2022, 844. DOI:10.1016/j.scitotenv.2022.157064 |
| [5] | Mukhamed B, Tian L X, Yu S P, et al. Biochar amendment has stronger effects than fertilizer regimes on the bacterial community structure and ecological processes in broomcorn millet field on the Loess Plateau[J]. Plant and Soil, 2024, 499(1): 237-253. |
| [6] |
白艳, 苏小粉, 顾欣, 等. 生物炭影响耕地土壤微生物的研究进展[J]. 环境科学, 2025, 46(4): 2600-2610. Bai Y, Su X F, Gu X, et al. Research progress on the effect of biochar addition on soil microorganisms in cultived land[J]. Environmental Science, 2025, 46(4): 2600-2610. DOI:10.13227/j.hjkx.202403042 |
| [7] |
高亮, 李志合, 王芳, 等. 生物炭在土壤改良中的应用进展与风险分析[J]. 农业工程学报, 2025, 41(19): 19-31. Gao L, Li Z H, Wang F, et al. Application progress and risk analysis of biochar in soil amelioration[J]. Transactions of the Chinese Society of Agricultural Engineering, 2025, 41(19): 19-31. |
| [8] |
陈斐杰, 夏会娟, 刘福德, 等. 生物质炭特性及其对土壤性质的影响与作用机制[J]. 环境工程技术学报, 2022, 12(1): 161-172. Chen F J, Xia H J, Liu F D, et al. Characteristics of biochar and its effects and mechanism on soil properties[J]. Journal of Environmental Engineering Technology, 2022, 12(1): 161-172. |
| [9] |
陈灿, 潘亚男, 王欣, 等. 凤眼莲生物炭对稻田土壤肥力的影响[J]. 环境化学, 2017, 36(4): 907-914. Chen C, Pan Y N, Wang X, et al. Influence of water hyacinth biochar on retention of nutrition in paddy soils[J]. Environmental Chemistry, 2017, 36(4): 907-914. |
| [10] | Zheng J F, Chen J H, Pan G X, et al. Biochar decreased microbial metabolic quotient and shifted community composition four years after a single incorporation in a slightly acid rice paddy from southwest China[J]. Science of the Total Environment, 2016, 571: 206-217. DOI:10.1016/j.scitotenv.2016.07.135 |
| [11] | Bamminger C, Zaiser N, Zinsser P, et al. Effects of biochar, earthworms, and litter addition on soil microbial activity and abundance in a temperate agricultural soil[J]. Biology and Fertility of Soils, 2014, 50(8): 1189-1200. DOI:10.1007/s00374-014-0968-x |
| [12] | Luo Y, Dungait J A J, Zhao X R, et al. Pyrolysis temperature during biochar production alters its subsequent utilization by microorganisms in an acid arable soil[J]. Land Degradation & Development, 2018, 29(7): 2183-2188. |
| [13] |
肖银屏. 柑橘园不同母质土壤自养微生物群落及其固碳能力研究[D]. 武汉: 华中农业大学, 2024. Xiao Y P. Study on autotrophic microbial community and carbon sequestration ability of citrus orchard with different parent material[D]. Wuhan: Huazhong Agricultural University, 2024. |
| [14] |
付瑞桐, 万翔宇, 杨馨逸, 等. 两种母岩发育森林土壤微生物生物量碳代谢的差异性[J]. 土壤学报, 2024, 61(5): 1432-1443. Fu R T, Wan X Y, Yang X Y, et al. Analysis of the differences and causes in microbial biomass carbon metabolism characteristics of forest soils developed from two types of rocks[J]. Acta Pedologica Sinica, 2024, 61(5): 1432-1443. |
| [15] | Li Y Z, Bao X L, Zhu X F, et al. Parent material influences soil properties to shape bacterial community assembly processes, diversity, and enzyme-related functions[J]. Science of the Total Environment, 2024, 927. DOI:10.1016/j.scitotenv.2024.172064 |
| [16] |
王舒, 王子芳, 龙翼, 等. 生物炭施用对紫色土旱坡地土壤氮流失形态及通量的影响[J]. 环境科学, 2020, 41(5): 2406-2415. Wang S, Wang Z F, Long Y, et al. Effect of fertilizer reduction and biochar application on soil Nitrogen loss in purple upland[J]. Environmental Science, 2020, 41(5): 2406-2415. DOI:10.13227/j.hjkx.201911056 |
| [17] |
熊子怡, 郑杰炳, 王丹, 等. 不同施肥条件下紫色土旱坡地可溶性有机碳流失特征[J]. 环境科学, 2021, 42(2): 967-976. Xiong Z Y, Zheng J B, Wang D, et al. Characteristics of dissolved organic carbon loss in purple soil sloping fields with different fertilization treatments[J]. Environmental Science, 2021, 42(2): 967-976. DOI:10.13227/j.hjkx.202007139 |
| [18] | Huang R, Gao X R, Wang F H, et al. Effects of biochar incorporation and fertilizations on nitrogen and phosphorus losses through surface and subsurface flows in a sloping farmland of Entisol[J]. Agriculture, 2020, 300. DOI:10.1016/j.agee.2020.106988 |
| [19] | Qi L, Ma Z L, Chang S X, et al. Biochar decreases methanogenic archaea abundance and methane emissions in a flooded paddy soil[J]. Science of the Total Environment, 2021, 752. DOI:10.1016/j.scitotenv.2020.141958 |
| [20] |
杨文娜, 余泺, 罗东海, 等. 化肥和有机肥配施生物炭对土壤磷酸酶活性和微生物群落的影响[J]. 环境科学, 2022, 43(1): 540-549. Yang W N, Yu L, Luo D H, et al. Effect of combined application of biochar with chemical fertilizer and organic fertilizer on soil phosphatase activity and microbial community[J]. Environmental Science, 2022, 43(1): 540-549. DOI:10.13227/j.hjkx.202105279 |
| [21] |
罗梅, 田冬, 高明, 等. 紫色土壤有机碳活性组分对生物炭施用量的响应[J]. 环境科学, 2018, 39(9): 4327-4337. Luo M, Tian D, Gao M, et al. Soil organic carbon of purple soil as affected by different application of biochar[J]. Environmental Science, 2018, 39(9): 4327-4337. DOI:10.13227/j.hjkx.201711067 |
| [22] |
卢迪, 饶良懿. 不同类型生物炭施用对乌梁素海流域盐碱土壤理化性质的影响[J]. 环境科学, 2026, 47(1): 581-591. Lu D, Rao L Y. Effects of different types of biochar application on physical and chemical properties of saline-alkali soil in Ulansuhai Nur Basin[J]. Environmental Science, 2026, 47(1): 581-591. DOI:10.13227/j.hjkx.202412145 |
| [23] |
肖乃川, 王子芳, 杨文娜, 等. 改性酒糟生物炭对紫色土壤镉形态及水稻吸收镉的影响[J]. 环境科学, 2024, 45(5): 3027-3036. Xiao N C, Wang Z F, Yang W N, et al. Effects of modified distillers' grains biochar on cadmium forms in purple soil and cadmium uptake by rice[J]. Environmental Science, 2024, 45(5): 3027-3036. DOI:10.13227/j.hjkx.202306216 |
| [24] |
姜凌, 岳小琼, 安靖玥, 等. 改性生物炭对Cd污染农田土壤的钝化修复机制及其对土壤细菌群落的影响[J]. 环境科学, 2024, 45(9): 5557-5569. Jiang L, Yue X Q, An J Y, et al. Remediation mechanism of chitosan-modified biochar on Cd-contaminated farmland soil and its effect on bacterial community[J]. Environmental Science, 2024, 45(9): 5557-5569. DOI:10.13227/j.hjkx.202309113 |
| [25] | Hou R J, Zhu B Y, Wang L W, et al. Mechanism of clay mineral modified biochar simultaneously immobilizes heavy metals and reduces soil carbon emissions[J]. Journal of Environmental Management, 2024, 361. DOI:10.1016/j.jenvman.2024.121252 |
| [26] | Shi R Y, Li J Y, Jiang J, et al. Incorporation of corn straw biochar inhibited the re-acidification of four acidic soils derived from different parent materials[J]. Environmental Science and Pollution Research, 2018, 25(10): 9662-9672. DOI:10.1007/s11356-018-1289-7 |
| [27] | Zhou L Y, Xie Y Q, Wang X W, et al. Effect of microbial inoculation on nitrogen transformation, nitrogen functional genes, and bacterial community during cotton straw composting[J]. Bioresource Technology, 2024, 403. DOI:10.1016/j.biortech.2024.130859 |
| [28] |
郭晓雯, 向贵琴, 张发朝, 等. 生物炭和秸秆还田对咸水滴灌棉田土壤微生物群落特征及功能差异的影响[J]. 环境科学, 2024, 45(6): 3571-3583. Guo X W, Xiang G Q, Zhang F C, et al. Effects of biochar and straw return on soil microbial community characteristics and functional differences in saline water drip irrigation cotton fields[J]. Environmental Science, 2024, 45(6): 3571-3583. DOI:10.13227/j.hjkx.202308051 |
| [29] |
张名豪, 卢吉文, 赵秀兰. 有机物料对两种紫色土氮素矿化的影响[J]. 环境科学, 2016, 37(6): 2291-2297. Zhang M H, Lu J W, Zhao X L. Effect of different organic materials on nitrogen mineralization in two purple soils[J]. Environmental Science, 2016, 37(6): 2291-2297. DOI:10.13227/j.hjkx.2016.06.037 |
| [30] |
王凯, 刘勇, 赵蕊蕊, 等. 生物炭和有机肥对毛白杨人工林土壤氮矿化的影响[J]. 东北林业大学学报, 2022, 50(10): 61-68. Wang K, Liu Y, Zhao R R, et al. Effects of biochar and organic fertilizer on soil nitrogen mineralization in Populus tomentosa plantation[J]. Journal of Northeast Forestry University, 2022, 50(10): 61-68. |
| [31] |
史广宇, 吴贝贝, 胡嘉源, 等. 施加生物炭缓解土壤氮流失机理的研究进展[J]. 环境化学, 2025, 44(1): 149-163. Shi G Y, Wu B B, Hu J Y, et al. Advances in nitrogen loss reduction mechanism study by biochar application[J]. Environmental Chemistry, 2025, 44(1): 149-163. |
| [32] |
赵凯丽, 王伯仁, 徐明岗, 等. 我国南方不同母质土壤pH剖面特征及酸化因素分析[J]. 植物营养与肥料学报, 2019, 25(8): 1308-1315. Zhao K L, Wang B R, Xu M G, et al. Changes in pH with depths of soils derived from different parent materials and analysis of acidification in Southern China[J]. Journal of Plant Nutrition and Fertilizers, 2019, 25(8): 1308-1315. |
| [33] |
袁金华, 徐仁扣, 俄胜哲, 等. 生物质炭中盐基离子存在形态及其与改良酸性土壤的关系[J]. 土壤, 2019, 51(1): 75-82. Yuan J H, Xu R K, E S Z, et al. Forms of base cations in biochars and their roles in acid soil amelioration[J]. Soils, 2019, 51(1): 75-82. |
| [34] |
冉继伟, 齐昕, 武栋, 等. 施用生物炭对土壤养分有效性和离子交换性能影响的整合分析[J]. 中国生态农业学报(中英文), 2023, 31(9): 1449-1459. Ran J W, Qi X, Wu D, et al. Impacts of biochar application on soil nutrient availability and exchangeable based cations: a meta-analysis[J]. Chinese Journal of Eco-Agriculture, 2023, 31(9): 1449-1459. |
| [35] | Nielsen S, Minchin T, Kimber S, et al. Comparative analysis of the microbial communities in agricultural soil amended with enhanced biochars or traditional fertilisers[J]. Agriculture, 2014, 191: 73-82. |
| [36] | Kolton M, Meller Harel Y, Pasternak Z, et al. Impact of biochar application to soil on the root-associated bacterial community structure of fully developed greenhouse pepper plants[J]. Applied and Environmental Microbiology, 2011, 77(14): 4924-4930. DOI:10.1128/AEM.00148-11 |
| [37] | Cleveland C C, Nemergut D R, Schmidt S K, et al. Increases in soil respiration following labile carbon additions linked to rapid shifts in soil microbial community composition[J]. Biogeochemistry, 2007, 82(3): 229-240. DOI:10.1007/s10533-006-9065-z |
| [38] | Kalam S, Basu A, Ahmad I, et al. Recent understanding of soil Acidobacteria and their ecological significance: a critical review[J]. Frontiers in Microbiology, 2020, 11. DOI:10.3389/fmicb.2020.580024 |
| [39] | Faitova A. Actinobacteria communities in natural and anthropogenic environments[D]. Prague: Univerzita Karlova, 2021. |
| [40] | Yang W, Zhao Y N, Yang Y, et al. Co-application of biochar and microbial inoculants increases soil phosphorus and potassium fertility and improves soil health and tomato growth[J]. Journal of Soils and Sediments, 2023, 23(2): 947-957. DOI:10.1007/s11368-022-03347-0 |
| [41] | Grilli J, Rogers T, Allesina S. Modularity and stability in ecological communities[J]. Nature Communications, 2016, 7(1). DOI:10.1038/ncomms12031 |
| [42] | Banerjee S, Kirkby C A, Schmutter D, et al. Network analysis reveals functional redundancy and keystone taxa amongst bacterial and fungal communities during organic matter decomposition in an arable soil[J]. Soil Biology and Biochemistry, 2016, 97: 188-198. DOI:10.1016/j.soilbio.2016.03.017 |
| [43] | Zhang B G, Zhang J, Liu Y, et al. Co-occurrence patterns of soybean rhizosphere microbiome at a continental scale[J]. Soil Biology and Biochemistry, 2018, 118: 178-186. DOI:10.1016/j.soilbio.2017.12.011 |
| [44] | Bastida F, Eldridge D J, García C, et al. Soil microbial diversity–biomass relationships are driven by soil carbon content across global biomes[J]. The ISME Journal, 2021, 15(7): 2081-2091. DOI:10.1038/s41396-021-00906-0 |
| [45] |
王宇欣, 高清虹, 樊婕, 等. 有机-无机肥变更对水稻土微生物群落结构的影响[J]. 微生物学报, 2025, 65(10): 4684-4699. Wang Y X, Gao Q H, Fan J, et al. Effects of organic-inorganic fertilization regime alterations on microbial community structures in paddy soils[J]. Acta Microbiologica Sinica, 2025, 65(10): 4684-4699. |
| [46] | Arshad U. Biochar application: a sustainable approach for mitigating biotic and abiotic stresses in plants[J]. Integrative Plant Biotechnology, 2024, 2(1): 77-98. DOI:10.55627/pbiotech.002.01.0972 |
| [47] |
陈鲜妮, 米倩, 徐晓峰. 局域尺度麦田土壤微生物群落构建过程及其驱动因素[J]. 土壤, 2023, 55(4): 812-820. Chen X N, Mi Q, Xu X F. Soil microbial community construction processes and its driving factors in wheat field at local-scale[J]. Soils, 2023, 55(4): 812-820. |
| [48] | Feng Y Z, Chen R R, Stegen J C, et al. Two key features influencing community assembly processes at regional scale: Initial state and degree of change in environmental conditions[J]. Molecular Ecology, 2018, 27(24): 5238-5251. DOI:10.1111/mec.14914 |
| [49] | Zheng H J, Liu D Y, Liao X, et al. Field-aged biochar enhances soil organic carbon by increasing recalcitrant organic carbon fractions and making microbial communities more conducive to carbon sequestration[J]. Agriculture, 2022, 340. DOI:10.1016/j.agee.2022.108177 |
| [50] | Chen L M, Sun S L, Zhou Y Y, et al. Straw and straw biochar differently affect fractions of soil organic carbon and microorganisms in farmland soil under different water regimes[J]. Environmental Technology & Innovation, 2023, 32. DOI:10.1016/j.eti.2023.103412 |