 2026, Vol. 47


 , GUO Yu-xi
, LU Jie
, CHEN Meng
, HUANG Juan
, ZHOU Liu-yan
, WANG Zi-fang
, DAI Wen-cai
, GAO Ming

紫色土作为我国西南地区重要的土壤资源,因其具有保肥供肥能力强且矿质养分丰富的特点,是区域粮食安全的重要保障. 近几十年来,因受高强度农业利用与酸沉降等自然和人为因素叠加影响,紫色土正面临酸化加剧且养分有效性低,微生物群落结构失调等问题凸显[1]. 生物炭作为一种绿色新型的土壤改良剂,具有丰富的孔隙结构、养分和灰分[2],能够改善土壤结构和养分供应[3],促进微生物群落养分循环,提高土壤微生物多样性[4],增强土壤生态功能. 因此,评估生物炭对土壤微生物群落的影响,改善紫色土酸化状况,对于紫色土生产利用和生态环境保护具有重要意义[5]. 土壤pH是影响土壤健康的主控变量之一,因其通过直接或间接作用调节物理、化学和生物过程的综合作用,包括养分有效性及微生物活性等[6]. 土壤微生物群落是对土壤质量变化最敏感的土壤特性,也是土壤功能的关键指标[7]. 生物炭的施用已被证实能够显著提升土壤微生物群落的多样性,当生物炭施入土壤时,其周围微生物群落可能受到直接调控,这主要归因于生物炭一方面能作为易分解碳源为微生物提供能量[8,9],另一方面其所含的氮(N)、磷(P)、钾(K)等大量和微量元素,可满足微生物生长的营养需求,以上养分将增加土壤微生物多样性[10]. Chen等[11]通过室内培养实验证明,生物炭中的可溶性有机碳显著提高了土壤细菌的丰度和多样性,尤其是放线菌门(Actinobacteria)和变形菌门(Proteobacteria)的富集. 生物炭的施用不仅能直接影响土壤微生物群落结构,还能通过调节土壤pH值、有机质含量等间接因素,进一步影响微生物的多样性和功能. Wang等[12]通过田间试验研究表明生物炭显著提高了水稻田土壤全氮、总有机碳和水稻生物量,从而显著增加细菌和真菌的丰度,但降低了细菌/真菌比值. Yin等[13]通过盆栽试验研究表明,施用1%牛粪热解生物炭可改善酸化土壤性质,如提高土壤pH值和增加有机质(SOM)含量等,从而改变了土壤中的微生物活性,增加了Gemmatimonas、Ramlibacter和Haliangium等有益微生物属的丰度,最终间接促进了莴笋的生长,实现作物增产. 也有研究指出,生物炭施用会降低微生物共生网络的节点数量,但显著增加网络边缘数量. 进一步分析显示,子囊菌门(Ascomycota)、变形菌门(Proteobacteria)和担子菌门(Basidiomycota)作为微生物互作网络中的关键类群,其相对丰度在生物炭处理下显著降低;而厚壁菌门(Firmicutes)、放线菌门(Actinobacteria)和拟杆菌门(Bacteroidetes)等类群的丰度则呈现增加趋势. 表明生物炭促进了土壤微生物群落间更为紧密的相互作用[14]. 目前,关于生物炭的研究多集中在不同生物质原料[15,16]、不同施用量[17,18]和不同配施方式[19]等条件下,生物炭添加对典型土壤(如红壤、棕壤和水稻土等)的改良效果. 然而,对同一母质发育的不同酸化程度的紫色土,在添加等量生物炭条件下,土壤微生物群落结构及多样性的变化状况还不是十分清楚. 因此,本文假设:生物炭的施用能够通过提高土壤pH和有机质含量,改善不同酸化程度紫色土的环境条件,从而引起土壤微生物群落结构及共现网络特征的差异性变化.
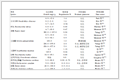
1 材料与方法 1.1 供试材料供试土壤采自重庆市江津区永兴镇黄庄农业示范园区,由侏罗系沙溪庙组母质发育而成的不同酸化程度的3种酸性紫色土,即①重度酸化紫色土(pH≤4.5,N 29°04'10″,E 106°11'18″);②中度酸化紫色土(4.5 < pH≤5.5,N 29°04'8″,E 106°11'19″);③轻度酸化紫色土(5.5 < pH≤6.5,N 29°14′39″,E 106°04′52″). 供试土壤利用现状为油菜-玉米轮作. 每种土壤采用梅花型多点采样,每个采样点的采样深度均为0~20 cm,然后通过四分法均匀混合土样保留10 kg,装入无菌自封袋内带回实验室,去除细根、砾石后自然风干,分别过20目和100目筛,用于土壤基本理化性质测定和培养实验. 生物炭购自河南立泽环保科技有限公司,原料为玉米秸秆,在500℃高温条件下厌氧裂解2 h制成,实验前将其研磨过100目筛待用,供试生物炭基本性质为:pH 9.46、ω(TOC)42.21 g·kg-1、ω[全氮(TN)]8.34 g·kg-1、ω(TP)2.31 g·kg-1、ω(TK)16.12 g·kg-1和ω(灰分)42.3%. 供试土壤基本理化性质见表 1.
|
表 1 试供土壤的基本理化性质 Table 1 Basic physical and chemical characteristics of the supplied soil |
1.2 实验设计
本实验共设置3个处理. ①T1:重度酸化紫色土(pH≤4.5);②T2:中度酸化紫色土(4.5 < pH≤5.5);③T3:轻度酸化紫色土(5.5 < pH≤6.5),每个处理设21个重复,共计63个培养罐.
称取300 g风干土平铺于培养罐中,加水至土壤质量含水量的30%,在25 ℃(±2 ℃)黑暗条件下恒温预培养7 d后,各处理按土样干质质量比的3%加入等量生物炭,混匀,补充水分至土壤质量含水量45%,进行为期63 d的黑暗恒温培养,每隔3 d进行称重补水. 在第1、3、7、15、27、43和63 d时段破坏性取样测定土壤有机碳矿化势,63 d时的土壤样品用于测定土壤其它理化指标及土壤微生物群落结构及多样性.
1.3 土壤样品的测定 1.3.1 土壤理化性质的测定土壤pH采用玻璃电极(土水比1∶5)测定;土壤有机碳(SOC)采用K2Cr2O7容量法-外置加热法测定;有机质含量换算公式如下:土壤有机质(g·kg-1)=土壤有机碳(g·kg-1)×1.724;土壤全氮采用浓硫酸消煮-蒸馏滴定法测定;土壤速效磷采用NaHCO3浸提-钼锑抗比色法测定;速效钾采用1 mol·L-1 KCl浸提-火焰光度法测定;土壤碱解氮(AN)采用碱解扩散法测定.
1.3.2 土壤微生物的测定DNA抽提:根据E.Z.N.A.® soil DNA kit(Omega Bio-tek,Norcross,GA,USA)进行微生物群落总基因组DNA抽提,在1.0%琼脂糖凝胶上进行电泳检测后,使用NanoDrop2000(Thermo Scientific,USA)测定DNA浓度和纯度.
PCR扩增与测序文库构建参照Zhou等[20]的研究. 通过对比细菌和真菌的amplicon sequence variants(ASV,扩增子序列变体)代表序列与细菌(扩增引物:338F/806R)和真菌(扩增引物:ITS-1F/ITS-1R)数据库,获得每个ASV分类学信息,包括门、纲、目、科和属水平下的分类单元. 最后,基于ASV代表序列及丰度信息,进行物种分类学、群落多样性和物种差异的统计学分析. 利用NEXTFLEX Rapid DNA-Seq Kit试剂盒,对经过纯化的PCR产物进行文库构建. 最终,利用Illumina NextSeq 2000测序平台进行测序分析(上海美吉生物医药科技有限公司).
1.4 数据分析采用Microsoft Excel 2021软件进行数据整理. IBM SPSS Statistics 26.0软件进行One-way ANOVA方差分析和Spearman相关性分析,获取各变量间的相关系数及显著性,进行逐步回归分析,采用Origin 2024b软件进行图表绘制. 采用mothur 1.30软件计算微生物群落α-多样性指数,R 3.3.1软件的vegan包,进行主坐标分析来可视化微生物群落β-多样性. LEfSe软件基于ASV分类学组成对不同处理进行线性判别分析,剔除相对丰度 < 0.01%的ASV,以LDA≥2.0且P < 0.05,确定显著差异并确定不同处理间ASV水平丰度具显著差异的细菌和真菌类群. 采用NetworkX(v1.11)工具包,Spearman相关分析法(R > 0.7,P < 0.001)计算特征间相关性,并通过Gephi-0.10.1对网络进行可视化,计算聚类系数、模块度等拓扑参数,并绘制网络拓扑图,用Canoco 5.0软件进行冗余分析并用来可视化土壤环境因子对细菌群落结构的影响.
2 结果与分析 2.1 生物炭对不同酸性紫色土土壤理化性质的影响生物炭添加背景下不同酸化程度紫色土养分含量如图 1所示,各处理间均存在着显著差异. 培养结束时各处理土壤pH大小为:T3 > T2 > T1(P < 0.05),生物炭添加后T1处理中土壤pH由4.48升至4.57,T2的pH由4.9提升至5.24,T3的pH由5.82提升至6.19. 相比于生物炭添加前的各处理土壤pH,T1、T2和T3处理pH分别提升了9%、34%和37%(P < 0.05). 培养前,ω(SOM)范围为15.44~25.0 g·kg-1,且随酸化程度加深而显著降低(P < 0.05),生物炭添加后ω(SOM)显著上升,不同处理分别提升至33.8、30.30和46.05 g·kg-1,培养结束时各处理土壤SOM含量为:T3 > T2 > T1(P < 0.05),T3处理的ω(SOM)增量显著高于T1和T2处理(P < 0.05),ω(SOC)增幅高达118.98%. 培养前,ω(TN)的含量范围为1.11~1.45 g·kg-1,生物炭添加后,各处理土壤TN含量均显著提升(P < 0.05),T3处理的增量显著高于T1和T2处理(P < 0.05). 相比于培养前未添加生物炭,各处理间C/N比均显著提高(P < 0.05),培养结束时,各处理C/N大小为:T3 > T2 > T1(P < 0.05),其中T1和T2处理的C/N增幅显著高于T3处理(P < 0.05).

|
不同小写字母表示不同处理间差异显著(P < 0.05) 图 1 培养前后不同酸化程度紫色土土壤理化性质变化 Fig. 1 Changes in physicochemical properties of purple soils with different acidification levels before and after incubation |
Shannon和Simpson指数可反映土壤微生物群落结构的多样性,其值越大表示微生物群落多样性越高. 基于97%相似性ASV水平的分析结果显示[图2(a)~2(d)],不同酸化程度对紫色土壤微生物群落的α-多样性具有显著影响:在细菌群落中,T3处理的Chao1指数与Shannon指数均极显著高于T1和T2处理(P < 0.001),其中T2处理的Chao1指数也显著高于T1处理(P < 0.01),表明T3处理下真菌群落的丰富度和多样性最高,T1处理最低. 在真菌群落中,T3处理的Chao1指数与Shannon指数同样极显著高于T1和T2处理(P < 0.001),T2处理的Chao1指数显著高于T1处理(P < 0.05),显示出与真菌群落相似的变化趋势.

|
(a)和(b)分别为细菌群落α-多样性的丰富度指数和多样性指数,(c)和(d)分别为真菌群落α-多样性的丰富度指数和多样性指数,(e)和(f)分别为真菌和细菌群落β-多样性的主坐标分析(PCoA);基于特征的Bray-Curtis距离进行分析,通过ANOSIM测试了不同酸化程度(P=0.001)对土壤群落的显著影响;*表示P < 0.05,**表示P < 0.01,***表示P < 0.001 图 2 生物炭添加下不同酸化程度紫色土微生物群落多样性 Fig. 2 Diversity of microbial community in purple soil with different acidification degrees under the biochar addition |
主坐标分析用于可视化3个处理土壤样品之间土壤微生物群落结构的差异. 分析结果显示[图2(e)和2(f)],无论是细菌群落还是真菌群落,不同酸化程度下的紫色土微生物群落结构均存在明显差异. 细菌群落在3种处理间分布清晰,样本点分别位于PCoA图的不同象限,其中T1处理分布于左上象限,T2处理分布于左下象限,T3处理分布于右上象限. PC1轴和PC2轴总共解释细菌群落差异度的75.94%(R=0.9506,P=0.001). 类似地,各处理下土壤真菌群落也各自分离,PC1轴和PC2轴总共解释真菌群落差异度的86.28%(R=1,P=0.001).
2.3 生物炭添加对不同酸化程度紫色土微生物群落组成的影响 2.3.1 土壤细菌群落组成不同酸化程度的紫色土生物炭添加培养后土壤中在门和属水平上的细菌群落组成呈现显著差异(图 3). T1处理的优势菌门为绿弯菌门、放线菌门和变形菌门. 属水平上,该处理的优势类群为norank_ f_JG30-KF-AS9、norank_o_Gaiellales和unclassified_o_Acetobacteraceae. T2处理虽保持相同的优势菌门组成,但变形菌门的优势菌属转变为鞘脂单胞菌属(Sphingomonas). T3处理的优势类群则演变为酸杆菌门、变形菌门和绿弯菌门. 其中酸杆菌门和绿弯菌门的主要优势类群分别为norank_o_Vicinamibacterales和norank_ f_JG30-KF-CM45,而变形菌门仍以鞘脂单胞菌属(Sphingomonas)为主.

|
图 3 生物炭添加下不同酸化程度紫色土(T1~T3)细菌排名前9的门水平物种和排名前20的属水平物种相对丰度 Fig. 3 Relative abundances of the top nine bacterial phyla and the top twenty bacterial genera in purple soils with different degrees of acidification (T1-T3) under biochar amendment |
图 4显示了不同酸化程度紫色土生物炭添加培养后土壤中真菌群落在门和属水平的组成差异. 从门水平来看,T1和T3处理的优势类群为子囊菌门(Ascomycota)、担子菌门(Basidiomycota)和被孢霉门(Mortierellomycota),其中T1处理中分别富集的代表属为Condenascus、Basidiodendron和Entomortierella,T3处理分别富集的代表菌属为Condenascus、Saitozyma和Mortierella. 相比之下,T2处理中的子囊菌门和被孢霉门的相对丰度最高,而担子菌门的相对丰度最低;其优势属主要包括子囊菌门、被孢霉门和担子菌门.

|
图 4 生物炭添加下不同酸化程度紫色土(T1~T3)真菌群落排名前9的门水平物种和排名前20的属水平物种相对丰度 Fig. 4 Relative abundance of top 9 phylum-level species and top 20 genus-level species of fungal community in purple soil with different acidification(T1-T3) degrees under the biochar addition |
采用线性判别分析效应量(LEfSe)方法鉴定不同处理下的差异优势ASV(图 5),揭示了不同酸化程度紫色土在细菌和真菌群落组成上的显著差异. 在细菌群落中,T1处理显著富集了包括ASV8、ASV14、ASV24和ASV128等多个差异类群,LDA分别为4.12、3.78、3.66和3.64(P < 0.05). T2处理则富集了ASV2、ASV5、ASV4和ASV7等多个差异类群,LDA分别为4.27、3.68、3.64和3.60(P < 0.05). T3处理富集优势的类群包括ASV891、ASV621和ASV2290等,LDA分别为3.49、3.17、2.98和3.60(P < 0.05). 在真菌群落中,T1处理的主要差异类群包括ASV3、ASV634、ASV5和ASV14,LDA分别为4.67、4.57、4.4和4.25(P < 0.05). T2处理显著富集的类群包括ASV1、ASV7、ASV9和ASV11等. T3处理则富集了ASV61、ASV106、ASV365和ASV48等多个差异类群. 以上结果表明,不同酸化程度紫色土在生物炭添加条件下表现出显著不同的细菌和真菌群落差异化响应,各处理具有独特的ASV生物标志物.

|
图 5 生物炭添加下不同酸化程度紫色土细菌和真菌ASV水平差异物种分析 Fig. 5 Differential analysis of bacterial and fungal species at the ASV level in purple soils with different acidification degrees under biochar amendment |
表 2与图 6展示了在相同生物炭添加量条件下,不同酸化强度紫色土壤中细菌群落的共现网络结构特征. 在3个处理中,T1处理网络节点数最多为135,边数为411,反映出该处理下细菌共现网络更复杂,但网络连通度相对较低. T2处理中,网络节点减少至94个,边数210,显示出酸化程度减弱后,细菌之间的联系有所下降. 而在T3处理中,节点虽只有81个,但边数却达到605,远高于其他处理,反映出在轻酸度条件下,细菌间的交流关系更密切. T3中的正相关边数高达408,占比67.44%,明显高于T1(265条,占64.5%)和P2(159条,占75.7%),而在T1和T2处理中,负相关边所占比例相对较高. 模块化分析显示,T2具有最高模块化系数为0.744,T1和T3分别为0.710、0.665,反映了在中度酸化条件下,细菌群落网络的模块化程度降低. 结果显示,随着土壤酸化强度的减弱,微生物网络的拓扑结构和关键参数均发生显著变化,反映出土壤pH梯度对微生物群落结构与互作模式具有重要影响. 在T1网络[图 6(a)]中,ASV183(属于Actinobacteriota)、ASV161(属于Patescibacteria)以及ASV484(属于Chloroflexi)展现了最高的度中心性. 在T2网络中[图 6(b)],ASV9324(属于Actinobacteriota)、ASV216(属于Actinobacteriota)以及ASV265(属于Firmicutes)表现出较高的度中心性. 在T3网络中[图 6(c)],ASV266(属于Chloroflexi)、ASV257(属于Proteobacteria)以及ASV121(属于Firmicutes)则拥有最高的度中心性,度值为22.
|
|
表 2 不同处理土壤细菌网络拓扑数据 Table 2 Topological characteristics of bacterial networks in soils with varying acidity levels |

|
图 6 不同处理土壤细菌群落网络分析 Fig. 6 Network analysis of bacterial communities in soils with different acidification intensities |
表 3与图 7为不同酸化强度紫色土壤中真菌群落的共现网络分析,在节点数量方面,T3处理的网络节点数最多为154,显著高于T1与T2,表明轻度酸化土壤中真菌类群更为丰富,网络中参与共现的物种较多. T3处理中边数也最高达1 149条,其中正相关边数为1 048,负相关边数为101,表明在轻度酸化土壤中,真菌群落的网络结构更复杂. T3处理的平均度数和边密度均较高,且以正相关关系为主,说明真菌类群之间可能存在更强的协同互作. 3种处理的聚类系数均接近1,表明真菌群落之间存在高度聚集的网络结构,物种之间具有较强的局部互联性. 模块化指数方面,T3具有最高的模块化系数为0.690,反映出轻度酸化土壤中真菌群落的网络结构更具模块性,网络内部子群之间连接更紧密,且子群之间相对独立. 在T1网络[图 7(a)]中,ASV370(属于Ascomycota)和ASV1737(属于Basidiomycota)显示出最高的度中心性. 在T2网络[图 7(b)]中,ASV63、ASV291以及ASV3942也显示出较高的度中心性,均属于子囊菌门. 在T3网络[图 7(c)]中,ASV14(属于Ascomycota)、ASV207(属于Ascomycota)以及ASV739(属于unclassified_k__Fungi)展现出了最高的度中心性. 结果表明,生物炭添加对不同强度酸性紫色土中关键微生物产生明显影响,特别是T2处理的关键优势类群均为子囊菌门.
|
|
表 3 不同处理土壤真菌网络拓扑数据 Table 3 Topological characteristics of fungal networks in soils with varying acidity levels |

|
图 7 不同处理土壤真菌群落网络分析 Fig. 7 Network analysis of fungal communities in soils with different acidification intensities |
根据图 8中门水平微生物类群与土壤环境因子的相关性分析结果可以看出,在细菌方面,绿弯菌门与土壤pH、CBH和GLU显著负相关(P < 0.01),与SOC、INV和GMEA也呈负相关(P < 0.05);放线菌门与TN、INV和GMEA呈负相关(P < 0.05);WPS-2门与GLU显著负相关(P < 0.01),同时与pH、SOC、CBH、INV和GMEA呈负相关(P < 0.05);髌骨菌门与INV和GMEA显著负相关(P < 0.01),与SOC、CBH和GLU呈负相关(P < 0.05);厚壁菌门则与pH、GLU、INV和GMEA呈正相关(P < 0.05);酸杆菌门与TN显著正相关(P < 0.01),与pH、SOC和CBH也呈正相关(P < 0.05);拟杆菌门与pH、SOC、CBH、GLU、INV和GMEA呈显著正相关(P < 0.01),与C/N呈正相关(P < 0.05);芽单胞菌门与C/N显著正相关(P < 0.01),并与SOC、AP、INV和GMEA呈正相关(P < 0.05). 真菌方面,子囊菌门与TN显著负相关(P < 0.01);壶菌门与pH、SOC和CBH显著正相关(P < 0.01),同时与GLU、INV和GMEA呈正相关(P < 0.05).

|
SOC:土壤有机碳,TN:全氮,AP:速效磷,C/N:碳氮比,CBH:纤维二糖水解酶,GLU:β-葡萄糖苷酶,INV:蔗糖酶,GMEA:酶活性的几何平均数;*P < 0.05,**P < 0.01;n=9 图 8 生物炭添加下不同酸化程度紫色土门水平微生物物种与土壤环境因子的相关性分析 Fig. 8 Spearman correlation analysis between soil environmental factors and phylum-level microbial species in purple soil with different acidification degrees under the biochar addition |
对不同酸化程度紫色土微生物门水平群落组成与土壤环境因子进行冗余分析(图 9,RDA),结果显示RDA第1轴和第2轴分别解释了细菌门水平群落结构79.76%和17.70%的变化[图 9(a)]. 此外,pH、TN、GLU、AP和C/N均是调节细菌群落结构的主要因素(五者P < 0.05). RDA第1轴和第2轴分别解释了真菌门水平群落75.71%和22.67%的变化[图 9(b)]. CBH、TN、INV和C/N是调节真菌群落结构的最主要因素(四者P < 0.05).

|
1.WPS_2,2.Patescibacteria,3.Actinobacteriota,4.Chloroflexi,5.Proteobacteria,6.Gemmatimonadota,7.Firmicutes,8.Bacteroidota,9.Acidobacteriota,10.Ascomycota,11.Mortierellomycota,12.Basidiomycota,13.Chytridiomycota 图 9 生物炭添加下不同酸化程度紫色土细菌和真菌门水平物种与土壤环境因子的冗余分析 Fig. 9 Redundancy analysis between phylum-level bacteria and fungi species and soil environmental factors in purple soil with different acidification degrees under the biochar addition |
生物炭作为一种有机土壤改良剂,能够显著改善土壤的理化性质并促进土壤有效养分的积累. 本研究结果显示生物炭添加均增加了不同酸度紫色土的pH. 这是由于生物炭自身含有较多的碱性物质,如碳酸盐、有机官能团等,能够中和土壤酸性[21]. 生物炭通过表面羧基质子化、碱性官能团(如碳酸盐、羰基—CO和磷酸盐等)能直接提升酸性至中性土壤的pH[22];另一方面,生物炭表面丰富的含氧官能团(如羧基—COOH和羟基—OH)解离,吸收并中和土壤溶液中的H+[8],促使铝离子发生水解转变为羟基铝或者是氢氧化铝沉淀,来降低交换性铝的含量[23]. 相比于中度和轻度酸化紫色土,生物炭施用对重度酸化紫色土pH提升效果不明显(ΔpH=0.09). 生物炭应用于强酸性土壤中,其酸度调节能力会因交换反应而消弱,施用生物炭对pH < 4.5的土壤即极强酸性土壤的pH提高幅度较小,这与王义祥等[24]的研究结果一致. 这可能是因为土壤初始酸度与H+浓度呈指数级相关,土壤pH越低,H+含量就呈指数型增加,土壤中活性酸的含量也就越高,当生物炭施入土壤中,土壤的缓冲能力也就越强,土壤H+浓度下降速率就越缓慢[25]. 因此生物炭施入到中度(4.5 < pH≤5.5)和轻度(5.5 < pH≤6.5)酸化土壤中的改酸效果最好[26].
土壤有机质和全氮含量关系土壤健康,碳氮比值常作为反映土壤生产力高低与生态平衡的指标[27,28]. 本研究结果显示生物炭添加均增加了不同酸度紫色土的SOM、TN和C/N. 这与前人研究结果一致,即认可生物炭在提高土壤生产力上的正向作用[29]. 一方面,高纤维素作物秸秆类原料使生物炭具有灰分、稳定态碳含量和碳氮比较高的特点,其抗分解性强[30],施入土壤后可能直接促进SOM增加;加之生物炭的多孔特性和表面催化活性能够吸附土壤有机碳进而形成稳定的胶体复合物[31],对SOM提升具有积极影响. 另一方面,生物炭添加可以增加微生物群落的代谢繁殖,而有机碳和氮之间存在的耦合作用使得土壤有机成分增加的同时伴随着有机氮增加[32],所以能够增加TN含量.
3.2 生物炭施用对酸性土壤微生物群落组成和生态网络的影响3种不同酸化程度的紫色土在添加生物炭培养后,土壤细菌门水平的优势群落均有绿弯菌和变形菌,绿弯菌被认为是生长缓慢且较少优先利用有机质的K-型策略细菌,生长缓慢且较少优先利用易降解有机质,但其对稳定生境和缓慢释放的资源具有较强适应性[33]. 生物炭施入后不仅提高了土壤pH、缓解酸胁迫,还通过多孔结构提供了稳定的微生境,减少了环境波动与竞争压力[34],这可能为绿弯菌的持续生长创造了有利条件. 相比之下,变形菌具有较高的多源底物适应性,能够降解含氮化合物、多糖、长链烷烃、木质素和半纤维素等多种碳氮物质[35];生物炭通过表面可溶性有机质提供可利用碳源,和改善微氧环境,直接促进变形菌门中好氧及兼性厌氧菌(如α-和γ-变形菌纲)的生长. 所以在生物炭添加下高有机质环境可能促使这两种细菌占据优势. 3种酸化程度土壤真菌门水平的优势群落均为子囊菌门、担子菌门和被孢霉门,担子菌门下的担子菌属在重度酸化紫色土中相对富集,这可能是因为担子菌属具有较高的生态适应性,可通过有机酸代谢适应低pH环境[36]. 被孢霉门下的被孢霉属在轻度酸化紫色土处理中相对富集,这被公认为是一类降解纤维素和木质素等大分子难降解有机物的真菌[37],而轻度酸化可能抑制部分细菌竞争者,释放更多可溶性碳. 被孢霉属在酸度适中的环境中更具竞争力. 轻度酸化紫色土的细菌和真菌群落丰度和α-多样性均为最高,这可能与生物炭通过提高土壤pH、优化微生境条件、提供可利用碳源等共同作用有关,为后续群落结构和功能分化奠定了基础.
土壤微生物群落的网络系统对土壤健康至关重要,它们通过复杂的生态互作影响土壤功能和土壤形成[38]. 多项研究表明,生物炭的施用可以对微生物网络的拓扑结构产生显著影响,这些影响主要体现在微生物多样性、网络复杂性和稳定性等方面[39~41]. 本研究发现生物炭添加对高酸化强度处理的土壤微生物群落的共现网络呈现更复杂、但连通度较低的现象,而轻度酸化土壤中微生物网络复杂程度降低但却有较高网络连通度. 这与Yang[42]等的研究结果一致,当土壤pH < 4.5时微生物网络复杂性较低,但生物炭添加使pH升至4.5~5.5范围后,网络复杂性显著增加(路径系数提升0.55~0.93). 值得注意的是,网络中正相关边数及模块化分析结果显示,中度酸化条件下的微生物群落共现网络表现出更高的模块化且具有更多正相关边数,印证了Shi等[43]在酸性农田土壤(pH < 4.5)研究中发现,生物炭添加后正相关边比例从43%升至57%,表明微生物协作增强. pH < 4.5的土壤模块化值较低,生物炭添加通过提升pH至中等范围(5.5~6.5),微生物模块化增加20%~30%,形成更稳定的、在生态功能上可能存在协作关系的模块化群落[44].
3.3 驱动酸性土壤微生物群落变化的主要环境因素RDA结果显示pH、TN、GLU、AP和C/N均是调节细菌群落结构的主要因素,这与Wang等[45]的研究结果相符. 本研究中生物炭塑造了更有利微生物生长繁殖与生命活动的环境和营养,提升土壤pH并改善C、N和P养分有效性,从而直接和间接地调控细菌群落结构. 变形菌门下的鞘脂单胞菌属在中度和轻度酸化紫色土处理中相对富集,它们在土壤芳香化合物和环境污染物的降解中具有重要作用[46]. 此外,酸杆菌门在轻度酸化紫色土中相对富集,这与Qiu等[17]在2%和4%生物炭添加量条件下发现酸杆菌门相对富集的结果一致. 虽然酸杆菌门主要是一类嗜酸性的贫营养型细菌,但在一些中性或碱性的环境中也检测出部分酸杆菌的基因序列[47]. 在本研究中,酸杆菌门在轻度酸化条件下相对富集,可能与生物炭施入后提高土壤pH、改善微生境稳定性及调节营养可获得性有关,然而,有关酸杆菌门在不同土壤酸度和碳源条件下的代谢策略有待进一步研究.
3种酸化程度土壤真菌门水平的优势群落均为子囊菌、担子菌和被孢霉,且CBH、TN、INV和C/N是调节真菌群落结构的最主要因素. 担子菌门下的担子菌属在重度酸化紫色土中相对富集,这可能是因为担子菌属具有较高的生态适应性,可通过有机酸代谢适应低pH环境[36]. 被孢霉门下的被孢霉属在轻度酸化紫色土处理中相对富集,这被公认为是一类降解纤维素和木质素等大分子难降解有机物的真菌,而轻度酸化可能抑制部分细菌竞争者,释放更多可溶性碳. 被孢霉属在酸度适中的环境中更具竞争力.
4 结论(1)生物炭作为一种绿色新型土壤改良材料,可以显著提升土壤pH、有机质和全氮含量,同时改变土壤微生物群落多样性及结构组成,从而增加土壤生态系统的健康水平.
(2)生物炭的添加显著改变了不同pH梯度紫色土中微生物的群落组成,其中细菌和真菌的优势种群结构呈现明显的酸度依赖性差异,中等酸度条件下微生物生态网络呈现更加复杂且稳定的互作关系.
(3)同一母质发育的不同酸化程度紫色土,pH和C/N分别是调节细菌和真菌群落结构最主要的因素,因此,生物炭能够通过提升养分含量,缓解酸化,影响微生物群落结构.
| [1] |
骆永明, 滕应. 我国土壤污染的区域差异与分区治理修复策略[J]. 中国科学院院刊, 2018, 33(2): 145-152. Luo Y M, Teng Y. Regional difference in soil pollution and strategy of soil zonal governance and remediation in China[J]. Bulletin of Chinese Academy of Sciences, 2018, 33(2): 145-152. |
| [2] | Mukhamed B, Tian L X, Yu S P, et al. Biochar amendment has stronger effects than fertilizer regimes on the bacterial community structure and ecological processes in broomcorn millet field on the Loess Plateau[J]. Plant and Soil, 2024, 499(1-2): 237-253. DOI:10.1007/s11104-023-06109-0 |
| [3] | Zhang Q Q, Song Y F, Wu Z, et al. Effects of six-year biochar amendment on soil aggregation, crop growth, and nitrogen and phosphorus use efficiencies in a rice-wheat rotation[J]. Journal of Cleaner Production, 2020, 242. DOI:10.1016/j.jclepro.2019.118435 |
| [4] |
徐强, 胡永庆, 张靖晞, 等. 土地利用强度对紫色土微生物群落和功能特征的影响[J]. 环境科学, 2026, 47(4): 2713-2722. Xu Q, Hu Y Q, Zhang J X, et al. Effects of land use intensity on the microbial community structure in purple soil[J]. Environmental Science, 2026, 47(4): 2713-2722. |
| [5] | Yuan M S, Zhu X Z, Sun H R, et al. The addition of biochar and nitrogen alters the microbial community and their cooccurrence network by affecting soil properties[J]. Chemosphere, 2023, 312. DOI:10.1016/j.chemosphere.2022.137101 |
| [6] | Kooijman A, Morriën E, op Akkerhuis G J, et al. Resilience in coastal dune grasslands: pH and soil organic matter effects on P nutrition, plant strategies, and soil communities[J]. Ecosphere, 2020, 11(5). DOI:10.1002/ecs2.3112 |
| [7] | Sheng Y Q, Zhu L Z. Biochar alters microbial community and carbon sequestration potential across different soil pH[J]. Science of the Total Environment, 2018, 622-623: 1391-1399. DOI:10.1016/j.scitotenv.2017.11.337 |
| [8] |
白艳, 苏小粉, 顾欣, 等. 生物炭影响耕地土壤微生物的研究进展[J]. 环境科学, 2025, 46(4): 2600-2610. Bai Y, Su X F, Gu X, et al. Research progress on the effect of biochar addition on soil microorganisms in cultived land[J]. Environmental Science, 2025, 46(4): 2600-2610. |
| [9] | Ling L, Luo Y, Jiang B, et al. Biochar induces mineralization of soil recalcitrant components by activation of biochar responsive bacteria groups[J]. Soil Biology and Biochemistry, 2022, 172. DOI:10.1016/j.soilbio.2022.108778 |
| [10] | Pokharel P, Ma Z L, Chang S X. Biochar increases soil microbial biomass with changes in extra- and intracellular enzyme activities: a global meta-analysis[J]. Biochar, 2020, 2(1): 65-79. DOI:10.1007/s42773-020-00039-1 |
| [11] | Chen J, Li S, Liang C, et al. Response of microbial community structure and function to short-term biochar amendment in an intensively managed bamboo (Phyllostachys praecox) plantation soil: Effect of particle size and addition rate[J]. Science of the Total Environment, 2017, 574. DOI:10.1016/j.scitotenv.2016.08.190 |
| [12] | Wang C, Chen D, Shen J L, et al. Biochar alters soil microbial communities and potential functions 3-4 years after amendment in a double rice cropping system[J]. Agriculture, 2021, 311. DOI:10.1016/j.agee.2020.107291 |
| [13] | Yin S J, Zhang X, Suo F Y, et al. Effect of biochar and hydrochar from cow manure and reed straw on lettuce growth in an acidified soil[J]. Chemosphere, 2022, 298. DOI:10.1016/j.chemosphere.2022.134191 |
| [14] | Lei C T, Lu T, Qian H F, et al. Machine learning models reveal how biochar amendment affects soil microbial communities[J]. Biochar, 2023, 5(1). DOI:10.1007/s42773-023-00291-1 |
| [15] | Wu D, Senbayram M, Zang H D, et al. Effect of biochar origin and soil pH on greenhouse gas emissions from sandy and clay soils[J]. Applied Soil Ecology, 2018, 129: 121-127. DOI:10.1016/j.apsoil.2018.05.009 |
| [16] | Senbayram M, Saygan E P, Chen R R, et al. Effect of biochar origin and soil type on the greenhouse gas emission and the bacterial community structure in N fertilised acidic sandy and alkaline clay soil[J]. Science of the Total Environment, 2019, 660: 69-79. DOI:10.1016/j.scitotenv.2018.12.300 |
| [17] | Qiu H S, Liu J Y, Boorboori M R, et al. Effect of biochar application rate on changes in soil labile organic carbon fractions and the association between bacterial community assembly and carbon metabolism with time[J]. Science of the Total Environment, 2023, 855. DOI:10.1016/j.scitotenv.2022.158876 |
| [18] | Ding X Y, Li G T, Zhao X R, et al. Biochar application significantly increases soil organic carbon under conservation tillage: an 11-year field experiment[J]. Biochar, 2023, 5(1). DOI:10.1007/s42773-023-00226-w |
| [19] |
柳晓婉, 刘杏认, 高尚洁, 等. 生物炭与不同类型氮肥配施对菜地土壤反硝化细菌群落的影响[J]. 环境科学, 2024, 45(4): 2394-2405. Liu X W, Liu X R, Gao S J, et al. Effects of biochar combined with different types of nitrogen fertilizers on denitrification bacteria community in vegetable soil[J]. Environmental Science, 2024, 45(4): 2394-2405. |
| [20] | Zhou L Y, Xie Y Q, Wang X W, et al. Effect of microbial inoculation on nitrogen transformation, nitrogen functional genes, and bacterial community during cotton straw composting[J]. Bioresource Technology, 2024, 403. DOI:10.1016/j.biortech.2024.130859 |
| [21] | Bolan N, Sarmah A K, Bordoloi S, et al. Soil acidification and the liming potential of biochar[J]. Environmental Pollution, 2023, 317. DOI:10.1016/j.envpol.2022.120632 |
| [22] | Shi R Y, Ni N, Nkoh J N, et al. Biochar retards Al toxicity to maize (Zea mays L.) during soil acidification: the effects and mechanisms[J]. Science of the Total Environment, 2020, 719. DOI:10.1016/j.scitotenv.2020.137448 |
| [23] | Dai Z M, Zhang X J, Tang C, et al. Potential role of biochars in decreasing soil acidification-a critical review[J]. Science of the Total Environment, 2017, 581-582: 601-611. DOI:10.1016/j.scitotenv.2016.12.169 |
| [24] |
王义祥, 辛思洁, 叶菁, 等. 生物炭对强酸性茶园土壤酸度的改良效果研究[J]. 中国农学通报, 2018, 34(12): 108-111. Wang Y X, Xin S J, Ye J, et al. Improvement effect of biochar on soil acidity in strong acidity tea garden[J]. Chinese Agricultural Science Bulletin, 2018, 34(12): 108-111. |
| [25] | Liu S W, Cen B T, Yu Z N, et al. The key role of biochar in amending acidic soil: reducing soil acidity and improving soil acid buffering capacity[J]. Biochar, 2025, 7(1). DOI:10.1007/s42773-025-00432-8 |
| [26] |
赵旋彤, 王鸿斌, 赵兰坡, 等. 吉林省3种典型农耕土壤酸碱缓冲性能及影响因素[J]. 吉林农业大学学报, 2023, 45(2): 163-171. Zhao X T, Wang H B, Zhao L P, et al. Acid-base buffering performance and influencing factors of three typical agricultural soils in Jilin province[J]. Journal of Jilin Agricultural University, 2023, 45(2): 163-171. |
| [27] |
高静, 徐明岗, 李然, 等. 整合分析生物炭施用对土壤pH的影响[J]. 中国农业科技导报, 2023, 25(9): 186-196. Gao J, Xu M G, Li R, et al. Effects of biochar application on soil pH: a meta-analysis[J]. Journal of Agricultural Science and Technology, 2023, 25(9): 186-196. |
| [28] | Zhang X M, Guo J H, Vogt R D, et al. Soil acidification as an additional driver to organic carbon accumulation in major Chinese croplands[J]. Geoderma, 2020, 366. DOI:10.1016/j.geoderma.2020.114234 |
| [29] | Artemyeva Z, Danchenko N, Kolyagin Y, et al. Chemical structure of soil organic matter and its role in aggregate formation in Haplic Chernozem under the contrasting land use variants[J]. CATENA, 2021, 204: doi: 10.1016/j.catena.2021.105403.. |
| [30] |
侯建伟, 邢存芳, 杨莉琳, 等. 生物炭与有机肥等碳量投入土壤肥力与细菌群落结构差异及关系[J]. 环境科学, 2024, 45(7): 4218-4227. Hou J W, Xing C F, Yang L L, et al. Differences in soil fertility and bacterial community structure between carbon inputs such as biochar and organic fertilizer and their relationship[J]. Environmental Science, 2024, 45(7): 4218-4227. |
| [31] |
刘东明, 郭宇轩, 魏圆慧, 等. 改性生物炭对土壤有机碳及化学结构的影响[J]. 农业资源与环境学报, 2025, 42(1): 187-196. Liu D M, Guo Y X, Wei Y H, et al. Effects of modified biochar on soil organic carbon and chemical structure[J]. Journal of Agricultural Resources and Environment, 2025, 42(1): 187-196. |
| [32] |
马群, 刘铭, 周玉玲, 等. 生物炭与有机无机肥配施对土壤质量的影响[J]. 西南大学学报(自然科学版), 2024, 46(7): 115-126. Ma Q, Liu M, Zhou Y L, et al. The effect of biochar combined with organic and inorganic fertilizers on soil biological characteristics and quality[J]. Journal of Southwest University (Natural Science), 2024, 46(7): 115-126. |
| [33] |
范鹏, 徐开未, 李冬梅, 等. 有机碳源添加对紫色土培肥及玉米生长的影响[J]. 四川农业大学学报, 2025, 43(5): 1189-1198. Fan P, Xu K W, Li D M, et al. Effects of organic carbon source addition on fertilization of purple soil and the growth of maize[J]. Journal of Sichuan Agricultural University, 2025, 43(5): 1189-1198. |
| [34] | Hou Q, Zuo T, Wang J, et al. Responses of nitrification and bacterial community in three size aggregates of paddy soil to both of initial fertility and biochar addition[J]. Applied Soil Ecology, 2021, 166. DOI:10.1016/j.apsoil.2021.104004 |
| [35] | Wu C, Shi L Z, Xue S G, et al. Effect of sulfur-iron modified biochar on the available cadmium and bacterial community structure in contaminated soils[J]. Science of the Total Environment, 2019, 647: 1158-1168. DOI:10.1016/j.scitotenv.2018.08.087 |
| [36] | Liu Q, Wu C Y, Wei L, et al. Microbial mechanisms of organic matter mineralization induced by straw in biochar-amended paddy soil[J]. Biochar, 2024, 6(1). DOI:10.1007/s42773-024-00312-7 |
| [37] | Aguilar-Paredes A, Valdés G, Araneda N, et al. Microbial community in the composting process and its positive impact on the soil biota in sustainable agriculture[J]. Agronomy, 2023, 13(2). DOI:10.3390/agronomy13020542 |
| [38] | Rineau F, Shah F, Smits M M, et al. Carbon availability triggers the decomposition of plant litter and assimilation of nitrogen by an ectomycorrhizal fungus[J]. The ISME Journal, 2013, 7(10): 2010-2022. DOI:10.1038/ismej.2013.91 |
| [39] | Fu S F, Balasubramanian V K, Chen C L, et al. The phosphate-solubilising fungi in sustainable agriculture: unleashing the potential of fungal biofertilisers for plant growth[J]. Folia Microbiologica, 2024, 69(4): 697-712. DOI:10.1007/s12223-024-01181-0 |
| [40] | Chen J, Nan J, Xu D L, et al. Response differences between soil fungal and bacterial communities under opencast coal mining disturbance conditions[J]. CATENA, 2020, 194. DOI:10.1016/j.catena.2020.104779 |
| [41] |
陈薪宇, 胡永庆, 吕俊廷, 等. 生物炭对花椒园土壤细菌群落功能预测的影响及共生网络分析[J]. 环境科学, 2025, 46(12): 8071-8081. Chen X Y, Hu Y Q, Lü J T, et al. Effects of biochar application on bacterial community structure and symbiotic network analysis in acidic purple soil[J]. Environmental Science, 2025, 46(12): 8071-8081. |
| [42] | Yang Y, Shi Y, Fang J, et al. Soil microbial network complexity varies with pH as a continuum, not a threshold, across the north China plain[J]. Frontiers in Microbiology, 2022, 13. DOI:10.3389/fmicb.2022.895687 |
| [43] | Shi Y, Li Y T, Yang T, et al. Threshold effects of soil pH on microbial co-occurrence structure in acidic and alkaline arable lands[J]. Science of the Total Environment, 2021, 800. DOI:10.1016/j.scitotenv.2021.149592 |
| [44] | Chen B B, Jiao S, Luo S W, et al. High soil pH enhances the network interactions among bacterial and archaeal microbiota in alpine grasslands of the Tibetan Plateau[J]. Environmental Microbiology, 2021, 23(1): 464-477. DOI:10.1111/1462-2920.15333 |
| [45] | Wang C Q, Kuzyakov Y. Soil organic matter priming: the pH effects[J]. Global Change Biology, 2024, 30(6). DOI:10.1111/gcb.17349 |
| [46] |
余殊彤, 张饮江, 张娟琴, 等. 高温和不同光照条件下微地膜对土壤微生物群落结构和碳固定/碳降解功能的影响[J]. 农业资源与环境学报, 2025, 45(5): 1159-1171. Yu S T, Zhang Y J, Zhang J Q, et al. Effects of micro mulch film on soil microbial community structure and carbon fixation/decomposition function under high temperature and different light conditions[J]. Journal of Agricultural Resources and Environment, 2025, 45(5): 1159-1171. |
| [47] | Darma A, Yang J J, Feng Y, et al. The impact of maize straw incorporation on arsenic and cadmium availability, transformation and microbial communities in alkaline-contaminated soils[J]. Journal of Environmental Management, 2023, 344. DOI:10.1016/j.jenvman.2023.118390 |