 2026, Vol. 47


2. 林木资源高效生产全国重点实验室,银川 750004
2. National Key Laboratory of Efficient Production of Forest Resources, Yinchuan 750004, China
枸杞作为我国重要的药食同源经济作物,其产业可持续发展面临严峻挑战. 宁夏作为全国枸杞主产区,截至2023年年底,全区枸杞种植保有面积达2.16×10⁴ hm2,鲜果产量32万t[1],但长期连作导致的土壤退化问题日益突出,表现为养分失衡、自毒物质积累及微生物群落失调[2]. 有研究表明[3],连作导致的土壤次生盐碱化、微生物多样性丧失和植物病原真菌积累是枸杞地土壤健康的主要威胁.
土壤微生物在维持土壤生态系统稳定性与健康方面发挥着核心作用[4],它们驱动土壤物质循环和能量流动[5],参与碳、氮、磷等关键元素的生物地球化学过程[6]. 部分微生物能够分解有机物质,将其转化为可供植物吸收的有效养分,为枸杞生长提供营养支持. 此外,土壤微生物还可通过与枸杞根系建立共生关系,增强植株抗逆性,协助抵御病虫害及干旱、盐碱等逆境胁迫[7]. 因此,微生物群落结构与功能稳定性已成为评价农田生态系统健康与可持续性的重要生物指标[8].
近年来,覆盖作物间套作模式因其生态效益受到广泛关注. 例如,苹果园生草覆盖配施有机无机肥可提高土壤活性磷含量[9]; 苜蓿覆盖可改变土壤真菌群落结构,虽降低多样性但提升功能冗余性[10]. 一项涵盖60项研究的荟萃分析表明,覆盖作物种植可使土壤微生物丰度与活性平均提高27%[11]. 然而,现有研究多聚焦单一覆盖作物对土壤理化性质的影响[12,13],关于覆盖种植模式下微生物互作网络结构、关键功能类群及其生态稳定性的系统性研究仍较为缺乏. 特别是以十字花科芸薹属作物(如肥田萝卜)作为覆盖作物与枸杞复合种植,其对土壤微生态的调控机制尚不明确,相关根际微生物群落特征与共现网络结构仍有待深入解析. 更重要的是,微生物群落结构变化如何进一步影响枸杞果实品质形成与产量积累,其背后的微生物-土壤-作物互作机制仍需从系统层面加以阐释,这对于基于微生态原理优化种植模式、缓解连作障碍及实现枸杞可持续生产具有重要意义.
鉴于此,本研究将肥田萝卜引入枸杞种植体系,构建“枸杞/肥田萝卜”覆盖种植模式,重点探究以下科学问题:①该种植模式对土壤微生物群落结构与构建机制的影响; ②覆盖种植下微生物共生网络的拓扑特性及生态稳定性是否显著增强; ③关键土壤环境因子如何驱动微生物群落演变; ④果实品质与产量变化与土壤微生物群落之间的关联及其作用机制. 通过上述研究,系统揭示枸杞/肥田萝卜覆盖种植模式的土壤微生态调控机制,旨在为枸杞产业绿色转型提供理论依据.
1 材料与方法 1.1 研究区概况田间定位试验于2021年宁夏回族自治区中宁县营盘滩一队枸杞种植基地(37.53°N,105.72°E)进行(图 1),该试验地海拔约为1 179 m,处于北温带大陆性季风气候区,昼夜温差较为显著,降水少(年均192 mm),蒸发强量(年均1 883 mm),气温低(年均9.9 ℃),无霜期短(170~180 d)以及冬春干旱,四季多风的特点.

|
(a)宁夏行政区划,(b)种植模式示意图,(c)覆盖种植试验样地模式 图 1 试验样地和覆盖种植示意 Fig. 1 Schematic diagram of experimental plots and cover cropping |
本试验采用裂区设计,主处理因素为种植模式(A),设传统枸杞单作(monoculture,M)和枸杞-肥田萝卜覆盖种植(intercropping,Ⅰ)这2种模式; 副处理为施用有机肥量(B),施用有机肥(organic fertilizer,O),设不施肥(O0)、中量(每株2 kg,O1)和高量(每株4 kg,O2)这3个水平,3次重复,小区面积120 m2(20 m×6 m). 化肥选用尿素、磷酸二铵和硫酸钾,枸杞于4月下旬至6月下旬和6月末至7月下旬分两次根部追肥,每次每株施N 120 g、P2O5 60 g和K2O 75 g. 3月下旬至4月中旬展叶期采用环状沟施法施用腐熟羊粪,施肥沟距树干30 cm,深宽各30 cm,施用量分别为0、6 660和13 320 kg·hm-2.
枸杞与肥田萝卜供试品种分别为宁杞7号(Lycium barbarum L.)和白玉大根(Raphanus sativus L. var. longipinnatus). 传统枸杞单作模式枸杞株行距为1 m×3 m,行间休闲,仅进行常规除草管理. 枸杞/肥田萝卜套作模式肥田萝卜需在枸杞夏季休眠期(8月上旬)沿枸杞套种,株距20 cm,距枸杞行20 cm,播种深度1~2 cm. 播种密度为33 300~37 500株·hm-2. 肥田萝卜采用全量还田,12月下旬冻伤死亡后翌年春季原地腐解,其余田间管理措施与传统种植相同. 枸杞园采用沟灌,灌水定额为1 200 m3·hm-2,整个生育期内灌水量9 000 m3·hm-2.
1.3 样品采集土壤样品于2024年11月上旬枸杞收获后进行采集. 每个小区选取5株健康枸杞植株,以树干为中心,沿距树干约30 cm的对角线4个顶点取样. 使用铁铲去除样点地表杂草和其他杂质,选取0~20 cm深度区间富含1 mm左右细根的区域部位,用土钻收集土壤和根系混合样,利用抖落法收集根际土壤,将所得的新鲜土样分为两部分:一部分经过液氮速冻处理后,保存在-80 ℃冰箱,用于微生物群落多样性分析; 另一部分置于4 ℃保存,用于测定土壤相关理化指标.
1.4 样品测定 1.4.1 土壤基本理化性质测定土壤pH采用电位法(水∶土质量比2.5∶1)测定. 土壤有机碳(SOC)和全氮(TN)分别采用重铬酸钾外加热法和凯氏定氮法测定,微生物生物量碳(MBC)和微生物生物量氮(MBN)采用氯仿熏蒸法测定. 速效氮(AN)采用1 mol·L-1 KCl浸提-流动分析仪(5000,SKALAR,荷兰)、速效磷(AP)采用0.5 mol·L-1 NaHCO3浸提-钼锑抗比色法测定、速效钾(AK)采用1 mol·L-1 NH4OAc浸提-火焰光度计法测定[14].
1.4.2 微生物DNA提取、PCR扩增及测序土壤样品送至上海美吉生物科技有限公司测序. 参照E.Z.NA.® Soil DNA Kit提取试剂盒(OmegaBio-tek,美国)的说明书进行微生物群落总DNA抽提,使用1%的琼脂糖凝胶电泳检测DNA的提取质量,使用NanoDrop ND-2000(Thermo Scientific,美国)紫外分光光度计测定DNA浓度和纯度. 对细菌的16S rRNA的V3⁃V4区利用通用引物338F(5'-ACTCC TACGGGAGGCAGCA-3')和806R(5'-GGACTACHVG GGTWTCTAAT-3')进行PCR扩增; 对真菌ITS的ITS1区利用通用引物ITS1F(5'-CTTGGTCATTTAGGGAA GTAA-3')和ITS2R(5'-GCTGCGTCTTCATCGATGC-3')进行PCR扩增[15]. 本研究利用Illumina NextSeq 2000平台进行测序,并使用Fastp 0.19.6软件对双端原始测序序列进行质控[16].
1.5 数据分析数据统计分析在Excel 2016和DPS 9.01中进行,采用Origin 2025软件绘图; 所有的数据分析均在美吉生物云平台(https://cloud.majorbio.com)进行,采用Mothur 1.30.2软件计算OTU水平物种的Alpha多样性指数; 基于Bray-Curtis距离的PCoA分析,并通过PERMANOVA非参数检验分析确定微生物的组间差异; 运用线性判别分析效应大小(LEfSe)的方法,来估算每个物种丰度对差异效果影响的大小; 使用Networkx 1.11构建微生物共生网络,通过Gephi 0.9.2完成网络的可视化.
2 结果与分析 2.1 土壤微生物群落多样性特征分析 2.1.1 Alpha多样性变化图 2所示,与传统枸杞单作(M)处理相比,枸杞-肥田萝卜覆盖种植(Ⅰ)处理显著提高了土壤细菌群落的Shannon指数(增幅2.33%,P < 0.05),而Ace、Sobs和Chao1指数虽分别增加0.26%、7.39%和1.42%,但未达显著水平; 真菌群落方面,Ⅰ处理显著提高了Ace、Sobs和Chao1指数,增幅分别为19.02%、14.59%和31.93%(P < 0.05),Shannon指数亦增加3.88%. 在不同施肥水平下,与不施肥IO0处理相比,IO2处理的细菌群落Ace指数、Chao1指数分别显著增加6.33%和6.21%(P < 0.05). 与MO0处理相比,MO1处理的细菌和真菌Chao1指数均显著提升(P < 0.05),而MO2处理的细菌的Shannon指数与真菌的Ace指数、Sobs指数均显著降低(P < 0.05).

|
(a)~(d):细菌,(e)~(h):真菌,不同小写字母表示0.05水平差异显著 图 2 不同处理模式下土壤微生物群落Alpha多样性 Fig. 2 Alpha diversity of soil microbial communities under different treatment modes |
基于Bray-Curtis距离的PCoA分析结果显示,不同种植模式下土壤微生物群落结构存在显著差异. 图 3(a)显示,在细菌群落中,主坐标轴PC1和PC2分别解释了22.5%和11.3%的变异,且组间差异显著(P=0.04). 真菌群落结构分异更为明显,由图 3(b)可知,PC1和PC2的解释率分别为19.14%和15.38%,组间差异显著(P=0.002). 各处理组的真菌样本点在排序上分布距离较远且无重叠现象,表明种植模式对真菌群落构建具有强烈影响.

|
图 3 不同处理模式下土壤微生物群落Beta多样性 Fig. 3 Beta diversity of soil microbial communities under different treatment modes |
在门水平上,各处理土壤细菌群落中相对丰度前10的优势菌门如图 4(a)所示,主要包括变形菌门(Proteobacteria,16%~18%)、放线菌门(Actinobacteriota,13%~20%)、绿弯菌门(Chloroflexi,16%~18%)、酸杆菌门(Acidobacteriota,14%~21%)和厚壁菌门(Firmicutes,11%~26%). 与单作(M)处理相比,覆盖种植(Ⅰ)处理下厚壁菌门的相对丰度有所降低,而变形菌门、放线菌门、绿弯菌门和酸杆菌门的占比均呈现上升趋势. 其中,IO1处理的放线菌门相对丰度最高,较MO1处理显著提高7%.

|
(a)1.Actinobacteriota,2.Acidobacteriota,3.Chloroflexi,4.Gemmatimonadota,5.Proteobacteria,6.Bacteroidota,7.Firmicutes,8.Patescibacteria,9.Nitrospirota,10.Myxococcota,11.others; (b)1.Calcarisporiellomycota,2.Blastocladiomycota,3.Basidiomycota,4.unclassified_k__Fungi,5.Ascomycota,6.Glomeromycota,7.Mortierellomycota,8.Olpidiomycota,9.Rozellomycota,10.Chytridiomycota,11.others 图 4 不同处理模式下门水平下土壤微生物群落组成 Fig. 4 Composition of soil microbial communities at the phylum level under different treatment modes |
在真菌方面[图 4(b)],优势菌门包括子囊菌门(Ascomycota,12%~19%)、担子菌门(Basidiomycota,2%~35%)和被孢霉门(Mortierellomycota,4%~27%). 与M处理相比,Ⅰ处理下担子菌门的相对丰度显著增加,以IO1处理尤为突出,其担子菌门丰度较MO1处理提高了18%.
2.3 土壤微生物物种LEfSe差异分析LEfSe(LDA > 2.5,P < 0.05)的判别分析结果表明,各处理组中显著富集的微生物物种存在明显差异. 在细菌群落中,6个处理共检测到42个显著差异分类单元,其数量分布为:MO0=4,MO1=17,MO2=15,IO0=2,IO1=0,IO2=4. 其中,各处理中LDA得分最高的指示物种分别为:MO0为目水平Lachnospirales(LDA=2.78),MO1为纲水平Clostridia(LDA=3.65),MO2为目水平Thermoactinomycetales(LDA=3.66),IO0为科水平Promicromonosporaceae(LDA=2.83),IO2为属水平Algoriphagus(LDA=2.68)[图 5(a)].

|
图 5 不同处理下土壤微生物LEfSe分析 Fig. 5 LEfSe analysis of soil microorganisms under different treatments |
在真菌群落中,共检测到40个显著差异分类单元,其数量分布为:MO0=2,MO1=5,MO2=4,IO0=13,IO1=6,IO2=10. 各处理组中LDA得分最高的指示物种分别为:MO0为属水平Entoloma(LDA=3.09),MO1为科水平Agaricaceae(LDA=4.48),MO2为目水平Onygenales(LDA=3.74),IO0为纲水平Tremellomycetes(LDA=4.97),IO1为属水平Olpidium(LDA=4.21),IO2为目水平Pezizales(LDA=4.57)[图 5(b)].
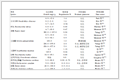
2.4 环境因子与土壤微生物的相关性分析方差分析结果表明(表 1),与单作(M)处理相比,覆盖种植(Ⅰ)处理下土壤速效磷(AP)、速效氮(AN)和微生物量碳(MBC)分别显著提高29.89%、74.33%和23.60%,pH值显著降低4.31%(P < 0.05); 微生物量氮(MBN)、有机碳(SOC)、速效钾(AK)和全氮(TN)均有所上升,但未达显著水平. 未种植覆盖作物条件下,与MO0处理相比,MO1处理土壤TN、AN和MBN均显著增加,增幅为66.24%、109.07%和110.13%,MO2处理土壤pH显著降低3.79%,而土壤TN、AN、AP、AK和MBC均显著增加,其中速效氮增幅为126.58%; 种植覆盖作物条件下,与IO0处理相比,IO1处理土壤AN、MBC和MBN均显著增加,增幅为12.42%、58.14%和77.21%,pH显著降低3.52%; IO2处理土壤MBC显著增加44.73%(P < 0.05).
|
表 1 覆盖和有机肥处理下土壤理化性质特征1) Table 1 Characteristics of soil physicochemical properties under cover crops and organic fertilizer treatments |
冗余分析(RDA)进一步揭示了土壤环境因子对微生物群落结构的影响. 对于细菌群落[图 6(a)],RDA1和RDA2轴共解释了28.67%的变异,其中pH和AK为显著影响因子(P < 0.05),pH对细菌群落变异解释度最高. 对于真菌群落[图 6(b)],两个排序轴累计解释26.56%的变异,AP虽向量长度较大,但其影响未达显著性水平.

|
图 6 土壤环境因子-微生物RDA分析 Fig. 6 RDA analysis of soil environmental factors and soil microorganisms |
为进一步探究土壤微生物类群与环境因子的关系,将丰度前10的菌门与土壤环境因子进行了相关性分析. 在细菌中[图 7(a)],放线菌门(Actinobacteriota)与AN和AP呈显著正相关,与pH呈显著负相关,厚壁菌门(Firmicutes)则与AN显著负相关(P < 0.05); 在真菌中[图 7(b)],油壶菌门(Olpidpmycota)与AN呈显著正相关,与pH呈显著负相关,被孢霉门(Mortierellomycota)与MBN呈显著负相关(P < 0.05).

|
*表示P < 0.05; **表示P < 0.01; ***表示P < 0.001 图 7 环境因子与土壤微生物的相关性 Fig. 7 Correlation between environmental factors and soil microorganisms |
基于FAPROTAX对细菌群落进行功能注释,共识别出56种子功能. 选取丰度前30的功能进行可视化展示,如图 8(a)所示,化能异养和好氧化能异养在全部6个处理中均占据主导功能类型,且在IO1处理中相对丰度最高. 各处理功能特征差异表现为:MO0处理中脂肪族非甲烷碳氢化合物降解功能最弱(相对丰度 < 35); MO1处理在脂肪族非甲烷碳氢化合物降解和亚硝酸盐氧化功能方面显著偏低(< 35); IO0处理则主要表现为亚硝酸盐氧化功能不足(< 35).

|
(a)细菌,(b)真菌 图 8 不同处理中土壤微生物功能预测 Fig. 8 Functional prediction of soil microorganisms in different treatments |
基于FUNGuild的真菌功能预测结果显示[图 8(b)],共鉴定出18种营养类型,相对丰度前5的类别包括:植物病原菌、未定义腐生菌、未知功能类群、动物病原-内生-地衣寄生-植物病原-土壤腐生-木材腐生功能群. 以及内生-凋落物腐生-土壤腐生-未定义腐生多功能群. 与单作处理(M)相比,覆盖种植(Ⅰ)处理下植物病原真菌的相对丰度普遍降低. 具体而言,MO0以植物病原(30.95%)、未定义腐生(24.93%)和未知功能(10.76%)真菌为主; MO1中未定义腐生真菌丰度最高(24.63%),其次为植物病原和未知类群; MO2中以植物病原(33.41%)、未定义腐生(20.05%)及内生-凋落物腐生-土壤腐生-未定义腐生多功能群(9.94%)为主要组分; IO0以未知功能类群占优; IO1则在动物病原功能类群中相对丰度最高,达20.51%.
2.6 生态网络分析为解析不同种植模式下土壤细菌与真菌群落的生态互作关系,研究选取属水平相对丰度前200的微生物构建共生网络,并基于拓扑参数评估群落的复杂性与稳定性(表 2).
|
|
表 2 生态网络拓扑参数 Table 2 Topological parameters of ecological networks |
在细菌网络中,与单作(M)处理相比,间作(Ⅰ)处理虽在一定程度上降低了网络复杂性,但显著提高了物种间的正相关连接比例,同时减少了负相关关系,表明微生物协作性增强、竞争作用减弱. 在真菌网络中,Ⅰ处理显著增加了总连接数、平均连接度与边数,表明其网络结构更为稠密、节点间联系更加紧密,生态系统稳定性和功能冗余性可能更高.
进一步基于聚类系数识别出网络中具有多重互作关系的前5个关键属,并将其确定为重点类群(图 9). 以上类群通过其显著的生态影响力(而非绝对丰度),在维持网络结构和功能稳定性方面发挥核心作用.

|
节点表示物种,节点的大小表示聚类系数的大小,相同颜色的节点形成一个模块; 柱状图表示每个模块在整个共生网络中的比例; 所示物种均为该共现网络中的关键类群 图 9 不同种植模式下枸杞根区微生物生态网络 Fig. 9 Microbial ecological network in the rhizosphere of wolfberry under different planting modes |
方差分析结果表明(图 10),与单作(M)处理相比,枸杞/肥田萝卜覆盖种植(Ⅰ)处理显著提高了枸杞果实横径、纵径、单粒重及产量(P < 0.05). 在横径方面,IO0较MO0提高6.24%,IO1处理效果最优(9.86 mm); 纵径方面,IO0较MO0提高6.51%,IO2处理最优(17.71 mm); 产量方面,IO1较MO1提高10.11%(P < 0.05).

|
不同小写字母表示0.05水平差异显著 图 10 不同处理下枸杞果实品质与产量变化 Fig. 10 Changes in fruit quality and yield of wolfberry under different treatments |
土壤微生物群落对作物体系多样化的响应存在显著差异[17,18]. 本研究发现,与枸杞单作(M)相比,枸杞-肥田萝卜间作(Ⅰ)处理显著提高了土壤微生物的Alpha多样性指数(图 2),且真菌群落的响应较细菌更为明显. 这可能源于间作绿肥通过根系分泌物与凋落物输入改变了土壤碳源组成,优先刺激了真菌的定殖与代谢活性; 而细菌群落由于功能冗余度较高,对短期种植制度变化的响应相对滞后[19]. 在门水平上,Ⅰ处理下变形菌门(Proteobacteria)、放线菌门(Actinobacteriota)、绿弯菌门(Chloroflexi)和酸杆菌门(Acidobacteriota)的占比均有所上升(图 4). 变形杆菌门土壤细菌中重要的门类,多数属于富营养型,其丰度增加与Ⅰ处理下速效氮(AN)、速效磷(AP)含量显著提升直接相关[20]. 放线菌门则因其广泛的有机质降解能力和抗生素产生能力,被广泛认为是土壤健康的重要生物指示类群. 在植被群落健康、土壤肥力较高的生境中,土壤细菌群落中酸杆菌门与绿弯菌门的相对丰度呈逐渐上升趋势,该变化与其类群特有的营养代谢特性密切相关[21],这与本研究结果一致. 真菌群落方面,优势菌门包括子囊菌门(Ascomycota)、担子菌门(Basidiomycota)和被孢霉门(Mortierellomycota). Ⅰ处理中担子菌门比例显著上升,该类群作为关键的分解者,在土壤有机质转化和养分循环中起重要作用[22]. Beta多样性分析进一步表明,Ⅰ处理下细菌和真菌群落结构均显著偏离M处理(图 3),说明间作模式通过调节土壤理化性质推动了微生物群落的定向演替. 该结果与Zhang等[23]研究的结果一致,即作物多样性增加可通过根际微环境调控,重塑微生物群落结构并优化其功能分工.
3.2 覆盖种植对微生物群落网络稳定性的影响微生物共现网络分析是解析土壤微生物种间互作关系及评估群落结构稳定性的有效工具,可作为衡量土壤生态系统功能与健康状态的重要指标[24]. 本研究通过构建微生物共生网络发现,Ⅰ处理下真菌网络中正相关连接的比例高达80.1%,显著高于单作处理(M)(表 2),表明覆盖种植显著增强了真菌群落内部的协同互惠关系. 这种以合作为主导的互作模式可能源于作物多样化输入了更为丰富的有机资源,从而支持了更高复杂性与连通性的微生物网络构建. 此类结构通常具有更高的功能冗余和系统恢复力,有助于缓冲环境扰动带来的影响[25],这一现象与Huang等[26]在茶园间作系统中的发现一致. 在细菌群落方面,Ⅰ处理下细菌网络的模块化指数显著提高,表明其形成了更为明确和稳定的功能模块结构,较高的模块化程度通常代表更高效的能物循环路径和更强的结构抗干扰能力此外,Ⅰ处理细菌网络正相关连接比例(55.46%)略高于M处理. 上述结果共同支持“复杂性-稳定性”理论在土壤微生物生态系统中的适用性,即较高的模块化结构和功能冗余性可显著增强微生物群落的稳定性和生态韧性[27]. 本研究从微生物网络结构的角度,为覆盖种植模式提升土壤生态系统稳定性和连作障碍缓解机制提供了直接证据.
3.3 覆盖种植对土壤理化性质的调控效应及微生物响应枸杞/肥田萝卜覆盖种植模式显著改善了土壤养分的生物有效性. 与单作(M)相比,间作(Ⅰ)处理使土壤速效磷(AP)和速效氮(AN)含量分别显著提高29.89%和74.33%(P < 0.05),微生物量碳(MBC)增加23.60%(表 1). 这一结果与Blanco-Canqui等[28]对温带土壤的研究结论一致. 肥田萝卜作为绿肥作物,可通过根系分泌柠檬酸、苹果酸等有机酸活化土壤中的难溶性磷,将其转化为植物有效形态[29]; 同时,其植株残体在腐解过程中促进氮素的矿化释放,从而直接提高AN含量[30]. 土壤有机碳(SOC)和全氮(TN)在试验周期(4a)内未发生显著变化,可能与有机质积累尚未达到显著水平有关. 此外,Ⅰ处理使土壤pH值显著降低4.31%(P < 0.05),可能与微生物分解绿肥残体过程中产生的乙酸、丙酸等有机酸积累有关,这一变化有助于缓解土壤盐碱化进程[31].
冗余分析(RDA)表明,土壤环境因子与微生物群落结构之间存在显著关联(图 6). 其中,pH值是影响细菌群落多样性的最主要环境因子,对其变异解释度最高,该结果与胡永庆等[32]研究结果一致. 具体而言,放线菌门(Actinobacteria)与AP、AN呈显著正相关,与pH值呈显著负相关[P < 0.05,图 7(a)]. 放线菌可分泌多种水解酶(如纤维素酶和蛋白酶),在偏酸性条件下更有利于分解肥田萝卜残体中的木质纤维素,促进养分释放,形成“微生物活化⁃养分供给”正反馈循环[33]. 真菌群落亦表现出显著的环境响应特征. 油壶菌门(Olpidiomycota)与AN呈显著正相关[P < 0.05,图 7(b)],可能反映其对氮素的较高需求; 被孢霉门(Mortierellomycota)则与微生物量氮(MBN)呈显著负相关,暗示该类群在氮转化过程中的特定生态功能或资源竞争策略.
3.4 果实品质和产量的变化与土壤菌群的关系及其内在机制覆盖作物作为一种高效的土壤保育措施,其深广且强健的根系能够有效穿透压实土层[34],改善土壤物理结构. 结合肥料施用,可进一步促进团粒结构形成,减轻土壤容重,增强孔隙度; 同时通过根系分泌物与残茬归还,提升有机质含量和养分库容,支持有益微生物群落构建并抑制病原菌增殖,从而维持土壤健康并提高后茬作物产量[35],本研究结果表明,覆盖作物处理(Ⅰ处理)下枸杞果实产量和单果重分别显著增加3.35%和5.09%,差异分析确定IO1为最优施肥水平(图 10),其内在机制主要可归纳为以下三方面.
首先,微生物驱动的养分循环过程强化了植物营养供给[36],Ⅰ处理下土壤速效氮(AN)、速效磷(AP)含量显著上升,与微生物功能特征演变密切相关. FAPROTAX功能预测显示[图 8(a)],好氧异养及尿素分解功能显著增强,表明微生物介导的有机质矿化进程加速,促使还田覆盖作物残体中的有机氮、磷迅速转化为无机形态,供作物直接吸收[37]. 尤其值得注意的是,LEfSe分析识别出放线菌门中的Promicromonosporaceae和Algoriphagus作为覆盖处理的指示物种,其富集直接印证上述功能转变. 以上类群作为降解复杂有机物的关键功能微生物[38],其代谢活动显著增强土壤养分活化效率,同时其产生的拮抗物质也有助于构建抑制土传病害的生物屏障[39]. 另一方面,在IO0与IO2处理中,真菌指示类群Tremellomycetes和Pezizales的出现,指示土壤真菌群落从连作条件下的致病态向以有机质分解和共生互利为特征的健康状态转变. 以上关键物种作为高复杂度、高连通性微生物共生网络的核心模块,共同驱动土壤健康与作物产量提升. 此类微生物功能强化所实现的“生物施肥效应”,为枸杞营养吸收和产量品质形成奠定了坚实基础[40].
第二,覆盖作物处理显著缓解了连作障碍的核心诱因——土传病原菌积累[41],FUNGuild功能注释结果显示[图 8(b)],Ⅰ处理中植物病原真菌相对丰度显著降低,与Wan等[42]报道一致. 此外,共生网络分析表明Ⅰ处理下真菌网络中正相关连接比例高达80.1%,显著降低枸杞根腐病等土传病害的发生风险,从而保障植株正常生长及养分向生殖器官的高效转运.
第三,植物-微生物互作与激素信号介导的系统抗性协同促进作物生长. 多种根际促生菌及丛枝菌根真菌能够合成植物激素(如IAA)或诱导系统抗性,进而促进根系发育,增强水分与养分吸收效率[43]. 陈永旗等[44]报道多种放线菌可分泌IAA等促生物质,本研究LEfSe分析结果同样显示覆盖处理显著富集了放线菌门等具植物促生潜力的类群,进一步从群落层面验证了激素介导的促生机制.
4 结论(1)枸杞/肥田萝卜覆盖种植可通过提升土壤微生物多样性及优化群落结构,有效缓解连作障碍.
(2)该模式显著增强土壤养分转化功能,降低病原真菌风险,为枸杞健康生长创造有利根际环境.
(3)微生物互作网络稳定性增强,系统韧性提高,有助于维持土壤生态系统功能持续稳定.
(4)覆盖种植结合中量施肥处理可显著提高枸杞果实形态指标与产量,是实现枸杞绿色增产的可行栽培策略.
| [1] | 宁夏回族自治区林业和草原局, 国家林业和草原局发展研究中心. 中国现代枸杞产业高质量发展报告[M]. 北京: 中国林业出版社, 2024. |
| [2] |
何梦园, 沈聪, 张俊华, 等. 连作对枸杞根区土壤理化性质、农药残留和微生物群落的影响[J]. 环境科学, 2024, 45(9): 5578-5590. He M Y, Shen C, Zhang J H, et al. Effects of continuous cropping on the physiochemical properties, pesticide residues, and microbial community in the root zone soil of Lycium barbarum[J]. Environmental Science, 2024, 45(9): 5578-5590. |
| [3] | Na X F, Ma S L, Ma C X, et al. Lycium barbarum L. (goji berry) monocropping causes microbial diversity loss and induces Fusarium spp. enrichment at distinct soil layers[J]. Applied Soil Ecology, 2021, 168. DOI:10.1016/j.apsoil.2021.104107 |
| [4] | Jassim Y A, Chabuk H A H, Al-Yassiry Z A N. Soil microorganisms: characteristics, importance and their functional role[J]. Journal of Biology and Nature, 2023, 15(1): 14-19. |
| [5] | Ney L, Franklin D, Mahmud K, et al. Impact of inoculation with local effective microorganisms on soil nitrogen cycling and legume productivity using composted broiler litter[J]. Applied Soil Ecology, 2020, 154. DOI:10.1016/j.apsoil.2020.103567 |
| [6] |
单文俊, 王庆贵, 闫国永, 等. 基于土壤微生物的碳氮互作效应综述[J]. 中国农学通报, 2016, 32(23): 65-71. Shan W J, Wang Q G, Yan G Y, et al. Interaction effects of soil microbial carbon and nitrogen: a review[J]. Chinese Agricultural Science Bulletin, 2016, 32(23): 65-71. |
| [7] |
朱永兴, 韩学宏, 武东坡, 等. 枸杞道地性与其根际微生物的研究进展[J]. 中国农学通报, 2013, 29(34): 40-43. Zhu Y X, Han X H, Wu D P, et al. The advances of the genuineness of Lyceum bararum L. and rhizosphere microorganism[J]. Chinese Agricultural Science Bulletin, 2013, 29(34): 40-43. |
| [8] | Hartmann M, Six J. Soil structure and microbiome functions in agroecosystems[J]. Nature reviews Earth & environment, 2023, 4(1): 4-18. |
| [9] |
孔旭, 陈玉萌, 赵志远, 等. 生草覆盖下有机无机肥配施对苹果园土壤磷形态分布的影响[J]. 水土保持学报, 2023, 37(2): 336-342. Kong X, Chen Y M, Zhao Z Y, et al. Effects of combined application of organic and inorganic fertilizers on soil phosphorus distribution in apple orchard under grass[J]. Journal of Soil and Water Conservation, 2023, 37(2): 336-342. |
| [10] | Wang R T, Liu J X, Jiang W Y, et al. Metabolomics and microbiomics reveal impacts of rhizosphere metabolites on alfalfa continuous cropping[J]. Frontiers in Microbiology, 2022, 13. DOI:10.3389/fmicb.2022.833968 |
| [11] | Kim N, Zabaloy M C, Guan K Y, et al. Do cover crops benefit soil microbiome? A meta-analysis of current research[J]. Soil Biology and Biochemistry, 2020, 142. DOI:10.1016/j.soilbio.2019.107701 |
| [12] |
任嘉欣, 黎昊, 兰翔伟, 等. 覆盖作物多样性对橘园土壤理化性质的影响及综合评价[J]. 中国草地学报, 2023, 45(9): 98-106. Ren J X, Li H, Lan X W, et al. Effects of cover crop diversity on soil physicochemical properties in citrus orchards and a comprehensive evaluation[J]. Chinese Journal of Grassland, 2023, 45(9): 98-106. |
| [13] | Wang F, Li W H, Lin Y M, et al. Soil organic carbon pool and the production of Goji berry (Lycium barbarum L.) as affected by different fertilizer combinations under drip fertigation[J]. Frontiers in Environmental Science, 2022, 10. DOI:10.3389/fenvs.2022.933124 |
| [14] | 鲍士旦. 土壤农化分析[M]. 北京: 中国农业出版社, 2000, (第三版). |
| [15] | Adams R I, Miletto M, Taylor J W, et al. Dispersal in microbes: fungi in indoor air are dominated by outdoor air and show dispersal limitation at short distances[J]. The ISME journal, 2013, 7(7): 1262-1273. DOI:10.1038/ismej.2013.28 |
| [16] | Magoč T, Salzberg S L. FLASH: fast length adjustment of short reads to improve genome assemblies[J]. Bioinformatics, 2011, 27(21): 2957-2963. DOI:10.1093/bioinformatics/btr507 |
| [17] | Zak D R, Holmes W E, White D C, et al. Plant diversity, soil microbial communities, and ecosystem function: are there any links?[J]. Ecology, 2003, 84(8): 2042-2050. DOI:10.1890/02-0433 |
| [18] |
马福林, 马玉花. 干旱胁迫对植物的影响及植物的响应机制[J]. 宁夏大学学报(自然科学版), 2022, 43(4): 391-399. Ma F L, Ma Y H. Effect of drought stress on plants and their response mechanism[J]. Journal of Ningxia University (Natural Science Edition), 2022, 43(4): 391-399. |
| [19] | Suyal D C, Soni R, Singh D K, et al. Microbiome change of agricultural soil under organic farming practices[J]. Biologia, 2021, 76(4): 1315-1325. DOI:10.2478/s11756-021-00680-6 |
| [20] |
徐文静, 张宇亭, 魏勇, 等. 长期施肥对稻麦轮作紫色土有机碳组分及酶活性的影响[J]. 水土保持学报, 2022, 36(2): 292-299. Xu W J, Zhang Y T, Wei Y, et al. Effects of long-term fertilization on organic carbon fractions and enzyme activities in purple soil under rice wheat rotation[J]. Journal of Soil and Water Conservation, 2022, 36(2): 292-299. |
| [21] |
邹爽, 武奥琳, 潘住财, 等. 不同施肥处理对柚园土壤化学及微生物特性的影响[J]. 核农学报, 2025, 39(4): 827-838. Zou S, Wu A L, Pan Z C, et al. Effects of different fertilization treatments on soil chemical and microbial characteristics in pomelo orchards[J]. Journal of Nuclear Agricultural Sciences, 2025, 39(4): 827-838. |
| [22] |
周斯豪, 王美琦, 宋瑶, 等. 长期秸秆还田对下茬还田秸秆的降解及土壤微生物群落的影响[J]. 环境科学, 2025, 46(1): 532-542. Zhou S H, Wang M Q, Song Y, et al. Legacy effects of long-term straw returning on straw degradation and microbial communities of the aftercrop[J]. Environmental Science, 2025, 46(1): 532-542. |
| [23] | Zhang B G, Zhang J, Liu Y, et al. Co-occurrence patterns of soybean rhizosphere microbiome at a continental scale[J]. Soil Biology and Biochemistry, 2018, 118: 178-186. DOI:10.1016/j.soilbio.2017.12.011 |
| [24] | Berry D, Widder S. Deciphering microbial interactions and detecting keystone species with co-occurrence networks[J]. Frontiers in Microbiology, 2014, 5. DOI:10.3389/fmicb.2014.00219 |
| [25] | Hernandez D J, David A S, Menges E S, et al. Environmental stress destabilizes microbial networks[J]. The ISME Journal, 2021, 15(6): 1722-1734. DOI:10.1038/s41396-020-00882-x |
| [26] | Huang X H, Zheng Y T, Li P F, et al. Organic management increases beneficial microorganisms and promotes the stability of microecological networks in tea plantation soil[J]. Frontiers in Microbiology, 2023, 14. DOI:10.3389/fmicb.2023.1237842 |
| [27] | Guseva K, Darcy S, Simon E, et al. From diversity to complexity: microbial networks in soils[J]. Soil Biology and Biochemistry, 2022, 169. DOI:10.1016/j.soilbio.2022.108604 |
| [28] | Blanco-Canqui H, Shaver T M, Lindquist J L, et al. Cover crops and ecosystem services: insights from studies in temperate soils[J]. Agronomy Journal, 2015, 107(6): 2449-2474. DOI:10.2134/agronj15.0086 |
| [29] | White C M, Weil R R. Forage radish cover crops increase soil test phosphorus surrounding radish taproot holes[J]. Soil Science Society of America Journal, 2011, 75(1): 121-130. DOI:10.2136/sssaj2010.0095 |
| [30] | Elhakeem A, Porre R J, Hoffland E, et al. Radish-based cover crop mixtures mitigate leaching and increase availability of nitrogen to the cash crop[J]. Field Crops Research, 2023, 292. DOI:10.1016/j.fcr.2022.108803 |
| [31] | Li P, Jia L, Chen Q Q, et al. Adaptive evaluation for agricultural sustainability of different fertilizer management options for a green manure-maize rotation system: Impacts on crop yield, soil biochemical properties and organic carbon fractions[J]. Science of the Total Environment, 2023, 908. DOI:10.1016/j.scitotenv.2023.168170 |
| [32] |
胡永庆, 高明, 丁馨茹, 等. 酒糟灰渣对酸性紫色土细菌群落结构的影响[J]. 环境科学, 2025, 46(8): 5369-5378. Hu Y Q, Gao M, Ding X R, et al. Impact of distiller's grain ash on the bacterial community structure of acidic purple soil[J]. Environmental Science, 2025, 46(8): 5369-5378. |
| [33] | Karimi B, Maron P A, Boure N C P, et al. Microbial diversity and ecological networks as indicators of environmental quality[J]. Environmental Chemistry Letters, 2017, 15(2): 265-281. DOI:10.1007/s10311-017-0614-6 |
| [34] | Welch R Y, Behnke G D, Davis A S, et al. Using cover crops in headlands of organic grain farms: effects on soil properties, weeds and crop yields[J]. Agriculture, 2016, 216: 322-332. |
| [35] | Wang G Z, Van der Putten W H, Klironomos J, et al. Steering plant-soil feedback for sustainable agriculture[J]. Science, 2025, 389(6758). DOI:10.1126/science.ads2506 |
| [36] | Koch H, Sessitsch A. The microbial-driven nitrogen cycle and its relevance for plant nutrition[J]. Journal of Experimental Botany, 2024, 75(18): 5547-5556. DOI:10.1093/jxb/erae274 |
| [37] | Kallenbach C M, Frey S D, Grandy A S. Direct evidence for microbial-derived soil organic matter formation and its ecophysiological controls[J]. Nature Communications, 2016, 7(1). DOI:10.1038/ncomms13630 |
| [38] | Zhao Z B, He J Z, Quan Z, et al. Fertilization changes soil microbiome functioning, especially phagotrophic protists[J]. Soil Biology and Biochemistry, 2020, 148. DOI:10.1016/j.soilbio.2020.107863 |
| [39] | Mitra D, Mondal R, Khoshru B, et al. Actinobacteria-enhanced plant growth, nutrient acquisition, and crop protection: advances in soil, plant, and microbial multifactorial interactions[J]. Pedosphere, 2022, 32(1): 149-170. DOI:10.1016/S1002-0160(21)60042-5 |
| [40] | Jacoby R, Peukert M, Succurro A, et al. The role of soil microorganisms in plant mineral nutrition—current knowledge and future directions[J]. Frontiers in Plant Science, 2017, 8. DOI:10.3389/fpls.2017.01617 |
| [41] | Singh B K, Jiang G F, Wei Z, et al. Plant pathogens, microbiomes, and soil health[J]. Trends in Microbiology, 2025, 33(8): 887-902. DOI:10.1016/j.tim.2025.03.013 |
| [42] | Wan P X, Zhang N N, Li Y F, et al. Reducing plant pathogens could increase crop yields after plastic film mulching[J]. Science of The Total Environment, 2022, 861. DOI:10.1016/j.scitotenv.2022.160615 |
| [43] | Backer R, Rokem J S, Ilangumaran G, et al. Plant growth-promoting rhizobacteria: context, mechanisms of action, and roadmap to commercialization of biostimulants for sustainable agriculture[J]. Frontiers in Plant Science, 2018, 9. DOI:10.3389/fpls.2018.01473 |
| [44] |
陈永旗, 李志文, 李鑫, 等. 黑土区大豆根际土壤放线菌的分离与功能研究[J]. 生物技术通报, 2025, 41(5): 255-266. Chen Y Q, Li Z W, Li X, et al. Isolation and function study of actinomycetes from rhizosphere soil of soybean in the black soil region[J]. Biotechnology Bulletin, 2025, 41(5): 255-266. |