 2026, Vol. 47


2. 贵州大学资源与环境工程学院,贵阳 550025;
3. 贵州喀斯特环境生态系统教育部野外科学观测研究站,贵阳 550025;
4. 上海国惠环境科技股份有限公司,上海 201100
 , WU Yong-gui2,3
 , LU Hong-pei2 , ZHANG Peng2 , YANG Ying-fang2 , LUO Can1 , LIANG Wan4 , MA Xing4
2. College of Resources and Environmental Engineering, Guizhou University, Guiyang 550025, China;
3. Field Scientific Observation and Research Station of Karst Environment Ecosystem, Ministry of Education, Guiyang 550025, China;
4. Shanghai Guohui Environmental Technology Group Co., Ltd., Shanghai 201100, China
随着我国白酒酿造业的蓬勃发展,处理白酒废水过程中产生的副产物酿酒污泥(distillery sewage sludge,DSS)年产量超过2 500万t[1]. 作为一类高营养低污染有机废弃物[2,3],DSS的处置与资源化利用已成为行业可持续发展的关键挑战之一. 高粱是重要的酿酒原料,作为高产、根系发达的禾本科作物[4],其对养分尤其氮素需求量较高[5],长时间种植会导致土壤养分失衡等问题[6]. 因此,将DSS进行还田利用,既能减少环境污染,又能补充土壤氮、磷、有机质等养分,提升土壤质量[7],契合“土壤-高粱-酿酒副产物-土壤”酿酒行业产业链资源循环利用模式与农业绿色发展战略需求.
土壤微生物介导的碳循环是土壤肥力与生态系统功能维持的核心,其群落结构与功能活性直接影响碳的固定、转化与释放[8]. 微生物通过分解有机质、固存碳以及调节氮、磷等关键养分的有效性,可显著促进土壤养分循环与生态生产力的提升[9]. 已有研究表明,有机肥有利于提升土壤有机碳含量与酶活性,进而调节微生物群落结构与代谢活动,推动碳循环过程[10,11]. 在碳循环特定的代谢途径中,功能基因的丰度代表着微生物的功能潜力[12],并与土壤养分密切相关[13,14]. Tang等[15]研究发现长期或高量施用有机肥显著改变土壤微生物的活性、丰度及群落结构,并可提高土壤养分含量,促进细菌、古菌及功能基因的丰度,增强C、N、P、S等元素循环速率,为微生物生长提供底物. 在此背景下,科学合理的施肥方式能有效提升土壤养分利用效率、优化根际微生态结构与促进土壤功能恢复,特别是深施法可改善养分分布、减少氮损失[16~18],施入形态也被证实是影响养分释放速率和微生物响应的重要因素[19~21]. 然而,当前已有研究仅限于DSS作为普通有机肥的农用效果,对施用的物理形态(如球状、粉末状)与施肥位置(如底施、侧施、混施)这两种关键调控因子如何调控高粱根际微环境,进而影响土壤碳循环功能微生物群落结构与功能基因表达缺乏深入探究.
因此,以酿酒专用高粱根际土壤为研究对象,采用宏基因组学技术,旨在阐明DSS不同施用方式对土壤养分以及碳循环功能基因的影响,以期为白酒污泥高效的农业利用提供理论依据与科学支撑.
1 材料与方法 1.1 试验设计及土壤采样本试验在贵州省贵阳市贵州大学室内试验场地(26°26′N,106°39′E)进行,区域属亚热带湿润温和气候,年平均气温15.3℃,平均海拔为1 150 m. 采集未受干扰的天然草地的顶部0~20 cm土层用于盆栽试验.
本研究中的酿酒污泥采自于贵州省遵义市,该酿造区的白酒酿造废水采用A2O工艺处理,剩余污泥通过板框压滤机产生,通过模具压制为直径5 cm球状DSS肥料以及使用研磨仪粉碎至直径为2 mm粉末得到粉末状DSS肥料. 本研究设计了4种施用方式,分别为未施肥(CK)、球形底施(BF)、球形侧施(LF)和混合粉末(MF),其中的BF具体操作方法为将DSS肥料放置在种子正下方8 cm深度处;LF是将DSS肥料放置在种子水平两侧8 cm的横向距离处;MF则是将粉末状DSS肥料均匀分布在0~15 cm深度的土壤层中(试验现场见图 1,正视和俯视布局示意见图 2). 通过不同施用方式将酿酒污泥肥料施用于土壤中,每盆土重15 kg,每个处理重复3次,根据对高粱生长条件下DSS施用量的早期调查,在该盆栽试验中的所有处理均以每盆144 g施用,相当于15 000 kg·hm-2的田间施用量.

|
图 1 试验现场 Fig. 1 Experimental site |

|
图 2 DSS不同加工形态-位置协同施用 Fig. 2 Coordinated application of DSS with different material forms and spatial placement |
在2023年11月拔取了4个处理组(每组3个重复)的盆栽高粱,用毛刷收集附在根部的土样(即根际土壤),共12份土壤样本,每份样本均分3部分处理:一部分风干后过筛,用于理化性质分析;一部分于4℃保存,用于酶活性测定,第3部分于-80℃保存,所有12个样本均进行宏基因组测序分析.
pH按1∶5的固液比加入去离子水使用便携式多参数水质分析仪(DZB-712F,上海雷磁)进行测量;碱解氮采用碱性扩散法测定;有效磷、速效钾分别采用碳酸氢钠浸提-钼锑抗比色法和醋酸铵法测定;交换性钙和镁离子采用电感耦合等离子体原子发射光谱仪(ICP-OES,Thermo-Scientific iCAP 7000系列ICP光谱仪,美国)测定. 铵态氮(NH4+-N)和硝态氮(NO3--N)使用氯化钙浸提-紫外分光光度法进行测定,有机质(SOM)采用重铬酸钾容量法,土壤可溶性有机质(DOM)按水∶土=10∶1的比例,振荡离心后,过0.45µm滤膜,利用TOC分析仪(TOC-2000,上海元析)测定. 土壤过氧化氢酶(CAT)、脲酶(URE)和酸性磷酸酶(ACP)采用酶试剂盒测定.
1.3 DNA提取和宏基因组测序从0.5 g干重土样中提取总基因组DNA,按照Mag-Bind® Soil DNA Kit(Omega Bio-tek,Norcross,GA,U.S.)制造商说明操作. DNA提取产物的质量通过1%琼脂糖凝胶电泳检测抽提的基因组DNA,利用仪器Covaris M220将DNA片段化成350 bp左右,由上海美吉生物医药科技有限公司利用Illumina NovaSeq 6000测序平台进行宏基因组测序.
基于原始数据,使用Fastp(v0.20.0)对其进行数据质控,剪切掉数据中的低质量及含N碱基的reads,获得后续分析需要的高质量序列. 利用MEGAHIT软件对优化序列进行拼接组装,筛选300 bp以上的Contigs进行统计,选择核酸长度大于等于100 bp的基因,并将其翻译为氨基酸序列. 通过CD-HIT软件对样本预测出来的基因序列进行聚类,每类取最长的基因作为代表序列,构建非冗余基因集. 利用SOAPaligner软件分别将每个样本优化序列与非冗余基因集进行比对,统计基因在对应样本中的丰度信息.
基因的功能注释通过Diamond v2.0.13软件将对来自非冗余目录的代表序列与KEGG数据库(Kyoto Encyclopedia of Genes and Genomes,http://www.genome.jp/kegg/)进行比对,获得基因对应的KEGG功能注释信息并进行统计,得到功能基因注释结果.
1.4 数据分析利用Microsoft Excel 2020进行数据整理,使用IBM SPSS Statistics 27.0软件基于P < 0.05的邓肯检验进行方差分析(单因素ANOVA),分析了不同施用方式对土壤理化性质、酶活性、微生物群落多样性及功能基因丰度的影响. 采用基于Bray-Curtis的主坐标分析(PCoA)和相似性分析(ANOSIM),对不同施肥方式处理下碳循环相关基因的差异进行了估计. 采用Mantel检验研究土壤性质与碳循环基因的微生物功能谱之间的关系,通过cnsknowall网站(https://www.cnsknowall.com)进行绘制,并使用“R”语言中“rfPermute”包进行随机森林分析,以确定土壤因素中驱动土壤微生物基因丰度变化的主要预测因子,微生物组成图(门水平)也由R语言所绘制. 利用来自“plspm”软件包的偏最小二乘路径模型(PLS-PM)评估施肥、土壤养分和与碳循环相关的基因之间的相关性. 丰度图、丰度占比图均由Origin 2021绘出,部分图片使用Adobe Illustrator 2023(http://www.adobe.com/)对图进行了细化.
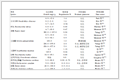
2 结果与分析 2.1 DSS不同施用方式对土壤养分及土壤酶活性的影响由表 1可知,不同施用方式均显著改变了土壤养分. 与对照组CK相比,各处理组的土壤pH均有所上升,分别提高了4.02%、14.41%和4.52%. 在养分含量方面,DSS不同施用方式可使土壤中AN、NH4+-N、NO3--N、Ex-Ca和SOM的含量最大提升为4.87、1.83、6.22、1.13和1.14倍,SOM含量在MF处理下提升最为明显(P < 0.001),而BF和LF处理则未表现出显著变化. 同时,与CK相比,3种DSS施用方式均提升了URE和CAT两种土壤酶活性,提升幅度分别为41.55%~174.47%和2.83%~30.41%,其中URE活性在BF处理下达到最高值.
|
表 1 不同施肥方式下的土壤养分及土壤酶活性1) Table 1 Soil nutrients and enzyme activities under different fertilization methods |
2.2 不同施肥方式对碳循环功能群落组成及微生物多样性的影响
基于功能基因注释结果,从样本中识别并提取了与碳循环相关的功能基因及其对应的同源编号,共涵盖15条碳循环代谢通路、51个关键功能基因,并将其归类为碳固定、碳降解和甲烷代谢这三大类[图 3(a)]. 整体来看,碳降解相关基因表现出最高丰度,其次为碳固定相关基因[图 3(a)]. 在碳降解组中,与纤维素(14.04~15.54%)、半纤维素(10.06~15.71%)和淀粉(9.63~11.80%)降解相关的功能基因占据主导地位[图 3(b)].

|
图 3 不同施肥方式土壤碳循环过程的归一化丰度占比 Fig. 3 Normalized relative abundance of soil carbon cycling processes under different fertilization treatments |
对KO水平的PCoA分析表明,DSS不同施加位置改变了微生物碳循环功能基因的组成[图 4(a),P=0.001],并解释了根系土壤碳功能分布的大部分变化(PCoA的PC1,碳为60.63%). ANOSIM分析进一步表明,施肥方式对碳固定基因[图 4(b),P=0.006]、甲烷代谢基因[图 4(c),P=0.003]、碳代谢基因[图 4(d),P=0.008]的β多样性有显著影响. 此外,采用香农指数(Shannon)和辛普森指数(Simpson)对微生物α多样性进行评估,由图 5所示,微生物功能基因多样性受不同施肥方式的影响显著(P < 0.001),与CK相比,微生物功能基因的α多样性香农指数有所增加,辛普森指数在逐级递减,通过两种指数变化发现,在MF处理下功能微生物多样性增加最明显.

|
采用相似性分析(ANOSIM)分析处理间微生物功能谱的差异 图 4 基于Bray-Curtis距离的主坐标分析(PCoA)识别了土壤碳循环功能基因的差异 Fig. 4 Principal coordinates analysis (PCoA) based on Bray-Curtis distances revealed differences in soil carbon cycling functional genes |

|
不同小写字母表示同一指标在不同施肥方式下显著性差异水平(P < 0.05) 图 5 不同施肥方式下微生物群落功能基因的α多样性指数 Fig. 5 The α diversity indices of microbial community functional genes under different fertilization treatments |
图 6展示了DSS不同施用方式下高粱根际土壤碳循环相关功能微生物群落组成及其变化趋势. 结果表明在门水平上,放线菌门(Actinomycetota)、假单胞菌门(Pseudomonadota)、绿弯菌门(Chloroflexota)、酸杆菌门(Acidobacteriota)和拟杆菌门(Bacteroidota)是碳固定功能中的优势微生物类群,以Actinomycetota丰度最高. 此外,Pseudomonadota和Bacteroidota在施用DSS后相对丰度显著升高,尤以MF处理效果最为显著[图 6(a)];在甲烷代谢相关的微生物群落中,DSS施用促进了Pseudomonadota的优势表达,而Chloroflexota和Acidobacteriota等类群的丰度相较CK组呈下降趋势[图 6(b)]. 在分类学水平上,碳降解是碳循环中最丰富的过程,检测到Actinomycetota、Pseudomonadota、Acidobacteriota和Bacteroidota等7种细菌门和一种真菌门(子囊菌门Ascomycota)[图 6(c)]. 其中,Actinomycetota、Pseudomonadota、Bacteroidota和Ascomycota的相对丰度在施加DSS后均有所提高,且在MF处理中提升幅度最显著.

|
弦图的上半部分表示4种处理中不同微生物分类群(门水平)的比例,而下半部分说明4种处理中各种微生物分类群(门水平)的丰度比 图 6 碳循环功能微生物组成(门水平) Fig. 6 Composition of carbon-cycling functional microorganisms at the phylum level |
总体来看,不同施肥方式对碳循环相关功能基因的表达产生了不同程度的影响,且在不同功能类别之间表现出明显差异性. 由图 7可知,碳固定路径中,CO氧化(coxL)和还原性柠檬酸循环(ACO)相关基因在所有处理中的丰度均显著高于其他碳固定基因. 碳降解功能组中,纤维素降解相关基因的相对丰度最高,尤其是bglX基因,占碳降解相关基因总丰度的18%,其次为与淀粉降解相关的malZ基因和半纤维素降解相关的lacZ基因,而果胶降解相关的功能基因丰度相对较低. 甲烷代谢功能基因在整体丰度上最低,除ackA基因外,其余大多数基因在LF处理中呈现上调趋势,但差异不显著.

|
1.MUT,2.accA,3.accD,4.K15016,5.abfD,6.K15019,7.coxL,8.coxM,9.coxS,10.metF,11.folD,12.fhs,13.ACO,14.pps,15.sdhC,16.PC,17.sdhD,18.FBA,19.rpiA,20.rpiB,21.ackA,22.fwdA,23.mttB,24.pmoA,25.pmoB,26.pmoC,27.leuA,28.prpB,29.aceB,30.bglB,31.bglX,32.E3.2.1.58,33.E3.2.1.14,34.HEXA_B,35.NAGLU,36.lacA,37.lacZ,38.xynA,39.xynB,40.AXY8,41.katE,42.katG,43.mmcO,44.gpx,45.pel,46.yesW,47.PLY,48.malQ,49.malS,50.malZ,51.pulA;1~20为碳固定基因,21~26为甲烷代谢基因,27~51为碳降解基因;不同小写字母表示同一指标在不同施肥方式下显著性差异水平(P < 0.05) 图 7 不同施肥处理方式下土壤微生物功能基因的相对丰度 Fig. 7 Relative abundance of soil microbial functional genes under different fertilization treatments |
本研究对处理组和对照组之间碳循环相关功能基因的差异进行了分析. 结果发现(图 8),LF处理下,尽管果胶降解相关基因PLY丰度有所下降,但碳固定路径中的accA(3-羟基丙酸双循环)、sdhD(羟基丙酸-羟基丁酸循环)以及纤维素降解相关的E3.2.1.58基因丰度高于CK,说明其对部分碳循环途径具有促进作用. BF处理显著提高了碳固定路径中accD与sdhC基因的丰度,同时增强了纤维素降解(E3.2.1.58)与几丁质降解(NAGLU)相关基因的表达,但对果胶降解相关基因PLY产生抑制. MF处理在所有处理方式中对碳循环相关基因的影响最为显著,不仅显著提高了碳固定途径中的MUT(3-羟基丙酸双循环)、abfD(羟基丙酸-羟基丁酸循环)、folD(还原性乙酰辅酶A途径)、PC(还原性柠檬酸循环)和rpiA(卡尔文循环)等关键基因的丰度,同时也显著上调了碳降解路径中多个关键基因的表达,包括prpB(芳香族化合物降解)、E3.2.1.58(纤维素降解)、E3.2.1.14(几丁质降解)、AXY8(半纤维素降解)、mmcO(木质素降解)、pel(果胶降解)和malZ(淀粉降解)等. 尽管LF、BF和MF处理均对碳固定和碳降解功能基因的丰度产生了显著影响,但所有处理组对甲烷代谢相关功能基因的整体丰度均未表现出显著差异.

|
1.leuA、prpB和aceB,2.bglB、bglX和E3.2.1.58,3. E3.2.1.14、HEXA_B和NAGLU,4.lacA、lacZ、xynA、xynB和AXY8,5.katG、kateE、mmcO和gpx,6.pel、yesW和PLY,7.malQ、malS、malZ和pulA,8.MUT、accA和accD,9.K15016、K15019和abfD,10. coxL、coxM和coxS,11.metF、folD和fhs,12. ACO、pps、sdhC、sdhD和PC,13. FBA、rpiA和rpiB,14.ackA、fwdA和mttB,15.pmoA、pmoB和pmoC;红色实线表明,处理组与对照组相比基因丰度显著增加,蓝色实线表明,处理组与对照组相比基因丰度显著下降,而黑色线条则表明,处理组和对照组处理之间没有显著差异,*表示P < 0.05,**表示P < 0.01 图 8 不同施肥方式中参与碳循环的代表性功能基因的归一化丰度 Fig. 8 Normalized abundance of representative functional genes involved in carbon cycling under different fertilization treatments |
土壤碳循环功能基因与土壤环境因子的相关性分析如图 9(a)所示,Mantel结果显示,碳循环的功能基因与土壤DOM、AK、AP、AN、Ex-Mg、Ex-Ca和NO3--N强烈相关(P < 0.05). 随机森林模型的开发是为了评估土壤环境因子对功能基因变化的比例贡献,结果进一步表明NO3--N、Ex-Ca、Ex-Mg和AN是影响功能基因丰度的的主要因素[P < 0.05,图 9(b)].

|
(a)土壤环境因子与颜色梯度的成对比较显示了斯皮尔曼相关系数(深蓝色,r=1,暗红色,r=-1,矩形大小表示斯皮尔曼相关系数绝对值大小),线条的粗细表示Mantel的r统计值大小,线条颜色表示统计显著性(*表示P < 0.05,**表示P < 0.01,***表示P < 0.001);(b)显示环境因子对高粱根际土壤碳循环基因丰度的平均预测因子重要性(*表示P < 0.05);(c)线上的数字是标准化的直接路径系数,较宽的箭头表示较大的系数(实线表示积极影响,虚线表示消极影响,黑线与蓝线分别表示不同变量之间的显著和不显著关系),*表示P < 0.05,**表示P < 0.01,***表示P < 0.001 图 9 碳循环基因与土壤环境因子之间的关联分析 Fig. 9 Association between carbon cycling genes and soil environmental factors |
本研究构建了偏最小二乘路径模型(PLS-PM)[图 9(c)],模型的拟合优度(GOF)为0.73,表明该结构模型具有良好的解释力和适配性. 模型结果显示,DSS的不同施用方式可通过调控土壤养分含量和土壤酶活性,直接或间接影响土壤碳循环功能基因的表达水平. 具体而言,不同施肥方式对土壤养分和酶活性具有显著的正向直接影响(P < 0.05),而碳降解相关功能基因则在其中发挥了关键的间接作用,显著正向影响碳循环功能基因的丰度(通路系数=0.87,P < 0.001).
3 讨论 3.1 DSS不同施用方式对土壤营养释放与酶活性响应的影响施肥方式作为影响土壤生物-理化过程的重要因素,其调控机制不仅体现在养分输入量的变化,关键更在于其对养分释放和生物可及性的再分配. DSS不同形态与空间分布处理对根际土壤养分供应能力的增强,本质上归因于土壤微环境的调节. 具体而言,MF处理因其颗粒尺度小、扩散性强,与根系及微生物群体的接触面积显著增加,进一步促进了氮素的转化,提高了DSS中的养分利用率[22]. 这一特性有助于形成稳定、均匀且持续的营养释放模式,有效规避了传统颗粒状有机肥“点源释放、局部供养”的缺陷,使得养分释放更加稳定持续,并有效增加了土壤SOM的积累. 相比之下,LF和BF处理在一定程度上也提升了土壤养分,尤其是氮素组分,但其效果受限于施肥点的空间分布,造成根际养分利用的局部性. LF处理的DSS形态与位置因更易为土壤微生物提供可利用氮源,增强了氮循环过程中的铵态氮积累[23],但可能与较低的扩散速率延缓了铵态氮的硝化转化有关,从而表现出NH4+-N含量显著升高的特征.
土壤酶作为反映微生物活性与养分转化潜力的关键指标,其活性提升反映出微生物群体代谢响应的增强[24,25]. MF施用方式下土壤中URE、ACP和CAT等关键功能酶的活性,相较CK组显著增强,该现象表明DSS中有机组分被更有效地分解与利用,同时表明MF施用方式能有效促进微生物介导的营养循环. 脲酶(URE)是促进氮素转化的关键酶,其活性可以反映土壤中氮素的转化程度[26],URE活性的显著提升,暗示其在加速有机氮矿化、推动氮素转化方面发挥了关键作用,进而有助于构建更高效的氮素供需反馈机制[27]. 此外,根据ACP的活性可判断土壤有机磷转换能力[28],ACP的升高表明有机磷组分被更有效释放,为根际磷营养提供保障;CAT活性的增强则可能与DSS提供的碳氮源有关,在MF处理下粉末状的形态更有利于有机物分解释放可利用的碳源,为微生物提供能量和合成酶的原料,从而增强了微生物的代谢活动和酶的分泌能力[29]. 在BF处理下URE活性表现出最高值,这可能与底施方式使DSS直接分布于根系活跃区、微生物和根系根际呼吸作用增强有关,从而显著促进了脲酶的合成与分泌[30].
3.2 DSS不同施用方式驱动碳循环微生物群落演替与功能基因变化土壤微生物是维系碳循环过程的核心驱动因子[31],其功能基因组成与表达活性在很大程度上决定了土壤系统中碳的储存与转化路径. 施用有机肥有助于为土壤微生物创造良好的生长环境,从而加速土壤碳循环过程[32,33]. 本研究发现,DSS施用可通过改变微生物群落的多样性与组成,重塑土壤碳功能微生物结构,尤其在MF处理下表现出较高的α多样性水平(图 5). 这可能由于粉末状污泥在土壤中的高可扩散性和均匀分布特性,有利于连续性提供营养,进而提升微生物的营养获取效率. 此外,微生物多样性的提升不仅有助于增强碳代谢功能,也提高了碳功能基因的表达. DSS中富含多种稳定性较高的有机化合物,施入后可作为长期碳源缓慢释放,同时释放营养元素,为微生物的持续繁殖与功能表达提供有利的生境支持[34]. 本研究观察到假单胞菌门(Pseudomonadota)与拟杆菌门(Bacteroidota)等典型碳代谢相关菌群的丰度显著富集(图 6),表明DSS通过提升土壤养分与有机质供给,促进了碳代谢型微生物群落的构建. 已有研究指出,有机质输入倾向于促进富养型微生物增加[35],其中,假单胞菌门(Pseudomonadota)是固碳过程关键基因(如coxL和rpiA)的主要载体[36],其丰度上升可能直接驱动碳循环功能增强.
功能基因丰度的差异性响应进一步印证了施肥方式对微生物碳代谢潜力的路径选择效应. 在固碳功能方面,DSS施入显著增强了多个固碳路径中的关键基因表达,尤其是rTCA循环与CO氧化途径,其中rTCA是通过涉及周围的能量和碳源进行固碳的关键途径,使得碳能够进行异养和自养代谢[37]. 值得关注的是,球形侧施(LF)促进了CO氧化相关基因(如coxL、coxM和coxS)的表达,这一现象与部分研究[38]中有机肥抑制CO固定的结论相反,这可能与本研究中施用位点靠近根际区、影响异养微生物对碳源的利用能力和速率有关[39]. 碳降解功能方面,DSS可以提供土壤中有机碳、氮等微生物生长所需养分的有效性,为土壤微生物提供更多的碳源[40]. 因此,在施加DSS后与碳降解相关的功能基因丰度高于CK处理. MF处理显著提升了纤维素、半纤维素及淀粉降解相关酶类基因的表达,这与先前施入氮肥可以增加微生物碳降解的潜力[41]的研究结果一致. 在此背景下,有研究表明贫营养微生物分类群丰度的增加对顽固性碳降解基因有正向的影响[42],Ascomycota是负责分解顽固性碳的主要微生物分类群[43~45],从图 6可知,添加DSS后Ascomycota的丰度增加,进一步说明这可能是碳降解基因上调的原因之一. 反之,在BF和LF处理下所引起的微生态结构紊乱可能导致与果胶降解相关的功能基因(yesW和PLY)表达受到抑制,说明施肥方式会导致功能群落失衡,随之使得特定功能路径的弱化. 相比之下,甲烷代谢相关基因的响应相对微弱,整体丰度水平较低,表明DSS对该路径的调控效应有限. 然而,LF在少数甲烷生成或氧化基因(fdwA和mttB)上仍表现出上调趋势,推测可能是由于球状DSS在表层形成的局部厌氧小环境为产甲烷古菌提供了代谢空间,从而间接影响了甲烷代谢相关微生物群落的激活状态[46].
综上所述,不同施用方式的DSS通过调控碳源释放格局与微环境结构,驱动碳循环微生物群落发生响应,表现为特定碳代谢路径的激活与功能类群的富集差异. MF处理在促进碳固定与降解功能基因表达方面优势显著,说明施肥形态和施用位置的优化对于激发土壤系统碳代谢潜力具有关键意义.
3.3 碳循环微生物功能基因与土壤环境因子的相关性土壤碳循环相关功能基因的表达受多种理化因子的协同影响,其中氮素的可利用性被认为是关键驱动因子之一[47,48]. Mantel分析与随机森林模型结果均表明,硝态氮(NO3--N)是调控土壤微生物碳循环功能基因的最显著因子(P < 0.01),其影响程度远高于其他理化指标;此外,Ex-Ca、Ex-Mg以及AN亦表现出显著贡献(P < 0.05),说明DSS施用所引发的氮素与阳离子动态变化对微生物碳代谢潜力具有重要调节作用. 这一作用主要归因于DSS提升了土壤氮素有效性,显著促进了土壤中NO3--N和AN的积累,使其在各施肥处理下均显著富集(表 1),从而为微生物提供了持续的可利用氮源. 氮素不仅是微生物代谢所需的基础营养元素,同时也是促进微生物快速生长、土壤有机质分解及调控土壤养分循环的必需元素. 作物根系通过分泌物释放与残体归还进一步影响微生物组成与活性,从而强化了养分转化与碳循环功能[49]. 已有研究表明,土壤中氮含量的提升可显著促进与碳转化相关的功能基因表达[33],同时还可增强微生物对有机碳的降解、储存和分解能力[50,51]. 其中,NO3--N作为直接可吸收的无机氮形式,不仅影响微生物生长速率,还可能通过调控碳代谢通路中关键酶的表达活性,进一步激活碳循环功能[52,53]. 除氮素以外,Ex-Ca与Ex-Mg虽不直接参与碳代谢反应,但可能通过调节土壤团聚体结构与pH缓冲能力,间接影响微生物生态位分化及关键酶系激活,协同促进碳循环功能基因的表达[54,55]. 值得注意的是,土壤pH在本研究中的影响相对有限,这与前人的研究结果[56]存在差异. 可能原因在于本研究土壤pH整体处于微酸至中性范围,未突破微生物群落响应的值数,因而对碳代谢潜力的调控作用有限. 综上所述,DSS施用通过改变土壤养分供应,构建了功能微生物表达与代谢活性的有利土壤条件,进一步推动了碳循环相关功能基因丰度的上升. 该结果表明,驱动土壤碳循环的功能微生物与土壤养分循环密切相关,即土壤理化性质会影响土壤中功能微生物的活性和功能发挥.
4 结论(1)在DSS的施用方式(BF、LF和MF)中,MF处理组效果最佳,该处理显著提高了土壤SOM、AN、NH4+-N和NO3--N含量,并增强了URE和CAT等关键酶活性,促进了养分转化和微生物代谢活动.
(2)DSS施入提高了功能微生物的多样性,并且在功能微生物组成中显著提高了与碳固定、甲烷代谢以及碳降解过程相关的功能基因丰度,从占比来看,碳降解过程占主导.
(3)DSS不同施用方式对碳循环过程的调节存在差异,MF处理显著提高了碳降解通路中纤维素降解bglX基因丰度,LF处理则促进CO氧化途径coxL基因丰度以及甲烷代谢功能基因的表达. 相比其他处理组,MF处理显著增强了碳固定和碳降解基因表达.
(4)土壤养分对碳循环微生物功能基因丰度有显著影响,其中NO3--N、Ex-Ca、Ex-Mg和AN为主要驱动因子,偏最小二乘路径建模(PLS-PM)分析进一步揭示,不同方式施用DSS直接影响土壤养分和土壤酶活性,并通过碳降解过程间接影响碳循环功能基因.
| [1] | Wang S P, Zhong X Z, Wang T T, et al. Aerobic composting of distilled grain waste eluted from a Chinese spirit-making process: the effects of initial pH adjustment[J]. Bioresource Technology, 2017, 245: 778-785. DOI:10.1016/j.biortech.2017.09.051 |
| [2] |
王远桃, 钟星, 张光利, 等. 酱香型白酒废水污泥的特点及资源化利用的可行性研究[J]. 酿酒科技, 2022(8): 79-83. Wang Y T, Zhong X, Zhang G L, et al. Characteristics of Jiangxiang Baijiu wastewater sludge and feasibility study on its resourcezation[J]. Liquor-Making Science & Technology, 2022(8): 79-83. |
| [3] | 卢雨霞. 酱香型白酒废水污泥特征及资源化利用研究[D]. 贵阳: 贵州大学, 2024. |
| [4] | Guo Y Y, Song Y S, Zheng H X, et al. NADP-malate dehydrogenase of sweet sorghum improves salt tolerance of Arabidopsis thaliana[J]. Journal of Agricultural and Food Chemistry, 2018, 66(24): 5992-6002. DOI:10.1021/acs.jafc.8b02159 |
| [5] |
崔佩佩, 刘鹏, 刘佳琪, 等. 不同养分配比对高粱根系生长及养分吸收的影响[J]. 中国生态农业学报, 2017, 25(11): 1643-1652. Cui P P, Liu P, Liu J Q, et al. Effect of different nutrient combinations on root growth and nutrient accumulation in sorghum[J]. Chinese Journal of Eco-Agriculture, 2017, 25(11): 1643-1652. |
| [6] |
赵强, 章洁琼, 汪灿, 等. 不同间作模式下糯高粱根际土壤特性及产量变化[J]. 南方农业学报, 2022, 53(8): 2122-2132. Zhao Q, Zhang J Q, Wang C, et al. Rhizosphere soil characteristics and yield changes of waxy sorghum under different intercropping patterns[J]. Journal of Southern Agriculture, 2022, 53(8): 2122-2132. |
| [7] | Mishra D, Kumari S, Jaiswal A, et al. Evaluation of distillery sludge as a soil amendment for improving soil quality and sugarcane (CO-265) yield[J]. Environmental Technology & Innovation, 2021, 23. DOI:10.1016/j.eti.2021.101624 |
| [8] | Chen X, Xie Y J, Wang J, et al. Presence of different microplastics promotes greenhouse gas emissions and alters the microbial community composition of farmland soil[J]. Science of the Total Environment, 2023, 879. DOI:10.1016/j.scitotenv.2023.162967 |
| [9] | Hu P F, Ma Y L, Yin Y L. The mechanisms and application prospects of soil microorganisms in soil health[J]. Geographical Research Bulletin, 2024, 3: 606-624. |
| [10] |
李友杰, 陈梓涵, 杜佳梅, 等. 生物有机肥联合菌剂施用对新垦水田土壤碳组分、酶活性及碳过程的影响[J]. 浙江农业科学, 2025, 66(6): 1501-1505. Li Y J, Chen Z H, Du J M, et al. Effects of combined application of bio-organic fertilizer and microbial agents on soil carbon composition, enzyme activity, and carbon process in newly cultivated paddy fields[J]. Journal of Zhejiang Agricultural Sciences, 2025, 66(6): 1501-1505. |
| [11] |
马星. 生物炭配施有机肥提高沙化土壤多功能性及微生物驱动机制[D]. 杨凌: 西北农林科技大学, 2025. Ma X. Enhanced multifunctionality of sandy loam soil with co-application of biochar and organic manure and microbial driving mechanism[D]. Yangling: Northwest A & F University, 2025. |
| [12] | Zhang C, Song Z L, Zhuang D H, et al. Urea fertilization decreases soil bacterial diversity, but improves microbial biomass, respiration, and N-cycling potential in a semiarid grassland[J]. Biology and Fertility of Soils, 2019, 55(3): 229-242. DOI:10.1007/s00374-019-01344-z |
| [13] | Chen J, Sinsabaugh R L. Linking microbial functional gene abundance and soil extracellular enzyme activity: implications for soil carbon dynamics[J]. Global Change Biology, 2021, 27(7): 1322-1325. DOI:10.1111/gcb.15506 |
| [14] | Li W X, Wang C, Zheng M M, et al. Fertilization strategies affect soil properties and abundance of N-cycling functional genes in an acidic agricultural soil[J]. Applied Soil Ecology, 2020, 156. DOI:10.1016/j.apsoil.2020.103704 |
| [15] | Tang S, Ma Q X, Marsden K A, et al. Microbial community succession in soil is mainly driven by carbon and nitrogen contents rather than phosphorus and sulphur contents[J]. Soil Biology and Biochemistry, 2023, 180. DOI:10.1016/j.soilbio.2023.109019 |
| [16] | Qiu X F, Zhang X C, Mo Z W, et al. Effects of different tillage and fertilization methods on the yield and nitrogen leaching of fragrant rice[J]. Agronomy, 2023, 13(11). DOI:10.3390/agronomy13112773 |
| [17] | Zhang A P, Gao J, Liu R L, et al. Using side-dressing technique to reduce nitrogen leaching and improve nitrogen recovery efficiency under an irrigated rice system in the upper reaches of Yellow River Basin, Northwest China[J]. Journal of Integrative Agriculture, 2016, 15(1): 220-231. DOI:10.1016/S2095-3119(14)60952-7 |
| [18] | Wu P, Liu F, Li H, et al. Suitable fertilizer application depth can increase nitrogen use efficiency and maize yield by reducing gaseous nitrogen losses[J]. Science of the Total Environment, 2021, 781. DOI:10.1016/j.scitotenv.2021.146787 |
| [19] | Breda C C, Soares M B, Tavanti R F R, et al. Successive sewage sludge fertilization: recycling for sustainable agriculture[J]. Waste Management, 2020, 109: 38-50. DOI:10.1016/j.wasman.2020.04.045 |
| [20] | Chu L Q, He W, Xu F L, et al. Ecological risk assessment of toxic metal(loid)s for land application of sewage sludge in China[J]. Science of the Total Environment, 2022, 836. DOI:10.1016/j.scitotenv.2022.155549 |
| [21] | Lloret E, Pascual J A, Brodie E L, et al. Sewage sludge addition modifies soil microbial communities and plant performance depending on the sludge stabilization process[J]. Applied Soil Ecology, 2016, 101: 37-46. DOI:10.1016/j.apsoil.2016.01.002 |
| [22] | Li R C, Gao Y X, Chen Q, et al. Blended controlled-release nitrogen fertilizer with straw returning improved soil nitrogen availability, soil microbial community, and root morphology of wheat[J]. Soil and Tillage Research, 2021, 212. DOI:10.1016/j.still.2021.105045 |
| [23] | Lyu H Q, Li Y, Wang Y L, et al. Drive soil nitrogen transformation and improve crop nitrogen absorption and utilization-a review of green manure applications[J]. Frontiers in Plant Science, 2024, 14. DOI:10.3389/fpls.2023.1305600 |
| [24] | Wang X R, Wang B, Gu W R, et al. Effects of carbon-based fertilizer on soil physical and chemical properties, soil enzyme activity and soil microorganism of maize in northeast China[J]. Agronomy, 2023, 13(3). DOI:10.3390/agronomy13030877 |
| [25] |
李文杰, 张祯皎, 赵雅萍, 等. 刺槐林恢复过程中土壤微生物碳降解酶的变化及与碳库组分的关系[J]. 环境科学, 2022, 43(2): 1050-1058. Li W J, Zhang Z J, Zheng Y P, et al. Changes in soil microbial carbon-degrading enzymes and their relationships with carbon pool components during the restoration process of Robinia pseudoacacia[J]. Environmental Science, 2022, 43(2): 1050-1058. DOI:10.13227/j.hjkx.202107008 |
| [26] |
陈思宇, 彭方丽, 汪灿, 等. 施氮量和间作大豆对糯高粱根际土壤特性及产量的影响[J]. 江苏农业科学, 2025, 53(13): 73-80. Chen S Y, Peng F L, Wang C, et al. Influences of nitrogen application rate and intercropping soybean on rhizosphere soil characteristics and yield of glutinous sorghum[J]. Jiangsu Agricultural Sciences, 2025, 53(13): 73-80. |
| [27] | Zhang P, Chen X L, Wei T, et al. Effects of straw incorporation on the soil nutrient contents, enzyme activities, and crop yield in a semiarid region of China[J]. Soil and Tillage Research, 2016, 160: 65-72. DOI:10.1016/j.still.2016.02.006 |
| [28] |
杨德任, 朱原立, 李书玲, 等. 酚酸对桉树纯林和混交林土壤养分有效性的影响[J]. 森林与环境学报, 2023, 43(6): 579-587. Yang D R, Zhu Y L, Li S L, et al. Effects of phenolic acids on soil nutrient availability in pure and mixed Eucalyptus plantations[J]. Journal of Forest and Environment, 2023, 43(6): 579-587. |
| [29] | Gong X W, Liu C J, Li J, et al. Responses of rhizosphere soil properties, enzyme activities and microbial diversity to intercropping patterns on the Loess Plateau of China[J]. Soil and Tillage Research, 2019, 195. DOI:10.1016/j.still.2019.104355 |
| [30] |
朱捍华, 朱奇宏, 刘守龙, 等. 稻草还土对红壤氮磷积累及有效性的影响[J]. 土壤通报, 2014, 45(4): 919-924. Zhu H H, Zhu Q H, Liu S L, et al. Effects of straw incorporation on the accumulation and availability of N and P in red soils[J]. Chinese Journal of Soil Science, 2014, 45(4): 919-924. |
| [31] |
郑一玲, 范栩妙, 钟哲伦, 等. 生物质炭-沼液配施条件下旱地红壤碳氮循环功能基因丰度主控因子与耦合关系[J]. 农业资源与环境学报, 2024, 41(4): 835-845. Zheng Y L, Fan X M, Zhong Z L, et al. The main controlling factors and coupling relationship of functional gene abundance in carbon and nitrogen cycling in dryland red soil with biochar and biogas slurry co-application[J]. Journal of Agricultural Resources and Environment, 2024, 41(4): 835-845. |
| [32] | Ren A T, Abbott L K, Chen Y L, et al. Nutrient recovery from anaerobic digestion of food waste: impacts of digestate on plant growth and rhizosphere bacterial community composition and potential function in ryegrass[J]. Biology and Fertility of Soils, 2020, 56(7): 973-989. DOI:10.1007/s00374-020-01477-6 |
| [33] | Wen M M, Liu Y, Yang C D, et al. Effects of manure and nitrogen fertilization on soil microbial carbon fixation genes and associated communities in the Loess Plateau of China[J]. Science of the Total Environment, 2024, 954. DOI:10.1016/j.scitotenv.2024.176581 |
| [34] | Oszust K, Frąc M, Lipiec J. Soil microbial functionality in response to dairy sewage sludge and mineral fertilisers application under winter rape[J]. International Journal of Environmental Science and Technology, 2015, 12(11): 3675-3684. DOI:10.1007/s13762-015-0807-0 |
| [35] | Fierer N, Bradford M A, Jackson R B. Toward an ecological classification of soil bacteria[J]. Ecology, 2007, 88(6): 1354-1364. DOI:10.1890/05-1839 |
| [36] | Zhang B, Zhou X X, Ren X P C, et al. Recent research on municipal sludge as soil fertilizer in China: a review[J]. Water, 2023, 234(2). DOI:10.1007/s11270-023-06142-w |
| [37] | Hall J R, Mitchell K R, Jackson-Weaver O, et al. Molecular characterization of the diversity and distribution of a thermal spring microbial community by using rRNA and metabolic genes[J]. Applied and Environmental Microbiology, 2008, 74(15): 4910-4922. DOI:10.1128/AEM.00233-08 |
| [38] | Hu X J, Gu H D, Liu J J, et al. Metagenomics reveals divergent functional profiles of soil carbon and nitrogen cycling under long-term addition of chemical and organic fertilizers in the black soil region[J]. Geoderma, 2022, 418. DOI:10.1016/j.geoderma.2022.115846 |
| [39] | Yuan H Z, Ge T D, Chen C Y, et al. Significant role for microbial autotrophy in the sequestration of soil carbon[J]. Applied and Environmental Microbiology, 2012, 78(7): 2328-2336. DOI:10.1128/AEM.06881-11 |
| [40] | Liu H Y, Xu W, Li J Y, et al. Short-term effect of manure and straw application on bacterial and fungal community compositions and abundances in an acidic paddy soil[J]. Journal of Soils and Sediments, 2021, 21(9): 3057-3071. DOI:10.1007/s11368-021-03005-x |
| [41] | Yang X D, Ni K, Shi Y Z, et al. Metagenomics reveals N-induced changes in carbon-degrading genes and microbial communities of tea (Camellia sinensis L.) plantation soil under long-term fertilization[J]. Science of the Total Environment, 2023, 856. DOI:10.1016/j.scitotenv.2022.159231 |
| [42] | Xun W B, Zhao J, Xue C, et al. Significant alteration of soil bacterial communities and organic carbon decomposition by different long‐term fertilization management conditions of extremely low-productivity arable soil in South China[J]. Environmental Microbiology, 2016, 18(6): 1907-1917. DOI:10.1111/1462-2920.13098 |
| [43] | Lou X L, Zhao J M, Lou X Y, et al. The biodegradation of soil organic matter in soil-dwelling humivorous fauna[J]. Frontiers in Bioengineering and Biotechnology, 2022, 9. DOI:10.3389/fbioe.2021.808075 |
| [44] | Wang X J, Wang J, Zou Y N, et al. Urea fertilization increased CO2 and CH4 emissions by enhancing C-cycling genes in semi-arid grasslands[J]. Journal of Environmental Management, 2024, 356. DOI:10.1016/j.jenvman.2024.120718 |
| [45] | Ferrari R, Gautier V, Silar P. Lignin degradation by ascomycetes[M]. Academic Press, 2021. |
| [46] | Conrad R. Microbial ecology of methanogens and methanotrophs[J]. Advances in Agronomy, 2007, 96: 1-63. |
| [47] | Wu N, Li Z, Meng S, et al. Soil properties and microbial community in the rhizosphere of Populus alba var. pyramidalis along a chronosequence[J]. Microbiological Research, 2021, 250. DOI:10.1016/j.micres.2021.126812 |
| [48] | Zhou Z H, Wang C K, Zheng M H, et al. Patterns and mechanisms of responses by soil microbial communities to nitrogen addition[J]. Soil Biology and Biochemistry, 2017, 115: 433-441. DOI:10.1016/j.soilbio.2017.09.015 |
| [49] | Dennis P G, Miller A J, Hirsch P R. Are root exudates more important than other sources of rhizodeposits in structuring rhizosphere bacterial communities?[J]. FEMS Microbiology Ecology, 2010, 72(3): 313-327. DOI:10.1111/j.1574-6941.2010.00860.x |
| [50] | Du T Y, Hu Q F, Mao W J, et al. Metagenomics insights into the functional profiles of soil carbon, nitrogen, and phosphorus cycles in a walnut orchard under various regimes of long-term fertilisation[J]. European Journal of Agronomy, 2023, 148. DOI:10.1016/j.eja.2023.126887 |
| [51] | Long X E, Chen C R, Xu Z H, et al. Abundance and community structure of ammonia-oxidizing bacteria and archaea in a temperate forest ecosystem under ten-years elevated CO2[J]. Soil Biology and Biochemistry, 2012, 46: 163-171. DOI:10.1016/j.soilbio.2011.12.013 |
| [52] | Bowen J L, Babbin A R, Kearns P J, et al. Connecting the dots: linking nitrogen cycle gene expression to nitrogen fluxes in marine sediment mesocosms[J]. Frontiers in Microbiology, 2014, 5. DOI:10.3389/fmicb.2014.00429 |
| [53] | Zhang Z Y, Xie D X, Teng W H, et al. A state of art review on carbon, nitrogen, and phosphorus cycling and efficient utilization in paddy fields[J]. Plant and Soil, 2025, 513(2): 1689-1709. DOI:10.1007/s11104-025-07344-3 |
| [54] | Huang M Z, Lan J C, Wang S S, et al. Effects of soil exchangeable calcium in promoting the accumulation of soil organic carbon by karst vegetation restoration[J]. Journal of Soil Science and Plant Nutrition, 2024, 24(1): 843-854. DOI:10.1007/s42729-023-01589-6 |
| [55] | Kang Y L, Ma Y W, Wu W L, et al. Bioorganic and silicon amendments alleviate early defoliation of pear trees by improving the soil nutrient bioavailability, microbial activity, and reshaping the soil microbiome network[J]. Applied Soil Ecology, 2022, 173. DOI:10.1016/j.apsoil.2021.104383 |
| [56] | Li Y N, Wang C Y, Chang H Y, et al. Metagenomics reveals the effect of long-term fertilization on carbon cycle in the maize rhizosphere[J]. Frontiers in Microbiology, 2023, 14. DOI:10.3389/fmicb.2023.1170214 |