 2026, Vol. 47


2. 西安建筑科技大学陕西省环境工程重点实验室,西安 710055;
3. 西安建筑科技大学陕西省水污染控制与水质安全保障协同创新中心,西安 710055;
4. 西安市自来水有限公司,西安 710055
 , WU Yong-peng1,2,3 , MA Cai-yun1,2,3 , WEN Gang1,2,3 , WANG Jun-feng4 , WANG Feng-lin4 , HUANG Ting-lin1,2,3
2. Shaanxi Provincial Key Laboratory of Environmental Engineering, Xi'an University of Architecture and Technology, Xi'an 710055, China;
3. Collaborative Innovation Center of Shaanxi Province for Water Pollution Control and Water Quality Security, Xi'an University of Architecture and Technology, Xi'an 710055, China;
4. Xi'an Water Supply Co., Ltd., Xi'an 710055, China
全球范围内,水体富营养化与气候变暖的协同效应正加剧藻类异常增殖的频次与强度,严重威胁饮用水安全保障体系[1,2]. 据联合国环境规划署(UNEP)统计,过去10 a间全球近40%的湖泊与水库面临藻华暴发风险,其中蓝藻水华因释放致嗅化合物,已成为公共卫生领域的焦点问题. 藻类污染不仅破坏水生生态平衡,更可能通过饮用水处理系统穿透到管网中[3,4],产生不同种类的藻源嗅味物质[如2-甲基异莰醇(2-MIB)、土臭素(GSM)和β-环柠檬醛(β-cyclo)][5,6],而嗅味物质导致水质感官性状恶化[7,8],显著降低用户对供水安全的信任度[9,10]. 尽管水厂采用多级屏障工艺控制藻类污染,但藻类在形态结构、生理特性及群落动态上的高度多样性,使得传统工艺的去除效率呈现显著异质性[11,12]. 这种异质性不仅导致部分藻属穿透处理流程进入管网,还可能通过嗅味化合物释放、消毒副产物生成等途径,引发次生水质风险[13,14]. 因此,解析藻类属级特性与处理工艺的响应机制,具有一定的现实意义.
现有研究已初步揭示了水处理工艺对单一藻种的去除规律[15~17],但在实际水厂复杂水质条件下,藻类穿透工艺的群体行为与动态机制仍存在显著认知缺口. 当前研究多聚焦于实验室条件下特定藻种(如微囊藻和鱼腥藻)的去除效能[15,18],却忽视了实际水源中藻类群落的多样性及其季节性演替特征. 例如,针对混凝工艺的研究普遍表明,未形成胶鞘的藻细胞(如微囊藻属)易通过电荷中和被去除,而丝状藻类(如颤藻属)因形态抗性易穿透沉淀单元[19]. 另外,还有一些研究通过监测发现,出厂水中含有大量的藻类,其中以蓝菌门下的藻类居多[20,21]. 然而,关于易泄漏藻细胞的种类缺乏定论,且不同种类藻细胞穿透水处理工艺的规律仍不清楚.
针对上述问题,本研究以某面临嗅味威胁的地表水厂为对象,通过为期8个月(4~11月)的全流程监测,结合随机森林回归与SHAP(SHapley Additive exPlanations)可解释性机器学习方法,实现了32个藻属在混凝-沉淀、过滤及消毒工艺中的去除效能量化解析,并揭示鱼腥藻属、颤藻属和微囊藻属分别为2-MIB、GSM及β-cyclo的主要生物来源. 通过追踪藻类穿透规律与嗅味物质动态,本研究为水厂工艺参数优化提供了靶向调控依据,对实现藻类与嗅味物质的协同控制具有重要实践价值.
1 材料与方法 1.1 水厂选择该研究选取陕西省内某地水源地水厂,在该水厂的进水端、沉淀池后、过滤池后以及出水端分别设置取样点.
1.2 数据的收集和处理采样周期覆盖4~11月,遵循至少每2周一次的采样频率,以有效捕捉水质参数的季节性动态变化. 具体采样操作如下:在各监测点位使用棕色玻璃瓶无菌密封收集500 mL水样,样品采集后立即置于4℃避光环境冷藏保存;基于藻细胞活性与嗅味物质稳定性的考虑,所有样品均在采集后48 h内完成检测分析,确保结果的科学可靠性[22,23].
对采集的水样进行藻属鉴定、细胞计数及致嗅物质检测. 4~11月共完成14次取样,每种工艺累计获得673个藻属数据点,嗅味物质共获取159个数据点,用于构建机器学习数据集. 针对数据集中出现的未检出值及缺失值,统一采用同工艺组该藻属以及此嗅味样本均值进行填补.
1.3 藻类的计数与分类取250 mL水样,过220 μm的滤膜,将滤膜放入10 mL蒸馏水中,加入转子,离心3 min. 将得到的藻类悬浮液倒入到10 mL离心管中,加入1%的卢戈氏碘液保存于4℃冰箱中,在48 h内完成藻类的计数与分类[24]. 进行藻类的计数与分类时,参照中国常见淡水藻类图谱[25],在400×显微镜下进行观测[26].
1.4 嗅味化合物的测定 1.4.1 嗅味化合物的预处理测定胞外嗅味物质时,使用一次性注射器吸取10 mL水样,使其通过0.22 μm滤膜,水样装于顶空进样瓶中,再加入3 g高纯度NaCl(预先在400℃下干燥2 h)[27]. 测定总嗅味物质时,取50 mL水样于离心管中,密封并放入-20 ℃冷冻机中,进行3次冻融循环[28],然后使用转速4 500 r·min-1离心30 min,之后,取10 mL水样装于顶空进样瓶中,再加入3 g高纯度NaCl.
1.4.2 嗅味化合物的检测方法使用的检测仪器为GC-MS(Agilent 8890 B 7000 GC/MSD,USA). 由于嗅味化合物的低浓度和挥发性,在检测之前必须进行浓缩和富集. 样品前处理采用固相顶空微萃取法[29]. GC-MS系统与PAL 3自动进样器集成. 所用萃取纤维为120 μm DVB/C-WR/PDMS(Agilent 5191-5874,USA),色谱柱为30 m×250 μm×0.25 μm(Agilent 122-7032,USA).
1.5 数据的分析及统计方法 1.5.1 随机森林回归分析随机森林回归是一种集成模型,它在数据集的随机子样本和子特征上拟合多个决策树回归,并使用平均值来产生最终预测结果[30]. 有许多学者证实了随机森林回归在探索变量之间的非线性关系方面是有效的[31,32]. 然而,随机森林模型通常被视为“黑盒”模型,因为它的预测可能难以解释. 为了解决这个问题,应用SHAP来量化随机森林模型预测的结果[33].
在本研究中,分析不同水处理工艺对各藻属的去除效能时,每个工艺系统输入包含不同时间段不同工艺进出水藻属组成及藻细胞数量的673组独立数据集. 以各藻属特征(分类与丰度)作为输入变量,构建随机森林模型,划分训练集和测试集,预测对应藻属的去除率,进而量化评估不同工艺对特定藻属的去除特性. 在进行藻源嗅味物质来源筛选时,每种嗅味物质下包含53组嗅味浓度数据,以各藻属特征(分类与丰度)以及嗅味物质变化作为输入变量,构建随机森林模型,划分训练集和测试集,预测在不同藻属条件下不同藻源嗅味物质的浓度,从而实现不同藻源嗅味物质来源的筛选.
另外,使用的超参数调优方法是网格搜索交叉验证(gridsearchcv)[34],通过定义包含随机森林关键超参数(如树的数量、最大深度、分裂节点所需最小样本数、叶节点最小样本数、特征选择方式和是否使用bootstrap抽样)的网格,采用五折交叉验证并以R2作为评估指标,系统性地测试所有可能的参数组合,最终选择在验证集上表现最佳的超参数配置来优化模型性能.
1.5.2 SHAP可解释性分析SHAP算法受经济学中Shapley值的启发,通过量化各合作成员在不同组合中的边际贡献,实现收益的公平分配[35]. 在机器学习的背景下,SHAP为预测中的每个特征分配一个贡献率,称为SHAP值,量化其对模型输出的影响[36]. 在本研究中,分析不同水处理工艺对各藻属的去除效能时,采用SHAP分析量化各藻属特征对去除率预测的贡献,进而评估各工艺对不同藻属的去除效果;在筛选藻源嗅味物质的主要来源藻属时,同样利用SHAP分析量化各藻属特征对嗅味物质生成的贡献,从而识别关键来源藻属.
1.5.3 数据处理与图形绘制柱状图、散点图和棒棒糖图等均使用Origin软件(2021版)绘制. 监测数据的处理、随机森林模型的构建、SHAP值的生成以及特征值-SHAP值总结图(蜜蜂群图)的生成均使用Python完成.
2 结果与讨论 2.1 水厂进厂水藻类群落特征及多级处理工艺去除效能分析对该水厂长期藻类群落监测结果显示,进厂水藻类群落结构呈现显著的藻门水平分布特征. 如图 1(a)所示,进厂水中的藻类以蓝菌门、绿藻门和硅藻门的藻类为主,其中蓝菌门占据绝对优势地位,其峰值丰度可达4 000万个·L-1;硅藻门次之,最高丰度为2 000万个·L-1;绿藻门峰值丰度为1 500万个·L-1. 相较之下,其他藻门(如甲藻门和裸藻门等)丰度显著较低,监测期间均维持在100万个·L-1阈值以下.

|
图 1 水厂进厂水藻类群落特征及各藻门类去除效能 Fig. 1 Algal community characteristics of the influent water and the removal efficiency of each algal phyla |
通过全流程追踪监测发现,水厂各工艺单元对优势藻类展现出差异化的去除效能. 如图1(b)~1(d)所示,进厂水经过混凝-沉淀、过滤和消毒工艺之后,水中的藻数量大幅度下降,蓝菌门丰度从原水的4 000万个·L-1逐级降至消毒后的 < 100万个·L-1,降幅达97.5%;硅藻门丰度由2 000万个·L-1下降至 < 10万个·L-1,降幅达99.5%;绿藻门则从1 500万个·L-1降低至 < 25万个·L-1,降幅达98.3%.
在整个除藻过程中,混凝-沉淀工艺能去除大部分藻类,其对蓝菌门的藻类去除率大于70%[37],对硅藻和绿藻门的藻类去除率均大于80%. 过滤工艺强化去除过程,经过过滤工艺处理后,3种藻类的去除率均达到了90%以上. 工艺分析表明,滤后出水中蓝菌门藻类呈现显著的穿透现象,其平均丰度超过50万个·L-1,最大丰度超过了200万个·L-1,这可能是因为蓝菌门的藻类形态大多为球状或链状,容易穿透滤池[38]. 透过滤池的藻类经过消毒处理后,其数量有所降低,出水中硅藻门的藻类保持在10万个·L-1之内,绿藻门的藻类保持在20万个·L-1之内,然而蓝菌门的藻类仍然保持在较高数量,数量最多时可达到120万个·L-1,对饮用水供水安全存在一定的威胁.
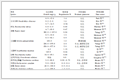
2.2 各处理工艺对不同藻属去除情况分析 2.2.1 随机森林模型预测效果本研究采用随机森林模型分别评估了各工艺对不同藻属的去除效能以及对藻源嗅味物质来源的初步筛选. 表 1所示的模型评价指标表明,模型在训练集和测试集上均表现出良好的预测性能(R2分别大于0.75和0.85). 需要说明的是,本研究数据来源于实际生产环境,具有复杂性高、干扰因素多和波动性大等特点. 在此条件下,模型仍能取得这样的性能,表明其已经有效捕捉到了工艺去除藻类及藻源嗅味物质生成的关键规律与主要特征,展现出良好的实用性. 因此,该预测性能为后续基于SHAP方法的深入分析提供了可靠基础,其分析结果对实际生产仍具有一定的指导意义.
|
表 1 模型预测效果 Table 1 Model prediction effect |
2.2.2 混凝-沉淀工艺对不同藻属去除情况分析
基于SHAP值的混凝-沉淀工艺敏感性分析如图 2所示,揭示了不同藻属对混凝-沉淀的差异化响应机制. 工艺敏感性排序如图 2(a1)所示,蓝菌门下的颤藻属对该工艺的敏感性最高,其平均绝对SHAP值为7.98,其次是鱼腥藻属(5.9)、鞘丝藻属(4.87)和项圈藻属(4.77);相较而言,螺旋藻属、拟浮丝藻属、假鱼腥藻属、平裂藻属和微囊藻属对该工艺的敏感性比较低,其SHAP值均在1以下;结合图 2(a2)特征值-SHAP值分析可知,颤藻属等高敏感藻属的特征值与SHAP值呈正相关,工艺对其去除稳定;微囊藻属和假鱼腥藻属等则特征值多位于SHAP负值区,表现出工艺抗性,易穿透沉淀池进入到滤池.

|
(a)蓝藻,(b)硅藻,(c)绿藻,其中SHAP总结图(蜜蜂群图),每条线代表一个特征 图 2 混凝-沉淀工艺下各藻属去除情况平均绝对SHAP值图和蜜蜂群图 Fig. 2 Mean absolute SHAP values and bee swarm plots for the removal status of each algal genera under coagulation-sedimentation process |
混凝-沉淀工艺对硅藻门下各藻属的敏感性排序如图 2(b1)所示,硅藻门下针杆藻属(4.81)对该工艺最为敏感,其次是菱形藻属(2.55)、舟形藻属(2.4)和桥弯藻属(2.16);而双菱藻属、星杆藻属及直链藻属对该工艺的敏感性很低,其SHAP值均小于0.2;图 2(b2)特征值-SHAP值总结图表现出相同的规律. 值得注意的是,硅藻门相较于蓝菌门工艺敏感性整体显著降低,这可能与硅藻特有的细胞壁硅质化结构相关[39],其高比表面积和稳定表面电荷特性显著降低了混凝剂的有效吸附[40].
混凝-沉淀工艺对绿藻门下各藻属的敏感性排序如图 2(c1)所示,该工艺对绿藻门下新月藻属(6.68)和卵巢藻属(4.94)最为敏感;对胶网藻属、鞘藻属、盘星藻属、十字藻属、小球藻属、多芒藻属和四孢藻属的敏感性很弱,SHAP值均低于0.1;对照图 2(c2)特征值-SHAP总结图来看,低敏感性藻属的特征值数据点呈现离散分布,结合进水藻类数据分析,这可能与其低丰度特征导致的统计显著性不足有关,其余绿藻属的特征值与SHAP值呈中度正相关,表明工艺对其具有普适性去除能力.
2.2.3 过滤工艺对不同藻属去除情况分析过滤工艺对蓝菌门下各藻属的敏感性排序如图 3(a1)所示,蓝菌门下项圈藻属对过滤工艺最为敏感,其平均绝对SHAP值为30.59,其次是鱼腥藻属(25.67)和假鱼腥藻属(15.06);而鞘丝藻属、拟浮丝藻属、螺旋藻属和鞘丝藻属对过滤工艺的敏感性较弱,其SHAP值均在1.0以内;对照图 3(a2)特征值-SHAP值总结图分析,微囊藻属等敏感性高的藻属正相关明显,去除效能较好;而项圈藻属等敏感性较弱的藻属特征值多分布在基线0附近,这说明过滤工艺对这些藻属的去除效果一般,这可能与藻丝体形态有关.

|
(a)蓝藻,(b)硅藻,(c)绿藻,其中SHAP总结图(蜜蜂群图),每条线代表一个特征 图 3 过滤工艺下各藻属去除情况平均绝对SHAP值图和蜜蜂群图 Fig. 3 Mean absolute SHAP values and bee swarm plots for the removal status of each algal genera under filtration process |
过滤工艺对硅藻门下各藻属的敏感性排序如图 3(b1)所示,硅藻门下舟形藻(28.47)属对过滤工艺最为敏感,其次是针杆藻属(7.41)和直链藻属(5.49),而双菱藻属及星杆藻属对该工艺的敏感性较弱,其SHAP值均低于1.0;由图 3(b2)可知,桥弯藻属和菱形藻属的特征值大多集中在SHAP值的负值区域,这两种藻属的藻类有穿透滤池的风险;其余藻属特征值均表现出与SHAP值的正相关关系,说明过滤工艺能够有效地去除这些藻属,穿透滤池的风险较小.
过滤工艺对绿藻门下各藻属的敏感性排序如图 3(c1)所示,绿藻门下弓形藻属(45.05)对过滤工艺最为敏感,其次是腔球藻属(42.94)、鼓藻属(26.12)和棒形鼓藻属(22.14),而盘星藻属、四角藻属、胶网藻属和星极藻属的SHAP值为0. 结合图 3(c2)来看,四角藻属、胶网藻属和叉星鼓藻属仅在基线0处存在单一样本点,说明在混凝-沉淀工艺阶段即已被有效去除. 其他绿藻属的特征值均呈现显著的正SHAP值分布,且未观察到特征值在负向区域的聚集现象,平均绝对SHAP值大的藻属正相关性越明显,这说明过滤工艺对绿藻门具有广谱去除效能,滤后出水中绿藻门穿透现象极为有限.
2.2.4 消毒工艺对不同藻属去除情况分析如图 4所示,消毒工艺对各藻门不同属种的去除效能存在显著差异. 如图 4(a1)所示,蓝菌门下颤藻属对消毒工艺最为敏感,其平均绝对SHAP值为3.05,其次是小球藻属(2.52)和束丝藻属(2.4),而项圈藻属、螺旋藻属、鱼腥藻属和拟浮丝藻属的SHAP值均低于1.0,对消毒工艺的敏感性比较弱;特征值-SHAP值总结如图 4(a2)所示,颤藻属、鱼腥藻属、假鱼腥藻属和螺旋藻属的藻类,其特征值与SHAP值均表现出正相关关系,说明氯消毒对上述藻属的藻类均有一定的灭活效果,而束丝藻属、微囊藻属和色球藻属的负相关性明显,说明消毒工艺对上述藻属的灭活作用很弱.

|
(a)蓝藻,(b)硅藻,(c)绿藻,其中SHAP总结图(蜜蜂群图),每条线代表一个特征 图 4 消毒工艺下各藻属去除情况平均绝对SHAP值图和蜜蜂群图 Fig. 4 Mean absolute SHAP values and bee swarm plots for the removal status of each algal genera under disinfection process |
如图 4(b1)所示,硅藻门下小环藻属(12.09)对消毒工艺最为敏感,其次是菱形藻属(7.11)和针杆藻属(2.85),除上述几种藻属之外,硅藻门下的各藻属的SHAP值均保持在2.0以下,短缝藻属、双菱藻属及星杆藻属的SHAP值均为0;结合图 4(b2)特征值-SHAP值总结图分析,消毒工艺对小环藻属等敏感性强的藻属的灭活效果比较好,短缝藻属等敏感性为0的藻属在混凝-沉淀和过滤工艺中均被有效去除,其余硅藻门的藻属消毒工艺均表现出有限的消除效能,这可能是由于硅藻细胞壁外层二氧化硅层抵抗不利环境所导致的[41].
如图 4(c1)所示,绿藻门下四孢藻属(18.02)对消毒工艺最为敏感,其次是四角藻属(13.51)和月牙藻属(7.4),而十字藻属、顶棘藻属、纤维藻属、鞘藻属、韦斯藻属、多芒藻属和鼓藻属等藻属的平均绝对SHAP值均在1.0以下,其中十字藻属、顶棘藻属和纤维藻属的SHAP值为0;结合图 4(c2)特征值-SHAP值总结图来看,SHAP为0的原因与上文中提到的相同是由于藻类在前工艺中被有效去除,而其余藻属消毒工艺对其均表现出一定的灭活效果,具体规律表现为藻数量越多的藻属,特征值与SHAP值的正相关性就越强.
2.2.5 不同工艺下各藻属去除情况小结水厂不同工艺对各种藻属去除情况如表 2所示,从中可知,蓝菌门下和绿藻门下穿透风险比较高的藻属较多,如微囊藻属、拟浮丝藻属、直链藻属和双菱藻属等,而绿藻门下的各藻属由于3种工艺都对其有比较好的去除效果导致其穿透风险比较低. 当水源地出现藻类暴发或者出厂水中检测到藻类超标时,水厂可以分析其主要的藻属,根据不同的藻属对不同工艺的敏感性差异入手,制定合适的解决方案,以达到有效的控藻的目的. 例如,微囊藻属的藻类暴发时,笔者发现混凝-沉淀工艺以及消毒工艺对微囊藻属的去除效果受限,可以通过延长沉淀时间,增加混凝剂的量或者适当地增大氯消毒剂的浓度来降低微囊藻的数量.
|
|
表 2 不同藻属去除效果总结 Table 2 Summary of removal efficacy for algal genera |
2.3 穿透水厂的各藻属情况分析
进厂水经过混凝-沉淀、过滤和消毒工艺处理之后,综合其进厂藻类占比及去除率发现[图5(a)、5(c)和5(e)],进厂水中藻密度较高的藻类,去除率较低,如蓝菌门下的鱼腥藻属和束丝藻属,硅藻门下的小环藻属以及绿藻门下的衣藻属和小球藻属,并对易穿透藻属的具体分布情况做简要分析.

|
图 5 各藻属去除率及出厂水中各藻属分布情况 Fig. 5 Removal rates of each algal genera and their distribution in effluent water |
蓝菌门各藻属的分布情况如图 5(b)所示,从中可知,鱼腥藻属、假鱼腥藻属、颤藻属和微囊藻属在整个监测期内均被监测到,其数量大多都分布在10万个·L-1以内,但在藻类暴发期,鱼腥藻属的数量会超过40万个·L-1,假鱼腥藻属、颤藻属和微囊藻属的数量也会达到20万个·L-1;束丝藻属在监测期内有6次被监测到,色球藻属和平裂藻属有3次被监测到,其数量均在10万个·L-1以内.
出厂水中硅藻门下各藻属的分布情况如图 5(d)所示,硅藻门下的各藻属在出厂水中的数量都比较少,均保持在5万个·L-1以内,其中监测到次数比较多的主要是小环藻属,在藻类暴发时期,其数量可能会达到5万个·L-1,其余藻属被监测到的次数比较少,数量也相对较少;绿藻门下各藻属的分布情况如图 5(f)所示,出厂水中能监测到的绿藻门下的藻属比较多,其数量大多保持在5万个·L-1以内,其中在监测期内出现比较频繁的是衣藻属,其数量最大时可达到20万个·L-1,另外,小球藻数量最大时也可达到20万个·L-1.
综合来看,出厂水中的藻类以蓝菌门的藻类为主,大约可占到总数的70%以上,其次是绿藻门的藻类,硅藻门的藻类最少. 杨丽琴[42]在监测深圳市宝安区朱坳水厂出厂水中发现了多种蓝菌门藻类,未检测出其他类型的藻类,这与本实验的结果基本一致.
2.4 藻源嗅味物质来源分析不同工段胞内2-MIB的含量如图 6(a)所示,随着工艺流程的推进,胞内2-MIB的含量表现出衰减趋势,但出水中仍含有大量的胞内2-MIB,最高质量浓度可达60 ng·L-1,远超国家标准规定的阈值10 ng·L-1(GB 5749⁃2022),致嗅风险较高. 2-MIB的特征重要性分析如图 6(b)所示,鱼腥藻属是2-MIB的主要来源[43,44],其特征重要值为0.33,其次是曲壳藻属,其特征重要值为0.26. 结合图 6(c)特征值-SHAP值总结图来看,鱼腥藻属的特征值与SHAP值呈现显著正相关,说明鱼腥藻属是该水厂2-MIB的主要来源[45],而曲壳藻属的特征值与SHAP的正相关性不明显,其是否为2-MIB的生物来源有待进一步证实.

|
图 6 不同日期各个工段的胞内嗅味物质含量及不同藻源嗅味来源的特征重要性及SHAP特征贡献分布 Fig. 6 Intracellular odor compound content across treatment stages on different dates, along with feature importance for algal-derived odor sources, and SHAP contribution distribution |
不同工段胞内GSM含量如图 6(d)所示,进厂水中胞内GSM质量浓度始终保持在4ng·L-1以内. 而经过混凝-沉淀和过滤工艺之后,几乎没有检测到GSM. 其特征重要性图以及特征值-SHAP值总结图如图6(e)和6(f)所示,可以发现GSM的主要生物源为颤藻属[46,47],其特征值为0.39,并且其特征值与SHAP值呈现明显的正相关,其他藻属的藻类与GSM的相关性较弱.
不同工段胞内β-cyclo质量浓度如图 6(g)所示,进厂水中其质量浓度最高可达到20 ng·L-1,经过水厂工艺处理之后,含量大幅度下降,监测得到的嗅味值均保持在5 ng·L-1内,有关研究表明,β-cyclo的嗅阈值大约为16 ng·L-1,所以在该水厂β-cyclo的致嗅风险比较低. 特征重要性图以及特征值-SHAP值总结图如图6(h)和6(i)所示,微囊藻属的特征值为0.3,特征值与SHAP值呈现出显著的正相关关系,而其他藻属的特征值与SHAP值无明显的相关性关系,可以证明β-cyclo的主要生物源为微囊藻属[48~50].
综上所述,容易对该水厂造成致嗅威胁的主要嗅味物质为2-MIB,2-MIB的主要生物源为鱼腥藻属,根据前期的工艺评估可知,混凝-沉淀工艺对鱼腥藻的去除效果显著,当原水中出现鱼腥藻增多或者水厂2-MIB浓度接近阈值(10 ng·L-1)时,水厂可以通过增加混凝剂、延长沉淀时间等方法来去除鱼腥藻,防止嗅味事件的发生. 同理,若该水厂GSM或者β-cyclo超标时,水厂要重点监测颤藻属和微囊藻属的数量,并通过调节滤池参数或者消毒剂的剂量预防嗅味事件的发生.
3 结论(1)经过水厂混凝-沉淀、过滤和消毒工艺处理后,仍会有一部分藻类穿透水厂工艺,其中硅藻门的藻类保持在10万个·L-1之内,绿藻门的藻类保持在20万个·L-1之内,而蓝菌门的藻类数量较多,最多时可达到120万个·L-1.
(2)通过SHAP可解释性分析得出混凝-沉淀工艺对颤藻属和针杆藻属去除高效,但微囊藻属和拟浮丝藻属易穿透;过滤工艺对多数藻属效果显著,但鞘丝藻属因藻丝形态仍存在穿透风险;消毒工艺对颤藻属和鱼腥藻属灭活效果突出.
(3)2-MIB、GSM和β-cyclo的致嗅源分别对应鱼腥藻属、颤藻属和微囊藻属. 当水厂出水出现嗅味风险时,可初步筛查上述致嗅藻属的生物量是否显著增加. 若检出目标藻属增殖,可根据不同藻类特性针对性地调控水厂工艺参数,靶向抑制藻类穿透与嗅味风险.
| [1] | Villacorte L O, Tabatabai S A A, Anderson D M, et al. Seawater reverse osmosis desalination and (harmful) algal blooms[J]. Desalination, 2015, 360: 61-80. DOI:10.1016/j.desal.2015.01.007 |
| [2] | Rousso B Z, Bertone E, Stewart R, et al. A systematic literature review of forecasting and predictive models for cyanobacteria blooms in freshwater lakes[J]. Water Research, 2020, 182. DOI:10.1016/j.watres.2020.115959 |
| [3] | Jalili F, Trigui H, Guerra Maldonado J F, et al. Can cyanobacterial diversity in the source predict the diversity in sludge and the risk of toxin release in a drinking water treatment plant?[J]. Toxins, 2021, 13(1). DOI:10.3390/toxins13010025 |
| [4] | Li H Y, Bai M D, Yang X T, et al. OH pre-treatment of algae blooms and degradation of microcystin-LR in a drinking water system of 480 m3/day: comparison with ClO2 [J]. Chemical Engineering Journal, 2019, 367: 189-197. DOI:10.1016/j.cej.2019.02.143 |
| [5] | Abdallah M F, Van Hassel W H R, Andjelkovic M, et al. Cyanotoxins and food contamination in developing countries: review of their types, toxicity, analysis, occurrence and mitigation strategies[J]. Toxins, 2021, 13(11). DOI:10.3390/TOXINS13110786 |
| [6] |
张海涵, 苗雨甜, 黄廷林, 等. 典型水环境微生物源异嗅物研究进展[J]. 环境科学, 2020, 41(11): 5201-5214. Zhang H H, Miao Y T, Huang T L, et al. Advances in microbe-derived taste and odor compounds in typical aquatic ecosystems[J]. Environmental Science, 2020, 41(11): 5201-5214. DOI:10.13227/j.hjkx.202003135 |
| [7] | Chen J, Xie P, Ma Z M, et al. A systematic study on spatial and seasonal patterns of eight taste and odor compounds with relation to various biotic and abiotic parameters in Gonghu Bay of Lake Taihu, China[J]. Science of the Total Environment, 2010, 409(2): 314-325. DOI:10.1016/j.scitotenv.2010.10.010 |
| [8] | Su M, Yu J W, Zhang J Z, et al. MIB-producing cyanobacteria (Planktothrix sp.) in a drinking water reservoir: distribution and odor producing potential[J]. Water Research, 2015, 68: 444-453. DOI:10.1016/j.watres.2014.09.038 |
| [9] | Zamyadi A, Henderson R, Stuetz R, et al. Fate of geosmin and 2-methylisoborneol in full-scale water treatment plants[J]. Water Research, 2015, 83: 171-183. DOI:10.1016/j.watres.2015.06.038 |
| [10] | Devi A, Chiu Y T, Hsueh H T, et al. Quantitative PCR based detection system for cyanobacterial geosmin/2-methylisoborneol (2-MIB) events in drinking water sources: current status and challenges[J]. Water Research, 2021, 188. DOI:10.1016/j.watres.2020.116478 |
| [11] | Song Q, Niu X J, Zhang D Q, et al. The behaviors of Microcystis aeruginosa and microcystins during the Fe2+/persulfate (PS) preoxidation-coagulation and flocs storage period[J]. Environmental Research, 2020, 186. DOI:10.1016/j.envres.2020.109549 |
| [12] | Zhang X R, Xu W, Ren P F, et al. Effective removal of diatoms (Synedra sp.) by pilot-scale UV/chlorine-flocculation process[J]. Separation and Purification Technology, 2022, 302. DOI:10.1016/j.seppur.2022.122117 |
| [13] | Wert E C, Rosario-Ortiz F L. Intracellular organic matter from cyanobacteria as a precursor for carbonaceous and nitrogenous disinfection byproducts[J]. Environmental Science & Technology, 2013, 47(12): 6332-6340. |
| [14] | Xu H Z, Zhang J, Wang W J, et al. Moderate pre-ozonation coupled with a post-peroxone process remove filamentous cyanobacteria and 2-MIB efficiently: from bench to pilot-scale study[J]. Journal of Hazardous Materials, 2022, 424. DOI:10.1016/j.jhazmat.2021.127530 |
| [15] | An L L, Xu X, Yan F, et al. Simultaneous removal of cyanobacteria and algal organic matter by Mn(Ⅶ)/CaSO3 enhanced coagulation: performance and mechanism[J]. Journal of Hazardous Materials, 2025, 485. DOI:10.1016/j.jhazmat.2024.136839 |
| [16] | Han Y T, Zheng J J, Jiang C, et al. Hydrochloric acid-modified algal biochar for the removal of Microcystis aeruginosa: coagulation performance and mechanism[J]. Journal of Environmental Chemical Engineering, 2022, 10(6). DOI:10.1016/j.jece.2022.108903 |
| [17] | Zamyadi A, Dorner S, Sauvé S, et al. Species-dependence of cyanobacteria removal efficiency by different drinking water treatment processes[J]. Water Research, 2013, 47(8): 2689-2700. DOI:10.1016/j.watres.2013.02.040 |
| [18] |
马晓雁, 张泽华, 王红宇, 等. 高铁酸钾对水中藻类及其次生嗅味污染物二甲基三硫醚同步去除研究[J]. 环境科学, 2013, 34(5): 1767-1772. Ma X Y, Zhang Z H, Wang H Y, et al. Simultaneous removal of algae and its odorous metabolite dimethyl trisulfide in water by potassium ferrate[J]. Environmental Science, 2013, 34(5): 1767-1772. |
| [19] | Henderson R K, Parsons S A, Jefferson B. The impact of differing cell and algogenic organic matter (AOM) characteristics on the coagulation and flotation of algae[J]. Water Research, 2010, 44(12): 3617-3624. DOI:10.1016/j.watres.2010.04.016 |
| [20] |
张璟. 臭氧适度预氧化耦合臭氧/过氧化氢深度处理去除丝状蓝藻及嗅味物质[D]. 济南: 山东大学, 2021. Zhang J. Removal of filamentous cyanobacteria and odorants by ozone moderate pre-oxidation coupled with ozone/hydrogen advanced treatment[D]. Ji'nan: Shandong University, 2021. |
| [21] |
黄孟斌, 邵志昌, 杨颂, 等. 深圳市某水厂嗅味物质全流程控制技术应用[J]. 净水技术, 2020, 39(11): 159-163, 168. Huang M B, Shao Z C, Yang S, et al. Application of full-flow control technology for odorous substance in a water treatment plant in Shenzhen City[J]. Water Purification Technology, 2020, 39(11): 159-163, 168. |
| [22] |
王淑芳. 城市水体藻源异味物质的时空分布及影响因素解析[D]. 武汉: 武汉理工大学, 2022. Wang S F. Temporal and spatial distribution and influencing factors of the taste and odor compounds from algae in urban water of Wuhan[D]. Wuhan: Wuhan University of Technology, 2022. |
| [23] | Chen X C, Luo Q, Yuan S G, et al. Simultaneous determination of ten taste and odor compounds in drinking water by solid-phase microextraction combined with gas chromatography-mass spectrometry[J]. Journal of Environmental Sciences, 2013, 25(11): 2313-2323. DOI:10.1016/S1001-0742(12)60290-3 |
| [24] | Cheng Y, Wang K T, Ma C Y, et al. Chlorine-algae interactions: novel insights into odor-producing capacity and degradation pathways of odorous substances[J]. Journal of Environmental Chemical Engineering, 2025, 13(5). DOI:10.1016/j.jece.2025.117809 |
| [25] |
翁建中, 徐恒省. 中国常见淡水浮游藻类图谱[M]. 上海: 上海科学技术出版社, 2010. Weng J Z, Xu H S. Atlas of common freshwater phytoplankton in China[M]. Shanghai: Shanghai Scientific & Technical Publishers, 2010. |
| [26] | Fan J J, Rao L, Chiu Y T, et al. Impact of chlorine on the cell integrity and toxin release and degradation of colonial Microcystis[J]. Water Research, 2016, 102: 394-404. DOI:10.1016/j.watres.2016.06.053 |
| [27] |
吴佳佳. 蓝藻及其致嗅物在供水管网中的归趋规律研究[D]. 杭州: 浙江大学, 2022. Wu J J. The fate of cyanobacteria and odorants in drinking water distribution systems[D]. Hangzhou: Zhejiang University, 2022. |
| [28] |
李素芳, 周娜芬, 龚忆平, 等. 顶空固相微萃取气相色谱-质谱法同时测定饮用水及其水源中4种嗅味物质[J]. 化学分析计量, 2025, 34(2): 108-112. Li S F, Zhou N F, Gong Y P, et al. Simultaneous determination of 4 odorants in drinking water and its source water by solid phase microextraction combine with gas chromatography-mass spectrometry[J]. Chemical Analysis and Meterage, 2025, 34(2): 108-112. |
| [29] | Park J A, Nam H L, Choi J W, et al. Oxidation of geosmin and 2-methylisoborneol by the photo-Fenton process: kinetics, degradation intermediates, and the removal of microcystin-LR and trihalomethane from Nak-Dong River water, South Korea[J]. Chemical Engineering Journal, 2017, 313: 345-354. DOI:10.1016/j.cej.2016.12.086 |
| [30] | Liu T, Wang M S, Wang M Y, et al. Identification of the primary pollution sources and dominant influencing factors of soil heavy metals using a random forest model optimized by genetic algorithm coupled with geodetector[J]. Ecotoxicology and Environmental Safety, 2025, 290. DOI:10.1016/j.ecoenv.2025.117731 |
| [31] | Gao Y J, Zhao J Y, Han L. Quantifying the nonlinear relationship between block morphology and the surrounding thermal environment using random forest method[J]. Sustainable Cities and Society, 2023, 91. DOI:10.1016/j.scs.2023.104443 |
| [32] | Wang Y Y, Chen X, Gao M, et al. The use of random forest to identify climate and human interference on vegetation coverage changes in southwest China[J]. Ecological Indicators, 2022, 144. DOI:10.1016/j.ecolind.2022.109463 |
| [33] |
陶静, 张宝辉, 杨博, 等. 基于机器学习的油水层解释新方法——以新安边油田南部长7油层组为例[J]. 西安石油大学学报(自然科学版), 2023, 38(2): 89-95. Tao J, Zhang B H, Yang B, et al. A New method for oil/water layer interpretation based on machine learning: taking Chang 7 oil layer group in south of Xin'anbian oilfield as an example[J]. Journal of Xi'an Shiyou University (Natural Science Edition), 2023, 38(2): 89-95. |
| [34] | Zhu S J, Yan Y, Zhao B, et al. Assessing the impact of adjacent urban morphology on street temperature: a multisource analysis using random forest and SHAP[J]. Building and Environment, 2025, 267. DOI:10.1016/j.buildenv.2024.112326 |
| [35] | Lei K, Wang M Y, Wang M S, et al. SHAP explainable PSO-CNN-BiLSTM for 6-hour prediction analysis of urban PM2.5 and O3 concentrations[J]. Atmospheric Pollution Research, 2025. DOI:10.1016/j.apr.2025.102705 |
| [36] | Li Z Q. Extracting spatial effects from machine learning model using local interpretation method: an example of SHAP and XGBoost[J]. Computers, Environment and Urban Systems, 2022, 96. DOI:10.1016/j.compenvurbsys.2022.101845 |
| [37] | Song W J, Xie Y, Chen Q H, et al. Investigation of polyaluminum chloride (PACl) coagulation to remove cyanobacteria from maintenance to decay stage: performance and mechanism[J]. Journal of Environmental Chemical Engineering, 2022, 10(5). DOI:10.1016/j.jece.2022.108395 |
| [38] | Singh P, Khan A, Srivastava A. Chapter 16 - Heterocyst and akinete differentiation in cyanobacteria: a view toward cyanobacterial symbiosis[A]. SinghP K, KumarA, SinghV K, et al (Eds. . Advances in Cyanobacterial Biology[M]. London: Academic Press, 2020. 235-248. |
| [39] | Yang C F, Feng C, Li Y H, et al. Morphological and physicochemical characteristics, biological functions, and biomedical applications of diatom frustule[J]. Algal Research, 2023, 72. DOI:10.1016/j.algal.2023.103104 |
| [40] | Henderson R, Parsons S A, Jefferson B. The impact of algal properties and pre-oxidation on solid–liquid separation of algae[J]. Water Research, 2008, 42(8-9): 1827-1845. DOI:10.1016/j.watres.2007.11.039 |
| [41] | Pardo I, Delgado C, Abraín R, et al. A predictive diatom-based model to assess the ecological status of streams and rivers of Northern Spain[J]. Ecological Indicators, 2018, 90: 519-528. DOI:10.1016/j.ecolind.2018.03.042 |
| [42] |
杨丽琴. 强化水厂常规处理工艺对硅藻去除效果的研究[D]. 北京: 清华大学, 2014. Yang L Q. Enhancement of conventional treatment processes for diatom removal in water plants[D]. Beijing: Tsinghua University, 2014. |
| [43] |
刘佳鑫, 徐孟欣, 苑芳惠, 等. 典型藻源嗅味物质的产生及检测方法研究进展[J]. 应用与环境生物学报, 2025, 31(12): 1987-1999. Liu J X, Xu M X, Yuan F H, et al. Review on production and detection methods of odor substances from typical algal sources[J]. Chinese Journal of Applied and Environmental Biology, 2025, 31(12): 1987-1999. |
| [44] | Wang Z J, Li R H. Effects of light and temperature on the odor production of 2-methylisoborneol-producing Pseudanabaena sp. and geosmin-producing Anabaena ucrainica (cyanobacteria)[J]. Biochemical Systematics and Ecology, 2015, 58: 219-226. DOI:10.1016/j.bse.2014.12.013 |
| [45] | Izaguirre G, Taylor W D. A guide to geosmin- and MIB-producing cyanobacteria in the United States[J]. Water Science and Technology, 2004, 49(9): 19-24. DOI:10.2166/wst.2004.0524 |
| [46] | Lee J, Rai P K, Jeon Y J, et al. The role of algae and cyanobacteria in the production and release of odorants in water[J]. Environmental Pollution, 2017, 227: 252-262. DOI:10.1016/j.envpol.2017.04.058 |
| [47] | Suurnäkki S, Gomez-Saez G V, Rantala-Ylinen A, et al. Identification of geosmin and 2-methylisoborneol in cyanobacteria and molecular detection methods for the producers of these compounds[J]. Water Research, 2015, 68: 56-66. DOI:10.1016/j.watres.2014.09.037 |
| [48] | Zhang K J, Gao N Y, Yen H K, et al. Degradation and formation of wood odorant β-cyclocitral during permanganate oxidation[J]. Journal of Hazardous Materials, 2011, 194: 362-368. DOI:10.1016/j.jhazmat.2011.07.108 |
| [49] | Wang X J, Cao H S, Zhu Y J, et al. β-cyclocitral induced rapid cell death of Microcystis aeruginosa [J]. Environmental Pollution, 2024, 348. DOI:10.1016/j.envpol.2024.123824 |
| [50] | Lin Y, Cheng C Y, Dai Y T, et al. The origins of odor (β-cyclocitral) under different water nutrient conditions: algae or submerged plants?[J]. Science of the Total Environment, 2024, 931. DOI:10.1016/j.scitotenv.2024.173024 |