 2026, Vol. 47


2. 重庆市合川区生态环境监测站,重庆 401500
 , HU Yong-qing1 , ZHANG Jing-xi2 , WANG Zi-fang1 , DAI Wen-cai1 , YAN Ning-zhen1 , GAO Ming1

2. Hechuan District Ecological Environment Monitoring Station, Chongqing 401500, China
土地利用强度是调控土壤生态系统功能与可持续性的关键因子,尤其在农业集约化背景下,其通过改变土壤理化性质与生物特性深刻影响微生物群落结构与功能[1,2]. 有研究表明,高强度土地利用易引发土壤酸化、有机质流失以及养分失衡[3],进而筛选出具有特定代谢策略的微生物类群[4]. 例如,华北潮土区研究发现,长期集约化土地利用促使变形菌门、厚壁菌门和拟杆菌门富集,而酸杆菌门丰度显著下降[5],其变化与土壤pH降低及碳源利用模式转变密切相关[6]. 热带地区,厚壁菌门在某些胁迫条件下(如干旱或养分变化)会逐渐发展为优势种群,其功能代偿性调整进一步印证了微生物对胁迫环境的适应性响应[7]. 同时环境压力可显著驱动微生物功能特征的重组. 有研究表明,在胁迫条件下,微生物群落的代谢多样性普遍下降,而抗逆相关基因的丰度呈现上升趋势[8]. 例如,受污染土壤中抗生素抗性基因(ARGs)的丰度与多样性显著增加,揭示了微生物通过基因水平转移增强环境适应性的潜在机制[9];进一步研究发现,氧化应激条件下抗性基因的水平转移频率提升,表明微生物可通过动态调控基因表达应对胁迫环境[8,10],上述研究共同表明,环境压力可能促使微生物群落从广泛的代谢功能向防御专一性策略转变[11,12].
紫色土是中国西南地区广泛分布的一种重要土壤类型,主要分布在四川盆地和重庆地区,因其母质特性,具有较高的矿质养分含量和较好的保水保肥能力,是我国重要的农业土壤之一. 然而随着农业集约化程度的提高,高强度土地利用导致紫色土的酸化、养分流失和有机质含量下降[13],影响了土壤微生物群落的多样性和功能[14,15],但目前针对该区域微生物群落对土地利用强度的响应机制研究较少,土地利用强度对紫色土微生物功能基因表达、垂直分异性及生态网络互作的系统性还不十分清楚. 因此,本文以重庆市九龙坡区的紫色土为研究对象,通过长期定位试验结合高通量测序与功能预测研究不同土地利用强度下土壤养分、微生物群落结构、多样性、功能及生态网络的变化,旨在为紫色土区耕地可持续利用和生态保护提供理论支撑.
1 材料与方法 1.1 试验地概况试验区位于重庆市九龙坡区西彭镇元明村三组,土壤类型为侏罗系中统沙溪庙组母质发育的灰棕紫泥土,该区地理位置经纬度为29°20′23″N,106°17′11″E,海拔290 m,属亚热带季风湿润气候,年平均降水量为1 029 mm,全年无霜期342 d,年平均气温16~18 ℃.
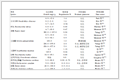
1.2 试验设计Kuemmerle[16]将土地利用强度的定量指标分为投入指标(肥料投入量、耕作频率)与产出指标(产量、资本生产率等). 本试验用肥料投入量表征土地利用强度. 本试验采用田间试验的方法,于2012年3月在重庆市九龙坡区西彭镇元明村三组开始试验,共设置6个处理:①休闲(CK),不种植作物;②低强度利用(P1),一年种植一季玉米;③中低强度利用(P2),一年种植两季作物,实行油菜/玉米套作;④中强度利用(P3),一年种植三季蔬菜;⑤中高强度利用(P4),一年种植四季蔬菜;⑥高强度利用(P5),一年种植五季蔬菜. 每个处理3个重复,每个小区面积30 m2,随机区组排列. 各处理均为连续种植10 a以上,种植作物为当地推广引用的玉米、油菜和蔬菜品种. 本试验施用的氮肥、磷肥、钾肥分别为尿素(N 46%)、过磷酸钙(P2O5 12%)和硫酸钾(K2O 52%),有机肥为猪粪. 有机肥、磷肥和钾肥作底肥一次性施,氮肥P1和P2处理70%作底肥施用,30%在生长旺期作追肥,P3、P4和P5处理氮肥每季50%作底肥,50%作追肥,各处理肥料具体施用量见表 1.
|
表 1 不同利用强度施肥量 Table 1 Fertilization scale for different utilization intensities |
1.3 样本采集与测定
于2023年3月22日采集土壤,在不同利用强度的小区内,采用“五点法”随机选取5个采样点. 分别采集0~20 cm和20~40 cm深度的土壤样品,采集的土样在去除根系和小石子后进行均匀混合,并采用四分法保留约1 kg的土壤. 将部分鲜样置于4 ℃冰箱中,用于土壤微生物指标的测定,且需在48 h内完成分析. 其余的土样置于室内牛皮纸上风干至恒重,之后分别研磨通过2 mm和0.15 mm筛网,储存备用,用于后续的土壤理化性质分析. 土壤样品采用电位法测定土壤pH(水土比为2.5∶1),重铬酸钾容量法测定土壤有机碳含量,NaOH水解测定土壤碱解氮,0.5 mol·L-1NaHCO3浸提-钼锑抗分光光度法测定有效磷含量,乙酸铵浸提-火焰光度法测定速效钾含量,具体操作参照《土壤农化分析与环境检测》.
土壤总DNA的提取采用DNA试剂盒进行,提取的总DNA通过1.0%琼脂糖凝胶电泳进行检测,使用引物338F和806R对提取的16S rRNA基因进行PCR扩增,扩增产物通过2%琼脂糖凝胶电泳检测,使用NEXTFLEX Rapid DNA-Seq Kit对PCR产物进行建库,利用Illumina NextSeq2000平台进行测序,获取ASV(amplicon sequence variant)代表序列及其丰度信息进行物种分类、群落多样性、物种差异及相关性分析.
1.4 数据处理利用Microsoft Excel 2016对数据进行整理;利用SPSS 25.0对数据进行单因素方差分析;用LSD法进行多重比较做显著性分析;采用Pearson相关性分析;利用Origin 2022进行数据的可视化;利用mothur计算不同随机抽样下的α多样性指数,PCA(principal component analysis)分析采用R语言(version 3.3.1)进行统计分析和作图;运用R语言(version 3.3.1)和距离矩阵Qiime(V1.9.1)进行β多样性组间差异分析;利用Circos-0.67-7绘制细菌群落Circos图;群落柱状图利用R语言(version 3.3.1)工具进行绘制;利用PICRUSt2(phylogenetic investigation of communities by reconstruction of unobserved states)对16S测序数据进行功能预测. 基于随机矩阵(RMT),利用http://ieg4.rccc.ou.edu/mena/构建不同土地利用强度的微生物群落生态网络,利用Network Analyzer分析获得不同土地利用强度的微生物群落生态网络的特征路径长度、连接数、节点数、聚集系数、网络密度和平均连通度等随机网络拓扑参数.
2 结果与分析 2.1 不同土地利用强度对土壤pH、有机质及养分含量的影响从图 1(a)可以看出,不同土层的土壤pH值存在显著差异,表层土壤(0~20 cm)pH整体低于底层土壤(20~40 cm). 整体趋势上,无论是表层土还是底层土,随着土地利用强度增加,土壤pH值均呈显著降低趋势(P < 0.05),各处理土壤pH值大小排序为:CK > P1 > P2 > P3 > P4 > P5. 图 1(b)可以发现,从整体来看,在两个土层中,与CK相比,P1处理的土壤有机质含量有显著提升(P < 0.05),而P2~P5处理的土壤有机质含量均显著降低(P < 0.05).

|
不同小写字母表示不同处理的显著性差异(P < 0.05) 图 1 不同土地利用强度对土壤pH、有机质及养分指标的影响 Fig. 1 Effects of land use intensity on soil pH, organic matter, and nutrient indicators |
从图1(c)~1(e)可以看出,随着处理强度从CK增至P5,0~20 cm土层ω(AN)从90 mg·kg-1增至165 mg·kg-1,20~40 cm土层从49 mg·kg-1增至123 mg·kg-1,表层含量始终高于底层(P < 0.05). P5处理较CK的增幅在表层达77%,底层达147%,表明土地利用强度对深层土壤碱解氮的影响更显著. 土壤有效磷随利用强度增强而显著升高(P < 0.05),各处理表层有效磷含量均高于底层,高强度利用对表层影响更突出. 土壤速效钾含量同样随利用强度增强显著上升(P < 0.05),0~20 cm土层ω(AK)(143~593 mg·kg-1)显著高于20~40 cm土层(61~483 mg·kg-1),P1~P2处理间速效钾含量无显著差异(P > 0.05),表明低和中低强度利用对土壤速效钾含量影响有限. 总体而言,高强度利用(P5)对各养分提升显著,其中碱解氮在深层土壤响应最敏感,有效磷和速效钾则在表层表现出更强的响应.
2.2 不同土地利用强度对土壤微生物多样性的影响图 2(a)可以看出,不同处理组的β多样性存在明显差异,从高到低排序为:P3 > P4 > P2 > P5 > CK > P1,整体随土地利用强度增加而呈现先增后减的趋势,其中P3处理的β多样性最高,说明P3处理下的土壤细菌群落与其他处理组相比,物种组成差异较大. 图 2(b)为不同土地利用强度下土壤细菌的主成分分析(PCA)结果,主成分1(PC1)和主成分2(PC2)分别解释了细菌方差的9.17%和8.69%,尽管解释的总变异量不高,但仍能明显区分不同处理的样本,其中P2处理组的样本主要集中在右侧区域,形成一个相对独立的聚类,表明P2处理下的土壤细菌群落结构具有一定独特性,CK和P1处理组的样本部分重叠,说明这两个处理下的土壤细菌群落结构有一定相似性,P3处理组的样本位于左下方区域,与其他处理组有明显的分离趋势,以上结果表明不同土地利用强度对土壤细菌群落结构产生了显著影响,使得各处理组在PCA二维空间中呈现出不同的分布特征.

|
(a)β多样性组间差异分析,(b)细菌群落主成分分析,(c)ASVs韦恩图,(d)Chao1指数,(e)Shannon指数,(f)Simpson指数;不同小写字母表示不同处理的显著性差异(P < 0.05) 图 2 不同土地利用强度土壤细菌多样性及Venn图 Fig. 2 Soil bacterial diversity and Venn diagram of different amendment treatments |
图 2(c)为不同土地利用强度下土壤细菌扩增子序列变异(ASVs)Venn图. 从中可知,不同处理下土壤细菌特异性ASVs由高到低为:P2 > P3 > CK > P4 > P1 > P5,P2处理的土壤细菌特异性ASVs数量最多(7 395),P5处理的土壤细菌特异性ASVs数量最少(2 126),其中所有处理共有的ASVs数量为63个,体现出不同土地利用强度对土壤细菌群落组成有显著影响(P < 0.05),进而导致各处理间细菌ASVs存在差异. 总体而言,土壤微生物的物种丰富度和多样性随土地利用强度增加呈先增后减的趋势,高强度利用(P5)下多样性最低,群落趋于单一化.
图2(d)~2(f)可以看出,CK、P1和P2处理的Chao1指数和Shannon指数显著高于其余处理(P < 0.05),且彼此间无显著差异(P > 0.05),其中P1处理略高于CK和P2处理. P5处理的Chao1指数和Shannon指数显著低于其他所有处理(P < 0.05),表明该处理下土壤细菌的物种丰富度最低,同时P5处理的Simpson指数值最高,显著高于其他处理(P < 0.05),这表明在P5处理下,从土壤细菌群落中随机抽取两个个体属于同一物种的概率相对较大,即该处理下土壤细菌的物种多样性最低.
2.3 不同土地利用强度对土壤微生物群落的影响图 3为不同土地利用强度下土壤细菌门水平群落Circos图和柱状图,从中可知,其中Actinobacteriota(放线菌门)、Proteobacteria(变形菌门)、Chloroflexi(绿弯菌门)、Acidobacteriota(酸杆菌门)等在多个处理中均有较高相对丰度. 在CK中,放线菌门和变形菌门是主要的细菌门,随着土地利用强度的变化,不同处理的细菌门的相对丰度发生改变,例如在P3处理中,放线菌门的相对丰度显著降低,而变形菌门的相对丰度显著提高. 而与P3相比P4处理的放线菌门相对丰度又显著增加,成为占比最高的细菌门,而在P5处理中,绿弯菌门的相对丰度显著增加,成为该处理的优势细菌门. 总体来看,不同土地利用强度显著影响土壤细菌门水平群落结构,各处理组中优势细菌门的相对丰度存在差异,反映出土地利用强度对土壤细菌群落组成的塑造作用.

|
1.Actinobacteriota(放线菌门),2.Proteobacteria(变形菌门),3.Chloroflexi(绿弯菌门),4.Acidobacteriota(酸杆菌门),5.Firmicutes(厚壁菌门),6.Gemmatimonadota(芽单胞菌门),7.Myxococcota(黏菌门),8.Bacteroidota(拟杆菌门),9.unclassified_k_norank_d_Bacteria(细菌未分类门),10.Planctomycetota(浮霉菌门),11.Nitrospirota(硝化螺旋菌门),12.Patescibacteria(髌骨细菌门),13.Methylomirabilota(甲烷氧化菌门),14.Cyanobacteria(蓝细菌门),15.Verrucomicrobiota(疣微菌门),16.others(其他) 图 3 不同土地利用强度下土壤细菌门水平群落Circos图和柱状图 Fig. 3 Circos and Bar plots of soil bacterial phylum-level communities under different land use types |
由图 4可知,其中norank_ f__JG30⁃KF⁃AS9、norank_ f__norank_o__Gaiellales(盖尔氏菌目中未分类细菌属)、Bacillus(芽孢杆菌属)、Acidothermus(嗜热酸菌属)和FCPS473等在多个处理中均有较高相对丰度. 与CK相比P1处理中norank_ f__JG30⁃KF⁃AS9、盖尔氏菌目中未分类细菌属的相对丰度显著提高,P3处理中芽孢杆菌属和norank_ f__Gemmimonadaceae的相对丰度显著提高,P5处理下的FCPS473相对丰度显著高于其他所有处理. 总体而言,不同土地利用方式下各细菌属的相对丰度差异显著,norank_ f__JG30⁃KF⁃AS9、盖尔氏菌目中未分类细菌属和FCPS473属等在不同土地利用强度下呈现出各自独特的丰度变化特征.

|
1.norank_ f__JG30-KF-AS9, 2.norank_ f__norank_o__Gaiellales, 3.Bacillus, 4.Acidothermus, 5.FCPS473, 6.norank_ f__norank_o__Vicinamibacteriales, 7.norank_ f__Gemmimonadaceae, 8.norank_ f__norank_o__Acidobacteriales, 9.norank_ f__norank_o__Elsterales, 10.Sphingomonas, 11.norank_ f__norank_o__IMCC26256, 12.unclassified_ f__Micromonosporaceae, 13.norank_ f__Xanthobacteraceae, 14.Candidatus_Solibacter, 15.Bryobacter, 16.others 图 4 不同土地利用强度下土壤细菌属水平群落Circos图和柱状图 Fig. 4 Circos and Bar plots of soil bacterial communities under different land use intensities |
图 5显示不同土地利用强度下土壤细菌功能基因丰度存在显著差异. 优势功能类别在各处理中高度一致,其中氨基酸转运和代谢、能量产生和转化等基础代谢功能丰度最高,表明土壤细菌在维持物质能量循环中的核心作用,可能与适应环境压力相关. 部分功能呈现处理间细微差异,P4和P5的脂质转运和代谢丰度波动,说明土地利用强度可能选择性影响特定功能,同时碳水化合物与无机离子运输与代谢的高丰度进一步支持微生物对环境压力的主动调控及碳源利用能力. 值得注意的是,次级代谢产物合成与防御机制丰度显著上升,表明土地高强度利用通过氧化应激或资源竞争驱动细菌合成抗逆物质以维持生存优势,相反,细胞骨架和细胞外结构功能丰度较低,表明高强度土地利用可能抑制细菌迁移能力与胞外基质合成,这与土壤结构退化或资源限制效应一致. 综上,土地利用强度增加促使细菌功能向抗逆防御与代谢调控倾斜,而基础代谢功能的稳定维持则凸显了微生物群落在逆境中的生态适应性.

|
图 5 不同土地利用强度下的土壤细菌功能预测 Fig. 5 Prediction of soil bacterial function under different land use intensities |
基于土壤细菌属水平群落与功能预测相关性热图分析可知(图 6),FCPS473与鞘氨醇单胞菌属同多种代谢功能存在显著正负相关性. 在生物大分子合成与代谢方面,FCPS473属与核糖体结构和生物发生、细胞壁/膜/包膜生物发生等功能呈极显著负相关(P < 0.01),表明其可能通过调控蛋白质合成效率或降低结构更新活性,影响细胞稳定性. 在物质运输与代谢方面,FCPS473属与无机离子、辅酶及核苷酸转运和代谢功能呈显著负相关(P < 0.05),显示该属在无机离子、辅酶和核苷酸的吸收、转运和代谢方面的能力较弱,可能依赖于外部环境提供这些物质,或者自身对这些物质的需求较低. 对于细胞内的各种重要过程,FCPS473属与重组和修复、翻译后修饰、信号转导机制和细胞内运输等呈极显著负相关(P < 0.01),表明FCPS473属在这些过程中的参与度或活性较低,可能具有相对简单的细胞内调控机制和较少的代谢活动,以适应其特定的生存环境.

|
*表示P < 0.05,**表示P < 0.01.;1. JG30-KF-AS9,2.g__Gaiellales,3.Bacillus,4.Acidothermus,5.FCPS473,6.g__Vicinamibacteriales,7.g__Gemmimonadaceae,8.g__Acidobacteriales,9.g__Elsterales,10.Sphingomonas,11.g__IMCC26256,12.g__Micromonosporaceae,13.g__Xanthobacteraceae,14.Candidatus_Solibacter,15.Bryobacter 图 6 土壤细菌属水平群落与功能预测相关性热图 Fig. 6 Heat map of the correlation between soil bacterial level community and function prediction |
在物质代谢方面,鞘氨醇单胞菌属与氨基酸、脂质、无机离子及辅酶等呈显著正相关(P < 0.05),意味着该属能够有效摄取和转运氨基酸、脂质和无极离子并参与辅酶代谢. 在遗传稳定性方面,鞘氨醇单胞菌属与遗传物质复制、重组与修复功能显著正相关(P < 0.05),表明该属在保障遗传信息传递,适应环境方面起着重要作用. 在生态响应方面,鞘氨醇单胞菌属与信号转导机制、防御机制呈极显著正相关的优势(P < 0.01),表明其能快速感知胁迫信号并合成抗逆物质来应对外界的胁迫和竞争.
综上所述,FCPS473和鞘氨醇单胞菌属在土壤生态系统的物质循环、能量转化、遗传稳定性和生物防御等方面都发挥着重要作用,表现出不同的环境适应规律,其与多种功能的正负相关关系反映了它在土壤微生物群落中的关键地位和多样化的生态功能,这对于理解土壤微生物群落的功能多样性和生态作用具有重要意义.
图 7可以看出,不同土地利用强度下土壤微生物网络结构与核心类群分布存在显著差异. CK网络中,变形菌门(如未分类Xanthobacteraceae科的ASV619和ASV273)与绿弯菌门(KD4-96科的ASV268)占据最高度中心性;P1网络则以放线菌门(Actinoallomurus属的ASV2973)和绿弯菌门(FCPS473属的ASV100)为核心枢纽;P2网络由厚壁菌门(Bacillus属的ASV60)和芽单胞菌门(Gemmatimonadaceae科的ASV5210/2953)主导;P3网络中变形菌门(Sphingomonas属的ASV4)与绿弯菌门(JG30-KF-AS9科的ASV2、FCPS473属的ASV1)呈现高连接性;P4网络的关键类群为厚壁菌门(Bacillus属的ASV60/75)和放线菌门(Micromonospora属的ASV176);P5网络中绿弯菌门(FCPS473属的ASV10092/10111及未分类Chloroflexi门的ASV10153)成为绝对优势类群,高强度利用(P5)导致绿弯菌门独占网络核心地位,表明微生物群落结构趋于单一化.

|
图 7 不同土地利用强度土壤微生物网络分析 Fig. 7 Network analysis of soil microorganisms under different land use intensities |
从表 2可以看出,网络参数分析进一步揭示土地利用强度的影响:①各处理节点数相近(49~50),表明土地利用强度变化对微生物网络的节点数量影响较小;② P2边数最高(1 144条),P5最低(568条),反映P2的微生物相互作用更复杂;③ P5丰度最高(65 750),P4最低(23 669),说明高强度利用可能增加微生物数量但降低多样性;④正相关比例P1(69.85%)和P2(69.76%)显著高于CK(52.77%),说明适度利用促进微生物协作;⑤度中心性与边数趋势一致,P2的网络连接更紧密,信息传递效率更高.
|
|
表 2 不同土地利用强度土壤微生物网络拓扑数据1) Table 2 Topological data of soil microbial networks under different land use intensities |
综上,适度土地利用(如P1和P2)利于形成复杂且协作紧密的微生物网络,而高强度利用(如P5)虽提升丰度,但导致关键类群单一化及网络结构简化,可能削弱土壤生态系统的功能稳定性.
3 讨论 3.1 不同土地利用强度对土壤微生物群落及多样性的影响本研究结果表明,放线菌门和变形菌门在多个处理中占据主要地位,但相对丰度有所波动,在CK中,放线菌门和变形菌门相对丰度较高,而在P5处理中,绿弯菌门则成为了最优势的细菌门. 与张歆怡等[15]研究的结果不同,本研究中绿弯菌门的富集表现出显著的区域特异性,可能是因为紫色土母质富含钙、镁等盐基离子,高强度利用引发的酸化可能通过溶解矿物释放铝离子[17,18],抑制嗜中性微生物(如放线菌门)的活性,而绿弯菌门作为寡营养型类群[19],其耐酸特性与低代谢需求使其在资源竞争中占据优势,这一结果与程智超等[4]在酸性森林土壤中的微生物演替规律相呼应. 同时传统研究多关注表层土壤(0~20 cm)微生物响应,而本研究发现高强度利用(P5)对深层土壤(20~40 cm)碱解氮的增幅显著高于表层. 这一现象可能源于紫色土母质的高渗透性[20],频繁灌溉加速了硝态氮的垂直淋溶,而深层土壤较低的氧化还原电位又抑制了反硝化作用,导致氮素累积[21,22]. 这一过程与酸化协同作用,促使寡营养型绿弯菌门取代放线菌门成为优势类群,说明土壤剖面养分分布的异质性可能对群落筛选具有协同作用[23,24]. 同时汪堃[25]等指出,绿弯菌门通过形成厚壁孢子抵抗酸性胁迫,但其较低的代谢活性可能限制深层土壤有机质的矿化效率,这与P5处理有机质持续流失的结果一致.
在属水平上,norank_ f__JG30⁃KF⁃AS9、盖尔氏菌目中未分类细菌属和FCPS473等在不同处理中呈现出各自独特的丰度变化特征. 这些变化反映了不同土地利用强度下土壤微生态环境的差异对微生物群落的筛选作用,例如,在P5处理中,FCPS473成为优势细菌属,可能是因为该菌属能够适应高强度利用下土壤环境的变化,如较高的养分浓度、较低的pH值和有机质等. 综合本研究结果表明,高强度土地利用(P5)对土壤生态系统健康状况造成深刻影响,而适度的施肥和耕作(P1和P2)等活动在一定程度上改善了土壤养分状况,促进了微生物的生长,但又未对土壤生态系统造成过度干扰,因此维持了较高的微生物多样性.
3.2 土壤微生物功能对不同土地利用强度的响应功能预测分析表明,高强度利用(P5)显著提升了防御机制与次级代谢功能的基因丰度,这与重金属污染土壤中微生物的功能响应模式一致[26,27]. 同时本研究发现,不同土地利用强度下,微生物功能基因丰度虽存在差异,但氨基酸转运与代谢、能量转化等基础功能始终占据主导地位,表明微生物优先保障维持生存的核心代谢途径. 值得注意的是,P4和P5处理的脂质转运与代谢功能呈现波动性变化,表明高强度利用可能通过环境压力选择性地重塑微生物功能[28,29],例如,微生物通过增强脂质代谢能力优化碳源利用效率,并借助碳水化合物代谢产生的能量维持离子稳态,这一机制与重金属胁迫下的适应性策略高度相似. 同时土地高强度利用对胞外基质合成功能的抑制反映了能量分配的权衡策略[30],这种功能代偿虽有助于短期生存,却可能因迁移能力受限而加剧生态位压缩.
同时本研究发现,高强度利用下紫色土微生物功能抗逆化与网络复杂性降低,存在显著耦合关系;微生物群落通过牺牲物种多样性以维持核心代谢功能,但网络结构的简化可能削弱系统冗余性[31],进而降低养分循环效率. 例如,FCPS473属的相对丰度在P5处理中显著升高,其与防御机制功能的相关性表明该菌属可能通过合成抗逆物质适应高强度胁迫环境,然而其对基础代谢功能的抑制,可能加剧养分利用效率的下降,这一发现与张歆怡[15]等研究一致. 同时,FCPS473属与核糖体生物发生的显著负相关,表明其蛋白质合成效率受限,延缓了有机残体分解速率[4],这与P5处理中土壤有机质持续流失形成呼应. 此外,绿弯菌门在酸化、低有机质环境中的竞争优势,进一步佐证了上述结论,尽管其基础代谢功能稳定,但功能冗余性的降低可能削弱土壤生态系统的抗扰动能力. 以上研究结果进一步说明不合理的土地利用强度会破坏土壤微生物的生态平衡,影响土壤生态系统的功能和稳定性,因此合理规划土地利用强度,采取可持续的土地利用方式,对于保护土壤微生物群落及多样性和维持土壤生态系统的健康至关重要,建议将紫色土区土地利用强度控制在P2水平,并通过有机肥和无机肥配施以维持碳氮平衡.
4 结论(1)高强度利用(P5)导致pH值最低且有机质持续流失,而低强度利用(P1)可短期提升有机质积累,同时随土地利用强度增加土壤微生物的物种丰富度和多样性显著下降,高强度利用(P5)下多样性最低,群落趋于单一化.
(2)土地高强度利用导致优势菌群由放线菌门、变形菌门向绿弯菌门转变,属水平上FCPS473等特定菌属丰度显著升高,表明环境压力对微生物的筛选作用.
(3)基础代谢功能在不同处理中稳定维持,但高强度利用下微生物防御机制和次级代谢功能增强,表明其通过抗逆策略适应胁迫环境. 同时高强度利用削弱微生物间协作关系,网络结构复杂性降低,可能影响土壤生态系统的稳定性和功能效率.
(4)高强度土地利用会显著改变紫色土微生物群落的生态特性,建议通过优化施肥制度、控制耕作频率等措施,缓解对土壤微生物的负面影响,同时紫色土微生物群落对土地利用强度的响应具有垂直分异性与功能权衡特征,未来管理需统筹考虑养分迁移、微生物功能及土壤健康的级联效应.
| [1] |
朱永官, 陈保冬, 付伟. 土壤生态学研究前沿[J]. 科技导报, 2022, 40(3): 25-31. Zhu Y G, Chen B D, Fu W. Research frontiers in soil ecology[J]. Science & Technology Review, 2022, 40(3): 25-31. |
| [2] | Zhang Q, Wu J J, Yang F, et al. Alterations in soil microbial community composition and biomass following agricultural land use change[J]. Scientific Reports, 2016, 6. DOI:10.1038/srep36587 |
| [3] | Desie E, Vancampenhout K, Nyssen B, et al. Litter quality and the law of the most limiting: opportunities for restoring nutrient cycles in acidified forest soils[J]. Science of the Total Environment, 2020, 699. DOI:10.1016/j.scitotenv.2019.134383 |
| [4] |
程智超, 杨立宾, 隋心, 等. 黑龙江中央站黑嘴松鸡国家级自然保护区不同森林类型土壤微生物功能多样性分析[J]. 环境科学研究, 2021, 34(5): 1177-1186. Cheng Z C, Yang L B, Sui X, et al. Soil microbial functional diversity responses to different revegetation types in Heilongjiang Zhongyangzhan black-billed Capercaillie nature reserve[J]. Research of Environmental Sciences, 2021, 34(5): 1177-1186. |
| [5] |
练金山, 王慧颖, 徐明岗, 等. 长期施用有机肥潮土细菌的多样性及功能预测[J]. 植物营养与肥料学报, 2021, 27(12): 2073-2082. Lian J S, Wang H Y, Xu M G, et al. Diversity and function prediction of bacteria community in fluvo-aquic soils as affected by long-term organic fertilization[J]. Journal of Plant Nutrition and Fertilizers, 2021, 27(12): 2073-2082. |
| [6] |
王士亚. 连栽障碍地杉木无性系土壤酶活性及微生物功能多样性分析[D]. 福州: 福建农林大学, 2016. Wang S Y. Analysis of the soil enzyme activity and microbial functional diversity of Cunninghamia lanceolata clones in continuous planting obstacles soil of Cunninghamia lanceolata[D]. Fuzhou: Fujian Agriculture and Forestry University, 2016. |
| [7] | Delgado-Baquerizo M, Maestre F T, Reich P B, et al. Microbial diversity drives multifunctionality in terrestrial ecosystems[J]. Nature Communications, 2016, 7. DOI:10.1038/ncomms10541 |
| [8] | Qiao L K, He L Y, Gao F Z, et al. Deciphering key traits and dissemination of antibiotic resistance genes and degradation genes in pharmaceutical wastewater receiving environments[J]. Water Research, 2025, 275. DOI:10.1016/J.WATRES.2025.123241 |
| [9] | Yu Q L, Han Q, Shi S Q, et al. Metagenomics reveals the response of antibiotic resistance genes to elevated temperature in the Yellow River[J]. Science of the Total Environment, 2022. DOI:10.1016/J.scitotenv.2022.160324 |
| [10] |
郭晓雯, 向贵琴, 张发朝, 等. 生物炭和秸秆还田对咸水滴灌棉田土壤微生物群落特征及功能差异的影响[J]. 环境科学, 2024, 45(6): 3571-3583. Guo X W, Xiang G Q, Zhang F C, et al. Effects of biochar and straw return on soil microbial community characteristics and functional differences in saline water drip irrigation cotton fields[J]. Environmental Science, 2024, 45(6): 3571-3583. DOI:10.13227/j.hjkx.202308051 |
| [11] |
刘畅, 黄雅丹, 张莹, 等. 培养条件下双酚A对稻田土壤微生物群落特征的影响[J]. 环境科学, 2016, 37(11): 4380-4388. Liu C, Huang Y D, Zhang Y, et al. Effects of bisphenol A on characteristics of paddy soil microbial community under different cultural conditions[J]. Environmental Science, 2016, 37(11): 4380-4388. DOI:10.13227/j.hjkx.201604077 |
| [12] |
何中声, 王紫薇, 朱静, 等. 戴云山南坡不同海拔森林土壤微生物群落结构特征和影响因素[J]. 环境科学, 2022, 43(5): 2802-2811. He Z S, Wang Z W, Zhu J, et al. Forest soil microbial community structure characteristics and its influencing factors at different elevations on the southern slope of Daiyun mountain[J]. Environmental Science, 2022, 43(5): 2802-2811. DOI:10.13227/j.hjkx.202108160 |
| [13] |
骆永明, 滕应. 我国土壤污染的区域差异与分区治理修复策略[J]. 中国科学院院刊, 2018, 33(2): 145-152. Luo Y M, Teng Y. Regional difference in soil pollution and strategy of soil zonal governance and remediation in China[J]. Bulletin of Chinese Academy of Sciences, 2018, 33(2): 145-152. |
| [14] |
于皓, 刘悦, 邓晔, 等. 天然高寒草地转变为混播人工草地对土壤微生物群落特征的影响[J]. 环境科学, 2023, 44(5): 2928-2935. Yu H, Liu Y, Deng Y, et al. Effects of the transformation from natural alpine grassland to mixed artificial grassland on the characteristics of soil microbial community[J]. Environmental Science, 2023, 44(5): 2928-2935. DOI:10.13227/j.hjkx.202204066 |
| [15] | 张歆怡, 王雨鑫, 张清竹, 等. 土壤扰动对土壤微生物的影响研究进展[J]. 环境保护与循环经济, 2024, 44(12): 43-46. |
| [16] | Kuemmerle T, Erb K, Meyfroidt P, et al. Challenges and opportunities in mapping land use intensity globally[J]. Current Opinion in Environmental Sustainability, 2013, 5(5): 484-493. DOI:10.1016/j.cosust.2013.06.002 |
| [17] |
李越, 徐曼, 谢永红, 等. 不同改良剂对酸性紫色土团聚体和有机碳的影响[J]. 环境科学, 2024, 45(2): 974-982. Li Y, Xu M, Xie Y H, et al. Effects of different modifiers on aggregates and organic carbon in acidic purple soil[J]. Environmental Science, 2024, 45(2): 974-982. DOI:10.13227/j.hjkx.202303246 |
| [18] |
赵越, 杨金玲, 许哲, 等. 模拟酸雨淋溶下不同母质发育雏形土矿物风化中的盐基离子与硅计量关系[J]. 土壤学报, 2023, 60(5): 1456-1467. Zhao Y, Yang J L, Xu Z, et al. Stoichiometry of base cations and silicon of cambosols derived from different parent materials as leached by simulated acid rain[J]. Acta Pedologica Sinica, 2023, 60(5): 1456-1467. |
| [19] |
侯建伟, 邢存芳, 杨莉琳, 等. 生物炭与有机肥等碳量投入土壤肥力与细菌群落结构差异及关系[J]. 环境科学, 2024, 45(7): 4218-4227. Hou J W, Xing C F, Yang L L, et al. Differences in soil fertility and bacterial community structure between carbon inputs such as biochar and organic fertilizer and their relationship[J]. Environmental Science, 2024, 45(7): 4218-4227. DOI:10.13227/j.hjkx.202307062 |
| [20] |
陈一兵, Kim T. 紫色土渗透性的对比研究[J]. 水土保持通报, 1997, 17(2): 11-13, 20. Chen Y B, Kim T. Comparative study on permeability of purple soil[J]. Bulletin of Soil and Water Conservation, 1997, 17(2): 11-13, 20. |
| [21] |
刘涛, 张萱, 沈阿林, 等. 生物反硝化抑制剂原花青素对土壤氮转化及植物生长的影响[J]. 植物营养与肥料学报, 2023, 29(8): 1556-1562. Liu T, Zhang X, Shen A L, et al. Effects of biodenitrification inhibitors on soil nitrogen transformation and plant growth[J]. Journal of Plant Nutrition and Fertilizers, 2023, 29(8): 1556-1562. |
| [22] |
张志君, 秦树平, 袁海静, 等. 土壤氮气排放研究进展[J]. 中国生态农业学报, 2018, 26(2): 182-189. Zhang Z J, Qin S P, Yuan H J, et al. Advance in soil dinitrogen emission[J]. Chinese Journal of Eco-Agriculture, 2018, 26(2): 182-189. |
| [23] | Xue W, Rillig M C, Yu M F, et al. Soil nutrient heterogeneity alters productivity and diversity of experimental plant communities under multiple global change factors[J]. Oikos, 2023, 2023(12). DOI:10.1111/OIK.10189 |
| [24] |
李洪波, 薛慕瑶, 林雅茹, 等. 土壤养分空间异质性与根系觅食作用: 从个体到群落[J]. 植物营养与肥料学报, 2013, 19(4): 995-1004. Li H B, Xue M Y, Lin Y R, et al. Spatial heterogeneity of soil nutrients and root foraging: from individual to community[J]. Journal of Plant Nutrition and Fertilizer, 2013, 19(4): 995-1004. |
| [25] |
汪堃, 南丽丽, 师尚礼, 等. 干旱胁迫对不同根型苜蓿根系生长及根际土壤细菌的影响[J]. 生态学报, 2021, 41(19): 7735-7742. Wang K, Nan L L, Shi S L, et al. Influence of root growth and bacterial community in the rhizosphere of different root types of alfalfa under drought stress[J]. Acta Ecologica Sinica, 2021, 41(19): 7735-7742. |
| [26] |
段莉阳, 张玉, 任学敏, 等. 微塑料和镉复合污染对狼尾草根际土壤微生物群落结构和功能的影响[J]. 环境科学, 2023, 44(12): 6973-6981. Duan L Y, Zhang Y, Ren X M, et al. Effects of combined pollution of microplastics and cadmium on microbial community structure and function of Pennisetum hydridum rhizosphere soil[J]. Environmental Science, 2023, 44(12): 6973-6981. DOI:10.13227/j.hjkx.202212135 |
| [27] |
韩博远, 张闻, 胡芳雨, 等. 模拟及实际根系分泌物对芘污染土壤微生物群落的影响[J]. 环境科学, 2022, 43(2): 1077-1088. Han B Y, Zhang W, Hu F Y, et al. Influence of artificial root exudates and actual root exudates on the microbial community in pyrene-contaminated soil[J]. Environmental Science, 2022, 43(2): 1077-1088. DOI:10.13227/j.hjkx.202103204 |
| [28] |
汤晓玲, 陈静祥, 柳志强, 等. 基于工业环境扰动的微生物适应性进化[J]. 生物工程学报, 2023, 39(3): 993-1008. Tang X L, Chen J X, Liu Z Q, et al. Adaptive evolution of microorganisms based on industrial environmental perturbations[J]. Chinese Journal of Biotechnology, 2023, 39(3): 993-1008. |
| [29] |
钟超, 任媛媛, 鲁安怀, 等. 低能量环境中微生物生存策略[J]. 微生物学报, 2024, 64(12): 4480-4503. Zhong C, Ren Y Y, Lu A H, et al. Survival strategies of microorganisms in low-energy environments[J]. Acta Microbiologica Sinica, 2024, 64(12): 4480-4503. |
| [30] | Liu Z L, Xu Y, Wang Z C, et al. Promoting substrates uptake and curdlan synthesis of Agrobacterium sp. by attenuating the exopolysaccharide encapsulation[J]. Carbohydrate Polymers, 2023, 315. DOI:10.1016/J.CARBPOL.2023.120941 |
| [31] | Louca S, Polz M F, Mazel F, et al. Function and functional redundancy in microbial systems[J]. Nature Ecology & Evolution, 2018, 2(6): 936-943. |