 2026, Vol. 47


2. 北京林业大学云南建水荒漠生态系统国家定位研究站,建水 654399;
3. 北京林业大学教育部林业生态工程研究中心,北京 100083;
4. 北京林业大学林木资源高效生产全国重点实验室,北京 100083
2. Yunnan Jianshui Desert Ecosystem National Positioning Research Station, Beijing Forestry University, Jianshui 654399, China;
3. Engineering Research Center of Forestry Ecological Engineering, Ministry of Education, Beijing Forestry University, Beijing 100083, China;
4. State Key Laboratory of Efficient Production of Forest Resources, Beijing Forestry University, Beijing 100083, China
植被作为陆地生态系统的重要组成部分,在生态系统物质循环和能量交换过程中发挥着不可或缺的关键作用[1~3]. 植被动态变化是气候变化和人类活动影响下的综合效应[4,5],能够在很大程度上反映生态系统的健康状况和稳定性[6]. 准确量化气候变化和人类活动对植被动态变化的相对贡献率,有助于深入理解气候-生态系统-人类社会之间的复杂关系,并可为生态修复工程的实施以及区域生态系统的管理提供科学依据[5].
植被对气候变化以及人类活动的响应是全球变化研究的重要内容[7,8]. 全球变暖背景下,温度升高与降水格局的改变对植被生长产生了显著影响[9,10]. 放牧、生态修复以及城市化等人为因素也推动了植被变化[11,12]. 为了分离气候变化与人为活动对植被变化的影响,大多数研究采用了残差分析的方法[13~15],但普遍忽视了植被对气候变化响应的时间效应,可能导致气候影响的系统性低估[4,16]. 现有研究表明,植被与气候之间存在着不对称的时间关系[17],主要体现为气候对植被生长的影响存在时间滞后效应(time-lag effect)和时间累积效应(time-cumulative effect)[18]. 这种不对称性源于植被对气候响应的阈值效应,即只有在气候影响超过植被的生理耐受限度时,才会引发显著的植被变化[19]. 具体而言,时间滞后效应反映了历史气候条件对当前植被生长造成的影响,而时间累积效应表征了气候变量持续累积而对植被生长造成的长期影响[18,20]. Wu等[21]的研究表明,在考虑时滞效应的情况下,气候因素对全球植被变化的解释力达到64%,较忽略时滞效应时提升11%. Wen等[22]则发现考虑累积效应时气候变化对全球植被变化的解释力提升至68.33%,较忽略累积效应时提高3.35%. 然而,气候的时滞和累积效应并不是独立存在的. Ding等[23]研究发现,在单独考虑时滞效应、累积效应以及同时考虑两者的情景下,气候因子对全球植被变化的解释力分别提高17%、15%和19%. 可见,考虑植被生长对气候因子响应的时间效应,对于深入理解气候和植被的关系以及准确量化气候对植被变化的影响而言意义重大.
西南高山峡谷区岭谷高差悬殊、地形复杂多变[24],生态系统脆弱,且对气候变化响应敏感[25,26]. 以往的研究主要聚焦于气候因子对植被生长的瞬时和时滞影响[12,27,28],忽视了累积效应,更缺乏对时滞效应与累积效应综合影响的研究[29]. 此外,现有的成果未能系统阐明植被动态变化及其驱动机制的垂直地带性分异特征,也缺少气候变化和人类活动对不同植被类型正负影响的差异性分析,不利于西南高山峡谷区生态系统的精准化管理和系统性保护. 鉴于此,本文利用增强型植被指数(enhanced vegetation index,EVI)数据、土地利用/覆被数据以及气象数据,分析西南高山峡谷区植被生长对气候因子响应的时间效应,并在综合考虑时滞和累积效应的情况下,进一步探究2001~2023年区域植被动态变化及其驱动机制. 研究的主要目标如下:①分析不同海拔带和植被类型EVI动态变化特征;②探究不同海拔带和植被类型EVI对气温和降水变化响应的时间效应;③在综合考虑时滞和累积效应的情况下,量化气候变化和人类活动对不同海拔带和植被类型EVI变化的相对贡献.
1 研究区概况与数据来源 1.1 研究区概况西南高山峡谷区地处我国西南(24°58′~32°51′ N,91°23′~104°13′ E),主要涉及四川省、云南省和西藏自治区,总面积约61万km2(图 1). 地貌以高原、山地为主,海拔介于24~7 473 m,地形复杂多变. 气候类型以高原山地气候和亚热带季风气候为主,年均降雨量介于304.73~2 982.48 mm,年均气温介于-15.37~24.77 ℃,均值分别为792.07 mm和3.89 ℃[30]. 该区由藏东南高寒高山峡谷生态维护区(藏东南区)、藏东-川西高山峡谷生态维护水源涵养区(藏东-川西区)、滇北-川西南高山峡谷蓄水保土区(滇北-川西南区)和滇西北高山峡谷生态维持区(滇西北区)这4个水土保持分区组成[图 1(a)],按民族聚居、土壤侵蚀以及农牧活动等特征又可划分为中低山河谷带、中山带和高山带3个海拔带[图 1(b)][24,31],涉及雅鲁藏布江、怒江、澜沧江、金沙江、雅砻江、大渡河和岷江等七大流域. 自西向东横跨半干旱区、半湿润区和湿润区,受高原山地气候和亚热带季风影响,降水和气温从东南向西北递减. 西南高山峡谷区生态环境脆弱、气候垂直分异明显、地质地貌特殊、水热组合多样、植被生长对气温的变化有极强的反馈作用,是响应全球气候变化的重点区域[26,28].

|
图 1 研究区示意 Fig. 1 Sketch of the study area |
EVI数据采用美国航空航天局(NASA)提供的MODIS数据产品MOD13A3数据集(https://lpdaac.usgs.gov/products/mod13a3v061/),空间分辨率为1 km,时间分辨率为1个月. 西南高山峡谷区的植被在冬季多为积雪覆盖,参考以往的研究[32,33]选取每年5~9月植被生长季作为研究时段. 利用GEE平台,根据研究区范围进行裁剪和重采样得到逐月EVI,并采用平均值合成法合成2001~2023年逐年生长季EVI. 气候数据包括降水和气温数据集,均来源于国家青藏高原科学数据中心(https://data.tpdc.ac.cn/),空间分辨率为1 km,时间分辨率为1个月. 该降水和气温数据的单位分别为0.1 mm和0.1 ℃,数据格式为NetCDF,利用MATLAB软件进行格式转换和裁剪,得到研究区范围的1 km逐月降水和气温栅格数据集. 土地利用数据采用MODIS数据产品MOD12Q1数据集(https://lpdaac.usgs.gov/products/mcd12q1v061/)中2010年的数据,空间分辨率为500 m,依据IGBP全球土地覆被分类系统,该数据分为17个主要土地覆盖类型. 本文结合研究区植被特点筛选合并出7类主要土地利用类型用以后文分析,包括森林、灌丛、有林草原、稀树草原、草地、永久性湿地和农田. 高程数据采用GDEMV3数据集,空间分辨率为30 m,来源于地理空间数据云(https://www.gscloud.cn/),并按海拔将研究区分为中低山河谷带(小于2 000 m)、中山带(2 000~3 500 m)和高山带(大于3 500 m)[24]用以后文分析. 所有数据均通过ArcGIS软件进行投影转换(Albers)、重采样和裁剪等预处理,空间分辨率统一为1 km.
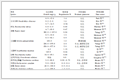
2 研究方法 2.1 趋势分析采用Theil-Sen Median趋势分析和Mann-Kendall检验[34],计算EVI时间序列的变化趋势,并根据统计量Z判断趋势的显著性. EVI变化趋势的显著性划分见表 1.
|
表 1 EVI变化趋势显著性划分方法 Table 1 Division method of EVI change trend significance |
2.2 时滞和累积效应分析
采用线性回归分析EVI对气温和降水响应的时间效应,由于月尺度下的时间效应通常在0~3个月[21,35],本研究考虑最长3个月的时滞和累积效应. 具体计算公式如下:
| (1) |
| (2) |
式中,b为回归系数,a为截距;t为生长季节,PRE为降水,TEM为气温;lag和acc分别指植被响应气候因子变化的滞后月份和累积月份. lag和acc的不同组合对应以下4种情况[23]:①当lag和acc都为0时,没有时间效应;②当acc=0且0 < lag≤3时,考虑时滞效应;③当0 < acc≤3且lag=0时,考虑累积效应;④当lag和acc的范围都在0~3之间时,同时考虑时滞效应和累积效应. 此外,本研究利用最高的决定系数R2来确定最佳拟合时间效应[4,23,29].
2.3 多元回归残差分析残差分析[36]可以剥离气候变化和人类活动对EVI变化的影响,定量评估其相对贡献率. 利用多元线性回归模型构建EVI与气候因子在月尺度上的线性关系,回归模型的预测值代表气候变化对EVI的影响,其残差代表人类活动对EVI的影响. 为了充分考虑气候时间效应的影响,气温和降水的时间序列根据2.2节确定的最佳滞后时间和累积时间调整得到. 具体公式如下:
| (3) |
| (4) |
式中,EVIobs、EVIpre和EVIres分别为EVI观测值、EVI预测值以及EVI残差值;a和b为回归系数,c为截距;P和T分别为降水和气温. 气候变化和人类活动对EVI变化的相对贡献率方法如表 2所示.
|
|
表 2 相对贡献率的计算方法 Table 2 Calculation method of relative contribution rate |
3 结果与分析 3.1 EVI时空动态特征
2001~2023年西南高山峡谷区生长季植被EVI多年均值的空间分布如图 2(a)所示. EVI整体介于0~0.67之间,其中EVI在0.30~0.45的区域面积占比最高,达到54.69%. 从变化趋势上看[图 2(d)],西南高山峡谷区生长季植被EVI整体上呈现显著上升趋势(P < 0.001),平均增速为0.001 1 a-1,多年均值为0.32. EVI上升和下降的区域面积占比分别为80.49%和19.51%,其中呈显著上升(P < 0.05)的区域面积占比为24.15%,主要分布于云贵高原;呈显著下降(P < 0.05)的区域面积占比为1.31%,零散分布于平原及河谷地区[图 2(b)~2(c)]. EVI空间分布呈现明显的海拔依赖性,随着海拔的上升而加速下降[图 2(e)],EVI相对高值区主要集中在低海拔的平原和河谷地带,相对低值区则主要分布于西北部高寒高海拔地区. 就不同海拔带而言[图 2(f)],EVI上升的区域面积占比均超过70.00%,其中呈显著上升(P < 0.05)的区域面积占比在中山带上最高(35.45%),其次是在中低山河谷带(28.14%),高山带最低(18.89%). EVI呈显著下降(P < 0.05)的区域面积占比为中低山河谷带(3.25%) > 中山带(1.62%) > 高山带(0.85%). 不同植被类型的EVI变化均以呈上升趋势的面积占比最高,其中有林草原和稀树草原呈显著上升趋势(P < 0.05)的面积占比较高,达到39.40%和39.04%,草地和森林较低,仅为18.56%和16.18%. 此外,森林有26.42%的区域EVI呈下降趋势,在所有植被类型中占比最高.

|
(a)空间分布,(b)变化趋势率,(c)变化显著性,(d)EVI年际变化,(e)EVI随海拔梯度变化,(f)显著性面积占比;(f)中Ⅰ~Ⅲ分别表示中低山河谷带、中山带和高山带;1~7分别表示森林、灌丛、有林草原、稀树草原、草地、永久性湿地和农田 图 2 生长季植被EVI空间分布和变化趋势 Fig. 2 Spatial distribution and variation trend of vegetation EVI in growing season |
由图 3(a)和图 4(a)可知,总体上西南高山峡谷区气温对植被生长的影响平均滞后(0.26±0.69)月,平均累积(0.66±0.78)月. 研究区59.76%的区域存在气温的时滞和累积效应,其中存在气温时滞效应的区域面积占比9.68%,存在气温累积效应的区域面积占比45.05%,同时存在时滞和累积效应的区域面积占比5.03%. 从不同海拔带来看,中低山河谷带平均滞后(0.96±1.09)月,平均累积(1.02±1.02)月;中山带平均滞后(0.38±0.82)月,平均累积(0.77±0.93)月;高山带平均滞后(0.09±0.40)月,平均累积(0.55±0.64)月. 不同海拔带上,植被生长对气温变化响应的累积效应均高于时滞效应. 随着海拔的升高,植被生长对气温变化响应的时滞和累积效应均明显缩短.

|
L表示时滞效应,A表示累积效应,数字为时滞期和累积期;例如L1A1,表示滞后且累积1个月,以此类推,下同 图 3 西南高山峡谷区植被生长对气温和降水变化响应的时间效应 Fig. 3 Temporal effect of vegetation growth response to temperature and precipitation changes in the Southwest Alpine Canyon Area of China |

|
(a)气温变化,(b)降水变化;Ⅰ~Ⅲ分别表示中低山河谷带、中山带和高山带;1~7分别表示森林、灌丛、有林草原、稀树草原、草地、永久性湿地和农田 图 4 不同海拔带和植被类型的时间效应面积占比 Fig. 4 Area proportion of temporal effect on different altitude zones and vegetation types |
就气温时滞效应而言[图 4(a)],森林平均滞后(0.56±0.97)月,灌丛平均滞后(0.25±0.69)月,有林草原平均滞后(0.28±0.70)月,稀树草原平均滞后(0.31±0.78)月,草地平均滞后(0.09±0.37)月,永久性湿地平均滞后(0.33±0.79)月,农田平均滞后(0.19±0.59)月. 就气温累积效应而言,森林平均累积(0.47±0.80)月,灌丛平均累积(0.66±0.91)月,有林草原平均累积(0.82±0.96)月,稀树草原平均累积(0.75±0.84)月,草地平均累积(0.65±0.65)月,永久性湿地平均累积(0.88±0.88)月,农田平均累积(0.90±0.84)月. 总的来看,西南高山峡谷区植被生长对气温变化响应的累积效应高于时滞效应. 其中森林对气温变化的响应最不敏感,草地对气温变化的响应最敏感. 农田对气温响应的累积期最长,需要更长的时间来累积热量以达到作物生长条件.
3.2.2 EVI对降水响应的时间效应由图 3(b)和图 4(b)可知,总体上西南高山峡谷区降水对植被生长的影响平均滞后(0.31±0.65)月,平均累积(1.36±0.83)月. 研究区94.09%的区域存在降水的时滞和累积效应,其中存在降水时滞效应的区域面积占比9.09%,存在降水累积效应的区域面积占比70.61%,同时存在时滞和累积效应的区域面积占比14.39%. 从不同海拔带来看,中低山河谷带平均滞后(0.51±0.83)月,平均累积(1.56±0.91)月;中山带平均滞后(0.39±0.76)月,平均累积(1.17±0.90)月;高山带平均滞后(0.25±0.55)月,平均累积(1.40±0.77)月. 随着海拔升高,植被生长对降水变化响应的滞后和累积时间均大幅下降. 与气温类似,不同海拔带植被生长对降水变化响应的累积效应均明显高于时滞效应. 但随海拔升高,植被生长对气温变化响应的时滞效应明显降低,累积效应则先下降后上升.
就降水时滞效应而言[图 4(b)],森林平均滞后(0.68±0.93)月,灌丛平均滞后(0.38±0.71)月,有林草原平均滞后(0.26±0.59)月,稀树草原平均滞后(0.28±0.54)月,草地平均滞后(0.11±0.36)月,永久性湿地平均滞后(0.24±0.51)月,农田平均滞后(0.30±0.55)月. 就降水累积效应而言,森林平均累积(0.96±0.93)月,灌丛平均累积(1.12±0.88)月,有林草原平均累积(1.32±0.86)月,稀树草原平均累积(1.41±0.75)月,草地平均累积(1.50±0.64)月,永久性湿地平均累积(1.74±0.78)月,农田平均累积(1.80±0.81)月. 与气温相似,森林对降水变化的响应最不敏感,草地对降水变化的响应最敏感. 农田对降水变化响应的累积期最长,需要更长时间来累积降水以达到作物生长条件.
3.3 EVI变化的驱动因素基于考虑气候时间效应的改进残差分析,对EVI的观测值、预测值和残差值时间序列进行逐像元趋势分析,并划分出西南高山峡谷区EVI变化的驱动因素[图 5(a)]. 西南高山峡谷区气候变化和人类活动共同驱动EVI上升的区域面积占比最高,为55.77%. 气候变化和人类活动单独驱动EVI上升的区域面积占比分别为18.95%和11.50%[图 5(b)]. 而在EVI下降区域,人类活动单独驱动EVI下降的区域面积占比最高(9.77%),其次是气候变化和人类活动共同驱动(3.14%),气候变化单独驱动的面积占比最低(0.88%). 从不同海拔带来看,气候变化和人类活动共同驱动EVI上升的面积占比均最高. 随海拔升高,人类活动单独驱动EVI上升和下降的面积占比均下降,气候变化单独驱动EVI下降的面积占比也同样下降,气候变化单独驱动EVI上升的面积占比则大幅上升(7.68%→8.35%→25.17%). 此外,在中低山河谷带和中山带人类活动单独驱动EVI变化的面积占比分别为31.76%和27.90%,均高于气候变化的9.59%和9.67%. 而在高山带人类活动单独驱动EVI变化的面积占比(16.80%)则低于气候变化(25.69%). 就不同植被类型而言[图 5(b)],气候变化和人类活动共同驱动EVI上升的区域面积占比均最高,介于44.75%~65.94%之间. 其中森林EVI受到气候变化和人类活动共同驱动下降(7.16%)、气候变化单独驱动下降(1.86%)、人类活动单独驱动下降(14.06%)以及人类活动单独驱动上升(22.84%)的区域面积占比均最高;永久性湿地EVI受气候变化和人类活动共同驱动上升(65.99%)的面积占比最高;草地EVI受气候变化单独驱动上升(28.14%)的面积占比最高.

|
(a)空间分布,(b)面积占比;Ⅰ~Ⅲ分别表示中低山河谷带、中山带和高山带;1~7分别表示森林、灌丛、有林草原、稀树草原、草地、永久性湿地和农田 图 5 EVI变化驱动因素 Fig. 5 Driving factors of EVI change |
综合考虑时滞和累积效应的影响后,西南高山峡谷区气候变化和人类活动对EVI变化的正负贡献率分别如图 6(a)和图 6(b)所示. 总体上,气候变化对EVI变化的贡献率为44.61%,人类活动的贡献率为55.39%. 具体而言,在西南高山峡谷区气候变化对EVI的平均正向贡献率为42.77%,平均负向贡献率为1.84%. 受气候变化正向影响较高的区域主要集中在藏东-川西区,而受气候变化负向影响较高的区域主要分布于金沙江和澜沧江沿线. 人类活动对EVI变化的平均正向贡献率为43.45%,平均负向贡献率为11.94%. 西南高山峡谷区受人类活动正向影响较高的区域主要集中在藏东南区、滇西北区、滇北-川西南区的西部,以及藏东-川西区的怒江、澜沧江、金沙江、雅砻江和大渡河沿线部分区域. 受人类活动负向影响较高的区域主要集中分布在三江并流区,以及雅砻江流域和雅鲁藏布江流域的河谷地带.

|
(a)气候变化,(b)人类活动 图 6 气候变化和人类活动对EVI变化的正向和负向贡献率空间分布 Fig. 6 Spatial distribution of positive and negative contribution rates of climate change and human activities to EVI change |
从不同海拔带来看,中低山河谷带和中山带受人类活动的正向影响最高(图 7),贡献率分别为53.37%和57.61%,高山带受气候变化的正向影响最高(52.30%). 随海拔上升,人类活动的正向影响和气候变化的负向影响逐渐下降,气候变化的正向影响大幅上升(24.98%→26.70%→52.30%). 气候变化和人类活动对不同植被类型EVI的影响也存在明显差异,但人类活动的负向影响总是大于气候变化的负向影响. 具体而言,草地、永久性湿地和农田受气候变化的正向影响最高,贡献率分别为55.78%、49.95%和52.56%,其次是受人类活动的正向影响,贡献率分别为32.62%、41.14%和38.99%. 森林、灌丛、有林草原和稀树草原受人类活动正向影响最高,贡献率分别为53.61%、52.48%、54.21%和46.94%,其次是受到气候变化的正向影响,贡献率分别为23.31%、32.64%、34.51%和41.78%. 不同植被类型中受人类活动负向影响和气候变化负向影响最高的为森林,贡献率分别为19.02%和4.06%;受人类活动正向影响最高的是有林草原,贡献率为54.21%;受气候变化正向影响最高的是草原,贡献率为55.78%.

|
Ⅰ~Ⅲ分别表示中低山河谷带、中山带和高山带;1~7分别表示森林、灌丛、有林草原、稀树草原、草地、永久性湿地和农田 图 7 不同海拔带和不同类型植被EVI受气候变化和人类活动影响的差异 Fig. 7 Differences in EVI of different elevation zones and different types of vegetation affected by climate change and human activities |
2001~2023年西南高山峡谷区EVI时空变化呈现出明显的海拔分异,不同植被类型间也存在明显的差异. 该地区植被EVI总体上呈显著上升趋势,增长率为0.001 1 a-1,这与以往的研究描述相符[25,37]. 不同海拔带中,以中山带EVI显著上升面积占比最高,其次是中低山河谷带,高山带最低. 位于云贵高原部分的中低海拔区域因林业生态工程的集中实施以及相对较好的气候和土壤条件[37~39],成为西南高山峡谷区植被EVI改善的核心区. 但随着海拔的降低,EVI呈显著下降的区域面积占比也大幅上升. 这说明中低海拔区域不仅是西南高山峡谷区植被恢复的核心区而且也是植被破坏的敏感区. 中低山河谷带和中山带的人居条件相对适宜,土地资源紧缺,一方面得益于退耕还林、封山育林等生态工程的实施,山区自然植被得到了恢复和保护[12,40],但另一方面由于道路建设、农田扩张和城市化,人类活动频繁的河谷地带的自然植被受到了不同程度的干扰和破坏[37,41]. 这在以往的研究中也得到证实,马炳鑫等[27]对西南地区植被变化的研究表明在实施退耕还林工程后,除城市周边地区外,人类活动对NDVI的影响以促进为主. 李薇等[42]对西南山区植被变化的研究也表明主要河流沿线的人口呈聚集趋势,河流沿线人口密度增加不利于植被的恢复. 高山带的人类活动强度较低,植被生长主要受限于土壤养分瘠薄以及低温环境,因而EVI显著上升和显著下降的比例最低. 荣欣等[41]对川西高原的研究也支持这一观点,该研究同样发现在大于4 000 m的高海拔地带,植被EVI波动幅度较低并趋于稳定.
4.2 植被对气温和降水变化响应的时间效应西南高山峡谷区植被EVI对气温和降水响应的时间效应存在显著差异. 总的来看,降水的时间效应对西南高山峡谷区植被生长的影响更广,覆盖了研究区94.09%的区域,气温则仅为59.76%. 降水累积效应的影响范围最大,达到70.61%,其次是气温累积效应(45.05%),气温和降水的时滞效应影响范围则不足10%. 就强度而言,植被生长对气温变化响应的平均滞后期和累积期仅为0.26和0.66个月,均不足1个月,表明气温变化对植被生长的影响普遍在当月或次月即得到反馈. 以往的研究也表明不仅是在西南高山峡谷区,在全球范围内气温变化对植被生长的影响大多也是立竿见影的[18]. 这是因为气温通过调控植物生理过程,如光合酶的活性[43]以及春物候的启动[44]等,可以直接对植被生长产生快速影响. 不同于气温,降水主要通过影响土壤水分从而间接地对植被生长产生长期影响[45],在水分渗入土壤以后,土壤水分可以通过毛管孔隙缓慢补给植被生长,从而维持长期的水分供应. 因此降水对植被生长的影响则要缓慢得多,主要表现为较强的累积效应,其平均累积期长达1.36个月远大于平均滞后期(0.31个月). 研究还发现,在不同海拔带上,降水的累积效应都远远强于时滞效应,体现了累积降水对西南高山峡谷区植被生长的重要驱动作用. 这也说明相比于某一历史时刻的降水,一定时间间隔内的累积降水对研究区当前植被生长的影响更大. 此外,对比不同海拔带,植被生长对降水响应的滞后期和累积期总是长于气温,也即植被生长对气温变化的响应总是先于降水变化. 这可能是因为气温是西南高山峡谷区植被生长的主要限制因子,只有在环境温度达到植被生长要求之后,降水才对植被生长起主导作用[29,46].
研究还发现西南高山峡谷区气候时间效应具有明显的垂直分异规律. 气温和降水的时滞效应随着海拔的升高而明显下降,这可能与水热条件的变化有关. 以往的研究表明[21,23,47],时滞效应的强弱与气候条件对植被生长的压力呈现负相关关系,即在干旱地区的植被对降水的响应表现出较短的滞后时间,而寒冷地区的植被对气温的响应表现出较短的滞后时间. Wu等[21]和Ding等[23]对全球范围的研究发现,青藏高原地区植被对气温响应的时滞效应几乎不存在. Bai等[47]对拉萨河流域的研究也表明生长季植被对降水的时滞效应几乎可以忽略不计. 以上发现与本文中关于滞后时间量化及其空间分布的描述相符. 此外,气温的累积效应随海拔的升高而明显下降. 这与Bai等[47]在拉萨河流域的研究结果相似,该研究同样发现在热量限制更强的高海拔地区植物生长对气温变化响应的累积期更短. 这一现象可能与不同植被达到其生长度日(growing degree days,GDD)所需时间的差异有关. 生长度日是指在某一特定环境因子影响下,植物能完成一个生育阶段所累积的有效积温[48]. 高海拔地区的热量资源严重不足,植被生长季持续时间短暂、有效积温很低. 为适应这种极端环境,相比于温暖地区,植被的耐寒性增强,生长发育所需生长度日也降低,以确保在短暂的生长季内完成必需的热量积累,因而对气温变化响应的累积时间更短[47].
4.3 植被对气候变化和人类活动的响应本研究发现,相比于不考虑时间效应(43.25%),考虑时滞效应、考虑累积效应以及同时考虑时滞和累积效应的情况下气候变化对EVI变化的平均解释力分别上升了6.68%、7.97%和8.16%,并且可以看出同时考虑时滞和累积效应时气候变化的解释力均优于其他情况(表 3). 因此在分析植被EVI动态时有必要考虑时滞和累积效应,避免对气候因子影响的低估. 在同时考虑时滞和累积效应时,西南高山峡谷区气候变化和人类活动对EVI变化的总体贡献率分别为44.61%和55.39%. 与赖金林等[28]的研究相比,气候变化的贡献率提升了13.28%. 造成这种差异的原因可能是由于西南高山峡谷区气候累积效应较强,而该研究没有考虑累积效应的影响. 不同海拔带气候变化和人类活动对植被EVI的影响存在明显差异. 在高山带,气候变化对植被EVI变化的正向贡献率高达52.30%,显著高于中山带(26.70%)和中低山河谷带(24.98%),体现了高寒高海拔地区生态系统对气候变化的敏感性. 以往的研究表明高海拔地区的植被变化主要受温度的控制[21],温度的升高可以通过增加土壤氮的矿化和有效性[49]、延长植物的生长时间[50]和增强植被的光合作用[51],进而促进植被的生长. 近20 a来西南高山峡谷区气温显著升高,且气温和植被覆盖变化呈现出显著正相关[25,28],说明气温可能是促进高海拔地区EVI上升的主要原因. 在中低山河谷带和中山带EVI变化则呈现人类主导的特征,人类活动的正向贡献率分别达53.37%和57.61%. 但值得注意的是在中低山河谷带,人类活动对植被EVI的负向作用也达到17.64%. 这说明一方面随着植树造林、退耕还林以及天然林保护等生态工程的实施,有效改善了中低海拔区域的植被状况[25,27,37]. 另一方面,在西部大开发的政策下,政府加强了对西部水能资源的开发利用以及道路桥梁等基础设施建设,随着人类活动强度的增加又对以三江并流区为代表的脆弱生态区的植被覆盖造成了一定破坏.
|
|
表 3 气候变化对不同海拔带和植被类型EVI变化的平均解释力/% Table 3 Average explanatory power of climate change on EVI changes in different elevation zones and vegetation types/% |
就不同植被类型而言,人类活动与气候变化的影响呈现明显的梯度变化特征. 从森林、灌丛到有林草原、稀树草原再到永久性湿地、农田和草地,人类活动的影响不断衰减(72.64%→43.07%),而气候变化的影响则逐渐增强(27.36%→56.93%). 这可能与不同生态系统的结构特征以及空间分布有关. 例如,森林因其复杂的垂直结构能够形成独特的内部小气候,从而有效缓冲外界气候因子波动[52,53],但其空间分布往往与人类活动密集区重叠,易受人类活动的影响. 相比之下,草地多分布于偏远地区,远离人类聚居区,但由于其结构简单且根系较浅,对水热条件变化更为敏感,易受气候变化的影响. 研究还发现,各植被类型中森林受到的人类活动正向和负向影响均最高,分别为53.61%和19.02%,凸显出区域经济发展与生态保护之间的矛盾. 未来,一方面应加强森林保护的监管和执法力度,确保生态工程有效实施和长期效益. 另一方面,还应把握乡村振兴和绿色转型的新机遇,积极培育绿色经济,推动森林食品和生态旅游高质量发展,从而协调生态保护与经济发展,实现区域可持续发展.
4.4 局限性和不确定性本研究为了解西南高山峡谷区植被与气候之间的关系提供了新的见解,但仍存在一些局限性和不确定性. 首先,尽管与归一化植被指数(NDVI)相比,EVI指数能降低大气和土壤背景的干扰,更准确地反映植被的生长状况,但数据仅涵盖2001~2023年,时间跨度较小. 为了更好地了解气候与植被变化的关系,后续的研究考虑延长时间范围以获取更多信息. 其次是计算时滞和累积效应的数据仅为1 km分辨率的月尺度EVI和气候数据,时间和空间上的评估精度仍有不足. 此外,影响植被生长的气候因素除了气温和降水外,还有蒸散量、太阳辐射和饱和水汽压差等其他因素. 植被生长与气候变化之间的关系也相当复杂可能涉及非线性关系,在月尺度上建立的EVI与气候因素的线性关系可能忽视季节变化带来的影响,从而导致不确定性. 因此,未来还需要进一步对以上问题加以明晰,从而提升对植被生长与气候变化及人类活动之间关系的理解.
5 结论(1)西南高山峡谷区生长季多年EVI均值具有很强的海拔依赖性,随海拔的上升加速下降. 2001~2023年EVI呈显著上升趋势(P < 0.001),但在时空分布上具有一定的空间异质性. EVI上升面积占比80.49%,其中显著上升面积占比24.15%,集中分布在云贵高原西北部. EVI显著下降面积占比1.31%,零星分布于平原和河谷地区.
(2)西南高山峡谷区植被生长对气候变化响应的时间效应随气候因子、植被类型和海拔梯度的不同而变化. 总体上,植被生长对降水和气温变化的响应表现出明显的累积效应,分别影响了研究区70.61%和45.05%的区域. 气温和降水对植被的影响分别平均滞后0.26、0.31个月,平均累积0.66、1.36个月. 降水影响植被生长的滞后期和累积期均长于气温,植被生长对气温变化更敏感.
(3)气候变化和人类活动的共同驱动作用是西南高山峡谷区EVI显著上升的主要因素. 气候变化和人类活动对植被EVI变化的贡献率分别为44.61%和55.39%. 在高山带EVI变化主要受气候变化的正向影响,而在中山带和中低山河谷带EVI变化主要受人类活动的正向影响. 不同植被类型中,人类活动对EVI变化的负向影响总是大于气候变化的负向影响. 森林EVI变化受气候变化和人类活动的负向影响最高,草地EVI变化受气候变化的正向影响最高.
| [1] |
曹永强, 周姝含, 杨雪婷. 近20年辽宁省植被动态特征及其对气候变化的响应[J]. 生态学报, 2022, 42(14): 5966-5979. Cao Y Q, Zhou S H, Yang X T. Vegetation dynamics and its response to climate change in Liaoning Province in last 20 years[J]. Acta Ecologica Sinica, 2022, 42(14): 5966-5979. |
| [2] | Anderson R G, Canadell J G, Randerson J T, et al. Biophysical considerations in forestry for climate protection[J]. Frontiers in Ecology and the Environment, 2011, 9(3): 174-182. DOI:10.1890/090179 |
| [3] | Piao S L, Wang X H, Ciais P, et al. Changes in satellite-derived vegetation growth trend in temperate and boreal Eurasia from 1982 to 2006[J]. Global Change Biology, 2011, 17(10): 3228-3239. DOI:10.1111/j.1365-2486.2011.02419.x |
| [4] |
马云飞, 何全军, 张月维, 等. 气候因子和人类活动对松辽流域植被叶面积指数动态的影响[J]. 生态学报, 2024, 44(5): 2043-2056. Ma Y F, He Q J, Zhang Y W, et al. Influences of climate factors and human activities on vegetation leaf area index dynamics in the Songliao River Basin[J]. Acta Ecologica Sinica, 2024, 44(5): 2043-2056. |
| [5] | Ma M Y, Wang Q M, Liu R, et al. Effects of climate change and human activities on vegetation coverage change in northern China considering extreme climate and time-lag and -accumulation effects[J]. Science of the Total Environment, 2023, 860. DOI:10.1016/j.scitotenv.2022.160527 |
| [6] | Zuo Y F, Li Y H, He K N, et al. Temporal and spatial variation characteristics of vegetation coverage and quantitative analysis of its potential driving forces in the Qilian Mountains, China, 2000-2020[J]. Ecological Indicators, 2022, 143. DOI:10.1016/j.ecolind.2022.109429 |
| [7] |
金岩松, 金凯, 王飞, 等. 气候变化和人类活动对东部沿海地区NDVI变化的影响分析[J]. 环境科学, 2023, 44(6): 3329-3342. Jin Y S, Jin K, Wang F, et al. Impacts of climate change and human activities on NDVI change in eastern coastal areas of China[J]. Environmental Science, 2023, 44(6): 3329-3342. DOI:10.13227/j.hjkx.202207039 |
| [8] |
张亚军, 李佩, 张猛, 等. 2000~2020年陕西省植被动态对气候变化和人类活动的响应[J]. 环境科学, 2025, 46(6): 3619-3631. Zhang Y J, Li P, Zhang M, et al. Response of vegetation dynamics to climate change and human activities in Shaanxi Province from 2000 to 2020[J]. Environmental Science, 2025, 46(6): 3619-3631. DOI:10.13227/j.hjkx.202405140 |
| [9] | Shi Y, Jin N, Ma X L, et al. Attribution of climate and human activities to vegetation change in China using machine learning techniques[J]. Agricultural and Forest Meteorology, 2020, 294. DOI:10.1016/j.agrformet.2020.108146 |
| [10] |
仇宽彪, 成军锋. 陕西省植被水分利用效率及与气候因素的关系[J]. 水土保持研究, 2015, 22(6): 256-260. Qiu K B, Cheng J F. Vegetation water use efficiency and its relationship with climate in Shaanxi Province[J]. Research of Soil and Water Conservation, 2015, 22(6): 256-260. |
| [11] |
耿庆玲, 陈晓青, 赫晓慧, 等. 中国不同植被类型归一化植被指数对气候变化和人类活动的响应[J]. 生态学报, 2022, 42(9): 3557-3568. Geng Q L, Chen X Q, He X H, et al. Vegetation dynamics and its response to climate change and human activities based on different vegetation types in China[J]. Acta Ecologica Sinica, 2022, 42(9): 3557-3568. |
| [12] |
徐勇, 戴强玉, 黄雯婷, 等. 2000~2020年西南地区植被NDVI时空变化及驱动机制探究[J]. 环境科学, 2023, 44(1): 323-335. Xu Y, Dai Q Y, Huang W T, et al. Spatio-temporal variation in vegetation cover and its driving mechanism exploration in Southwest China from 2000 to 2020[J]. Environmental Science, 2023, 44(1): 323-335. DOI:10.13227/j.hjkx.202203154 |
| [13] |
田智慧, 任祖光, 魏海涛. 2000~2020年黄河流域植被时空演化驱动机制[J]. 环境科学, 2022, 43(2): 743-751. Tian Z H, Ren Z G, Wei H T. Driving mechanism of the spatiotemporal evolution of vegetation in the Yellow River Basin from 2000 to 2020[J]. Environmental Science, 2022, 43(2): 743-751. DOI:10.13227/j.hjkx.202105213 |
| [14] | Yan M L, Lu J Y, Ma Y Y, et al. A remote sensing evidence on the marginality, stagementation and spatiotemporal heterogeneity of vegetation evolution characteristics in the Yinshan Mountains, China: based on PKU GIMMS NDVI (1984-2022)[J]. Ecological Indicators, 2025, 171. DOI:10.1016/j.ecolind.2025.113193 |
| [15] |
梁植, 孙若辰, 段青云. 黄河水源涵养区植被NDVI时空变化特征及其驱动因子[J]. 地理科学进展, 2023, 42(9): 1717-1732. Liang Z, Sun R C, Duan Q Y. Spatiotemporal variation of NDVI in the Yellow River water conservation zone and its driving factors[J]. Progress in Geography, 2023, 42(9): 1717-1732. |
| [16] |
王永锋, 靖娟利, 刘海红, 等. 顾及时滞和累积效应的西南喀斯特地区植被变化归因分析[J]. 环境科学, 2025, 46(7): 4382-4391. Wang Y F, Jing J L, Liu H H, et al. Attribution analysis of vegetation variation in the karst region of Southwest China considering time lag and accumulation effects[J]. Environmental Science, 2025, 46(7): 4382-4391. DOI:10.13227/j.hjkx.202406168 |
| [17] | Anderegg W R L, Schwalm C, Biondi F, et al. Pervasive drought legacies in forest ecosystems and their implications for carbon cycle models[J]. Science, 2015, 349(6247): 528-532. DOI:10.1126/science.aab1833 |
| [18] | Ma Y R, Guan Q Y, Sun Y F, et al. Three-dimensional dynamic characteristics of vegetation and its response to climatic factors in the Qilian Mountains[J]. CATENA, 2022, 208. DOI:10.1016/j.catena.2021.105694 |
| [19] | Ma S, Wang L J, Jiang J, et al. Threshold effect of ecosystem services in response to climate change and vegetation coverage change in the Qinghai-Tibet Plateau ecological shelter[J]. Journal of Cleaner Production, 2021, 318. DOI:10.1016/j.jclepro.2021.128592 |
| [20] | Liang J Z, Han X Y, Zhou Y K, et al. Investigating the temporal lag and accumulation effect of climatic factors on vegetation photosynthetic activity over subtropical China[J]. Ecological Indicators, 2024, 166. DOI:10.1016/j.ecolind.2024.112406 |
| [21] | Wu D H, Zhao X, Liang S L, et al. Time-lag effects of global vegetation responses to climate change[J]. Global Change Biology, 2015, 21(9): 3520-3531. DOI:10.1111/gcb.12945 |
| [22] | Wen Y Y, Liu X P, Xin Q C, et al. Cumulative effects of climatic factors on terrestrial vegetation growth[J]. Journal of Geophysical Research: Biogeosciences, 2019, 124(4): 789-806. DOI:10.1029/2018JG004751 |
| [23] | Ding Y X, Li Z, Peng S Z. Global analysis of time-lag and -accumulation effects of climate on vegetation growth[J]. International Journal of Applied Earth Observation and Geoinformation, 2020, 92. DOI:10.1016/j.jag.2020.102179 |
| [24] |
周金星, 关颖慧, 汪亚峰, 等. 西南高山峡谷区水土流失综合防治技术与示范[J]. 生态学报, 2024, 44(18): 7937-7943. Zhou J X, Guan Y H, Wang Y F, et al. Technology and demonstration of comprehensive control of soil and water loss in Southwest alpine Gorge area[J]. Acta Ecologica Sinica, 2024, 44(18): 7937-7943. |
| [25] |
赖金林, 齐实, 崔冉冉, 等. 西南高山峡谷区植被变化及影响因素分析[J]. 环境科学, 2023, 44(12): 6833-6846. Lai J L, Qi S, Cui R R, et al. Analysis of vegetation change and influencing factors in southwest alpine canyon area[J]. Environmental Science, 2023, 44(12): 6833-6846. DOI:10.13227/j.hjkx.202212190 |
| [26] |
顾峰雪, 庞瑞, 张远东, 等. 1954—2010年西南高山地区土壤碳储量时空动态及对气候变化的响应[J]. 自然资源学报, 2014, 29(11): 1930-1943. Gu F X, Pang R, Zhang Y D, et al. Temporal-spatial variations of soil organic carbon and their responses to climate change in alpine area of Southwest China during 1954-2010[J]. Journal of Natural Resources, 2014, 29(11): 1930-1943. |
| [27] |
马炳鑫, 和彩霞, 靖娟利, 等. 1982—2019年中国西南地区植被变化归因研究[J]. 地理学报, 2023, 78(3): 714-728. Ma B X, He C X, Jing J L, et al. Attribution of vegetation dynamics in Southwest China from 1982 to 2019[J]. Acta Geographica Sinica, 2023, 78(3): 714-728. |
| [28] |
赖金林, 齐实, 廖瑞恩, 等. 2000—2019年西南高山峡谷区植被变化对气候变化和人类活动的响应[J]. 农业工程学报, 2023, 39(14): 155-163. Lai J L, Qi S, Liao R E, et al. Vegetation change responses to climate change and human activities in southwest alpine canyon areas of China from 2000 to 2019[J]. Transactions of the Chinese Society of Agricultural Engineering, 2023, 39(14): 155-163. |
| [29] |
汪美宏, 赵慧, 吴晓兰, 等. 考虑气候时间效应的额尔齐斯河流域植被动态变化及其驱动力[J]. 生态学报, 2024, 44(22): 10352-10366. Wang M H, Zhao H, Wu X L, et al. Vegetation dynamics and its driving force in the Irtysh River Basin considering climatic temporal effects[J]. Acta Ecologica Sinica, 2024, 44(22): 10352-10366. |
| [30] |
陈祖亮, 肖林颖, 王丽娜, 等. 西南高山峡谷区水分利用效率时空变化及其对气候变化和人类活动的响应[J]. 生态学报, 2025, 45(14): 6756-6769. Chen Z L, Xiao L Y, Wang L N, et al. Spatio-temporal variation of water use efficiency and its response to climate change and human activities in the southwest alpine canyon area of China[J]. Acta Ecologica Sinica, 2025, 45(14): 6756-6769. |
| [31] |
丁琳, 黄婷婷, 秦伟, 等. 西南高山峡谷区土壤侵蚀空间分异特征[J]. 泥沙研究, 2023, 48(6): 51-58, 66. Ding L, Huang T T, Qin W, et al. Spatial variation of soil erosion in southwest alpine canyon area[J]. Journal of Sediment Research, 2023, 48(6): 51-58, 66. |
| [32] |
何云玲, 李同艳, 熊巧利, 等. 2000—2016年云南地区植被覆盖时空变化及其对水热因子的响应[J]. 生态学报, 2018, 38(24): 8813-8821. He Y L, Li T Y, Xiong Q L, et al. Spatio-temporal patterns of vegetation coverage and response to hydrothermal factors in Yunnan Province, China[J]. Acta Ecologica Sinica, 2018, 38(24): 8813-8821. |
| [33] |
李楠, 韩金锋, 阳维宗, 等. 2000—2019年若尔盖高原植被生长季NDVI时空变化特征研究[J]. 西南林业大学学报, 2021, 41(1): 133-139. Li N, Han J F, Yang W Z, et al. Spatio-temporal variation of NDVI in the vegetation growing season of the Zoige Plateau from 2000 to 2019[J]. Journal of Southwest Forestry University, 2021, 41(1): 133-139. |
| [34] |
袁丽华, 蒋卫国, 申文明, 等. 2000—2010年黄河流域植被覆盖的时空变化[J]. 生态学报, 2013, 33(24): 7798-7806. Yuan L H, Jiang W G, Shen W M, et al. The spatio-temporal variations of vegetation cover in the Yellow River Basin from 2000 to 2010[J]. Acta Ecologica Sinica, 2013, 33(24): 7798-7806. |
| [35] | Ivits E, Horion S, Erhard M, et al. Assessing European ecosystem stability to drought in the vegetation growing season[J]. Global Ecology and Biogeography, 2016, 25(9): 1131-1143. DOI:10.1111/geb.12472 |
| [36] | Evans J, Geerken R. Discrimination between climate and human-induced dryland degradation[J]. Journal of Arid Environments, 2004, 57(4): 535-554. DOI:10.1016/S0140-1963(03)00121-6 |
| [37] |
李美丽, 尹礼昌, 张园, 等. 基于MODIS-EVI的西南地区植被覆盖时空变化及驱动因素研究[J]. 生态学报, 2021, 41(3): 1138-1147. Li M L, Yin L C, Zhang Y, et al. Spatio-temporal dynamics of fractional vegetation coverage based on MODIS-EVI and its driving factors in Southwest China[J]. Acta Ecologica Sinica, 2021, 41(3): 1138-1147. |
| [38] |
张廷靖, 邵全琴, 刘树超, 等. 云贵高原生态恢复空间分异及其影响因素[J]. 生态学报, 2024, 44(4): 1374-1388. Zhang T J, Shao Q Q, Liu S C, et al. Spatial differentiation and influencing factors of ecological restoration in the Yunnan-Guizhou Plateau[J]. Acta Ecologica Sinica, 2024, 44(4): 1374-1388. |
| [39] |
赵勤, 张兴强, 蒲应春, 等. 贵州省自然保护地建设现状及发展策略[J]. 林业调查规划, 2024, 49(1): 69-73. Zhao Q, Zhang X Q, Pu Y C, et al. Current situation and development strategies of natural protected areas in Guizhou Province[J]. Forest Inventory and Planning, 2024, 49(1): 69-73. |
| [40] |
马炳鑫, 靖娟利, 徐勇, 等. 2000—2019年滇黔桂岩溶区植被NPP时空变化及与气候变化的关系研究[J]. 生态环境学报, 2021, 30(12): 2285-2293. Ma B X, Jing J L, Xu Y, et al. Spatial-temporal changes of NPP and its relationship with climate change in karst areas of Yunnan, Guizhou and Guangxi from 2000 to 2019[J]. Ecology and Environmental Sciences, 2021, 30(12): 2285-2293. |
| [41] |
荣欣, 易桂花, 张廷斌, 等. 2000~2015年川西高原植被EVI海拔梯度变化及其对气候变化的响应[J]. 长江流域资源与环境, 2019, 28(12): 3014-3028. Rong X, Yi G H, Zhang T B, et al. Change of vegetation EVI with altitude gradient and its response to climate change in the western Sichuan Plateau from 2000 to 2015[J]. Resources and Environment in the Yangtze Basin, 2019, 28(12): 3014-3028. |
| [42] |
李薇, 谈明洪. 西南山区人口空间重组及其对植被的影响——以河流沿线为例[J]. 生态学报, 2018, 38(24): 8879-8887. Li W, Tan M H. Spatial redistribution of populations in mountainous areas and its impact on vegetation change in Southwest China: a riverside case study[J]. Acta Ecologica Sinica, 2018, 38(24): 8879-8887. |
| [43] | Franklin K A. Light and temperature signal crosstalk in plant development[J]. Current Opinion in Plant Biology, 2009, 12(1): 63-68. DOI:10.1016/j.pbi.2008.09.007 |
| [44] | Shen X J, Liu B H, Henderson M, et al. Asymmetric effects of daytime and nighttime warming on spring phenology in the temperate grasslands of China[J]. Agricultural and Forest Meteorology, 2018, 259: 240-249. DOI:10.1016/j.agrformet.2018.05.006 |
| [45] |
王坤悦, 李旭红, 余新晓, 等. 北京山区典型植被土壤水分对次降雨的响应[J]. 生态学报, 2024, 44(6): 2561-2571. Wang K Y, Li X H, Yu X X, et al. Response of soil moisture of typical vegetation to individual rainfall in Beijing mountain area[J]. Acta Ecologica Sinica, 2024, 44(6): 2561-2571. |
| [46] | Zhou X C, Geng X J, Yin G D, et al. Legacy effect of spring phenology on vegetation growth in temperate China[J]. Agricultural and Forest Meteorology, 2020, 281. DOI:10.1016/j.agrformet.2019.107845 |
| [47] | Bai T K, Liu J T, Liu H, et al. Elevation-dependent patterns of temporally asymmetrical vegetation response to climate in an alpine basin on the Qinghai-Tibet Plateau[J]. Ecological Indicators, 2024, 159. DOI:10.1016/j.ecolind.2024.111736 |
| [48] |
徐博, 王英哲, 徐安凯, 等. 基于生长度日的紫花苜蓿生育期预测模型[J]. 草业科学, 2016, 33(1): 93-100. Xu B, Wang Y Z, Xu A K, et al. Study of simulation model of alfalfa plants development based on growing degree days[J]. Pratacultural Science, 2016, 33(1): 93-100. |
| [49] | Chapin Ⅲ F S, Shaver G R, Giblin A E, et al. Responses of arctic tundra to experimental and observed changes in climate[J]. Ecology, 1995, 76(3): 694-711. DOI:10.2307/1939337 |
| [50] | Mulder C P H, Iles D T, Rockwell R F. Increased variance in temperature and lag effects alter phenological responses to rapid warming in a subarctic plant community[J]. Global Change Biology, 2017, 23(2): 801-814. DOI:10.1111/gcb.13386 |
| [51] | Shi C G, Sun G, Zhang H X, et al. Effects of warming on chlorophyll degradation and carbohydrate accumulation of alpine herbaceous species during plant senescence on the Tibetan Plateau[J]. PLoS One, 2014, 9(9). DOI:10.1371/journal.pone.0107874 |
| [52] | De Frenne P, Zellweger F, Rodríguez-Sánchez F, et al. Global buffering of temperatures under forest canopies[J]. Nature Ecology & Evolution, 2019, 3(5): 744-749. |
| [53] | Zellweger F, Coomes D, Lenoir J, et al. Seasonal drivers of understorey temperature buffering in temperate deciduous forests across Europe[J]. Global Ecology and Biogeography, 2019, 28(12): 1774-1786. DOI:10.1111/geb.12991 |