 2025, Vol. 46


2. 桂林理工大学岩溶地区水污染控制与用水安全保障协同创新中心,桂林 541004
2. Collaborative Innovation Center for Water Pollution Control and Water Safety in Karst Area, Guilin 541004, China
铅和锌矿产作为重要的工业原材料其开采形成的矿渣堆积破坏了生态景观[1],加速了水土流失,成为持续的重金属污染源,造成周边生态环境恶化,并影响周边居民健康[2,3]. 中国一半以上的金属矿山和矿床位于华南岩溶发育地区,喀斯特地貌是地下水与地表水对可溶性岩石溶蚀与沉淀在碳酸盐岩上形成的特殊景观[4,5]. 碳酸盐岩由于成土速度极慢,不能产生大量的土壤[6]. 有研究表明,喀斯特地区土壤重金属污染具有多重重金属复合污染的特点,流动性强,潜在生态风险高,治理具有挑战[7,8]. 在喀斯特地区裸露的尾砂库通过原生演替重建自然植被相当困难[9,10]. 在这种情况下,Lin等[11]和Zhu等[12]研究发现通过根际土壤覆盖法(RSC),有助于尾砂库先锋植物群落的构建. 先锋植物可以改善土壤环境,从而促进更多的植物定植. 例如,Leon[13]发现豆科的藤本植物——野葛,铺展能力很强,并且可以有效增加基质中的氮元素含量. 另外,Sun等[14]发现芒草可耐受贫瘠营养和重金属污染并且生长速度快,可作为土壤碳的主要贡献者. 因此,通过先锋植物优先定植配合根际土壤覆盖可以在较短时间内恢复尾砂库生态,并促进其他植物生长,适合用于喀斯特地区尾砂库生态恢复.
微生物作为土壤生态系统中不可或缺的一部分,在生态系统的营养循环与能量流动中发挥了重要作用[15~17]. Hnini等[18]和Zhan等[19]发现土壤中微生物如固氮菌、根际促生细菌和丛枝菌根真菌等可以帮助植物从土壤中获取营养物质,调节植物生长激素,抑制土壤中的植物病害病毒,促进植物生长. 除此之外,土壤微生物可以通过生物吸附、生物累积和生物转化等各种作用固定土壤中的重金属离子[20~22]. 例如,Yan等[23]的研究发现伯克霍尔德菌属1-22和芽孢杆菌属6-6在Cd浓度200 mg∙L-1的环境中仍可正常生长,可显著增强植物根系对镉的解毒作用,减轻毒性. 在对尾砂库进行植被恢复的过程中,微生物容易受到各种环境因子的影响,尤其在植被类型不同的情况下土壤中微生物群落的特征与多样性也会呈现差异. 韩丰泽等[24]发现不同碳源会导致优势微生物种群的丰度不同,曾奥琪等[25]研究了有机质分布变化对微生物群落结构的影响,李仑等[26]研究了植被恢复及凋落物对高寒山区土壤中微生物群落的影响,Zhou等[27]还探究了钒胁迫对于土壤-尾矿-地下水系统微生物群落的影响. 由于尾砂库的复杂生境,在植被恢复时通常会呈现不同的恢复效果,形成不同的优势植物群落. 探究不同恢复区域土壤中微生物群落的分布特征与关键驱动因素,对于尾砂库的生态恢复具有重要意义.
因此,本文选取桂林市阳朔县铅锌矿尾砂库为研究对象. 分别采集了库区中不同区域的0~20 cm表层土壤样品. 本研究的主要目的是:①调查尾砂库植被恢复过程中土壤理化性质的变化情况,评价不同区域的恢复情况;②分析不同区域表层土壤中微生物的群落结构特征与多样性,探究群落构建过程;③探究影响微生物群落结构的主要环境因子,并对微生物的相关功能进行预测. 本研究拟揭示先锋植物优先覆土定植对铅锌矿尾砂库的修复效果,及复垦矿区不同区域的微生物群落特征,可以在退化的尾砂库的生态系统重建工程中提供生态学依据.
1 材料与方法 1.1 研究区域研究区位于广西壮族自治区北部(N 25°00′05″~25°00′10″,E 110°36′24″~110°36′29″),是中国喀斯特地貌发育最完善的地区. 当地属于典型的亚热带季风气候,热量丰富,降水充沛,年总降水量约1 929 mm,年平均气温为20℃. 该铅锌矿早在明朝万历年间就已有矿民进行铅锌矿石开采活动,于1958年成为阳朔县铅锌矿国有企业,开始规模化开采作业. 尾砂库占地约26 000 m2,运行了38 a的尾砂库于1996年停止使用. 2016年开展生态恢复工程,对矿区进行棋盘式覆土后种植芒草与葛藤两种先锋植物. 此后没有对矿区进行人为干预,任其进行自然生长. 经过5 a的自然演替后,库区的植被覆盖度与群落丰度均大幅提升. 研究区概况与样区分布如图 1所示.

|
图 1 研究区概况与样点分布示意 Fig. 1 Overview of the study area and distribution of sample sites |
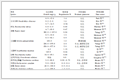
本研究采取空间代替时间的方法,将整个尾砂库划分为3个区域:人为恢复区(A区)、自然过渡区(B区)和对照区(C区). 通过选择处于不同恢复阶段的区域进行采样,来揭示尾砂库植被恢复的生态过程. 其中人为恢复区在恢复初期覆土后人为种植芒草与葛藤并经过5 a自然演替,植被恢复程度较高,植被类型与群落最为丰富,该区域最主要的优势群落为人工种植的芒草,植被类型主要有草本、乔木、灌木和藤本. 自然过渡区中植被恢复程度低于人为修复区,其中人为种植的修复植物与自然入侵植物混合生长,但自然入侵植物为优势种,植被类型主要为草本与藤本. 对照区在修复初期便遭到人为破坏,修复植物未成功生长,呈现出尾砂库未修复前的原始状态,植被覆盖度最低. 每个区域的植被调查结果如表 1中所示. 在每个区域随机设置3个采样点,相邻采样点间距超过20 m,每个采样点设置2 m×2 m的样方,使用五点采样法在每个样方的4个角落及中间点,去掉表层的枯枝落叶后采集0~20 cm的表层土壤,并将五份土样混匀作为一份样品. 将采集的土壤样品分为两部分,一部分装在编织布袋中用于测定土壤理化性质;另一部分去除根系及石块后装在聚乙烯塑封袋中,迅速储藏在液氮罐中,样品送回实验室后储存在-80℃冰箱中以待后续对土壤中微生物进行高通量测序.
|
表 1 样地基本信息 Table 1 Basic information of the sampling sites |
1.3 土壤理化性质测定
土壤基本理化性质参考《土壤农业化学分析方法》[28],土样在烘箱中105℃烘干至恒重后测定土壤含水率(MC). 将土壤样品自然风干后研磨并分别过0.850 mm与0.149 mm尼龙筛备用. 将过筛后的土壤样品按1∶2.5(土壤/水)的比例溶于水,振荡1h并静置后使用pH电极测定土壤样品的pH;土壤有机质(SOM)使用重铬酸钾容量法测定. 土壤样品中氮和磷元素的测定参照森林土壤中氮、磷测定的标准(LY/1232-2015);土壤全氮(TN)使用元素分析仪测定;土壤全磷(TP)采用钼锑抗比色法测定. 土壤样品中重金属元素含量参照固体废弃物中金属元素的测定标准(HJ 781-2016);采用混合酸(HCl+HF+HNO3+HClO4)按体积比5∶4∶4∶2对土壤样品进行消解,使用电感耦合等离子体发射光谱法(ICP-OES;Optima 7000DV,PerkinElmer,Wellesley,MA,USA)测定土壤中K、Cr、Cd、Zn、Pb和Cu的总含量;使用原子荧光光度计测定土壤中As的含量(AFS-9700;Beijing Jitian Instrument Co.,Ltd.,Beijing,China).
1.4 DNA提取与测序使用OMEGA试剂盒(E.Z.N.ATM Mag-Bind Soil DNA Kit提取试剂盒)提取土壤样品中的DNA,采用1%琼脂糖凝胶电泳方法分别检测DNA的完整性. 利用Qubit®4.0 DNA检测试剂盒对基因组DNA进行精确定量后,以确定PCR反应应加入的DNA量. 第一轮扩增通过引物341F(CCTACGGGNGGCWGCAG)和805R(GACTACHVGGGTATCTAATCC)对其16S rRNA序列基因的V3-V4高变区域进行扩增. 扩增程序如下:94℃预变性3 min,5个循环(94℃变性30 s,45℃退火20 s,65℃延伸30 s),20个循环(94℃变性20 s,55℃退火20 s,72℃延伸30 s),然后72℃稳定延伸5 min,最后10℃保存. 第二轮扩增,引入Illumina桥式PCR兼容引物,反应程序为:95℃预变性3 min,5个循环(94℃变性20 s,55℃退火20 s,72℃延伸30 s),然后72℃稳定延伸5 min,最后10℃保存. 通过2%琼脂糖凝胶电泳检测文库大小,使用Qubit3.0荧光定量仪进行浓度测定,所有样本按照1∶1等量混合. 然后将基因的扩增子进一步于二代高通量测序平台进行编码、汇集及测序. 测序完成后,对原始数据进行剪切、过滤和拼接,在97%水平下将优质序列聚类为OTU,然后对OTU序列进行物种注释.
1.5 数据处理使用Excel 2022和SPSS 23对实验数据进行处理与统计分析,分析前对数据进行方差齐性检验,结果表明数据均具有方差齐性. 不同处理间采用单因素方差分析进行差异显著性分析,以P < 0.05为差异显著性判定标准. 使用Origin 2024及R 2022进行图形绘制.
2 结果与分析 2.1 不同修复区域土壤理化性质及重金属含量研究区不同恢复区域土壤理化性质见表 2,自然过渡区的土壤含水率(MC)显著高于人为恢复区与对照区;对照区的pH值显著低于人为恢复区和自然过渡区. 不同恢复区的营养物质含量中,除自然过渡区土壤中的SOM含量显著较高外,土壤总钾(TK)、总磷(TP)与总氮(TN)含量并没有显著差异,对照区的营养物质总体上略低于人为恢复区与自然过渡区.
|
|
表 2 不同恢复区土壤理化性质1) Table 2 Physical and chemical properties of soil in different pollution areas |
不同区域土壤中重金属元素含量的分布存在一定差异,人为恢复区的Zn含量显著低于自然过渡区与对照区,自然过渡区的Cu含量显著高于人为恢复区与对照区,Cr的含量在不同区域的含量存在显著差异,且其均值的标准差较大,说明数据的离散程度较大,重金属Cr在尾砂库不同区域土壤中的含量差异较大;同样,As含量的数据离散程度也较大,其在尾砂库土壤中的分布存在异质性.
2.2 不同区域土壤微生物相对丰度对比不同区域的土壤微生物在门水平上的群落结构如图 2所示,相对丰度前5位的优势菌门为变形菌门(Proteobacteria),酸杆菌门(Acidobacteria)、绿弯菌门(Chloroflexi)、Patescibacteria门和浮霉菌门(Planctomycetes);平均相对丰度分别为40.8%、10.7%、7.8%、7.7%和7.4%,占总微生物群落相对丰度的70%以上. 其中,变形菌门(Proteobacteria)是整个尾砂库中相对丰度最高的微生物群落. 人为恢复区与自然过渡区的变形菌门、Patescibacteria门相对丰度高于对照区,而对照区的酸杆菌门与绿弯菌门相对丰度高于人为恢复区和自然过渡区.

|
图 2 不同区域微生物物种分布 Fig. 2 Microbial species distribution in different regions |
不同区域土壤样品中微生物在属分类水平下相对丰度前5位的菌属分别为鞘氨醇单胞菌属(Sphingomonas)、Leeia属、norank_CO119属、norank_Blatocatellaceae属和norank_Gemmatimonadaceae属,平均相对丰度分别为5.1%、3.3%、2.5%、2.2%和1.9%. 其他菌属的相对丰度较高,占总丰度的70%~80%. 在属分类水平下,不同区域土壤中微生物群落体现出明显差异. 鞘氨醇单胞菌属(Sphingomonas)在自然过渡区中的相对丰度显著低于人为恢复区及对照区(P < 0.05);Leeia属在自然过渡区的相对丰度显著高于人为恢复区及对照区(P < 0.05);norank_CO119属在对照区中的丰度显著高于人为恢复区及自然过渡区(P < 0.05). 鞘氨醇单胞菌属(Sphingomonas)、Leeia属和norank_CO119属分别为人为恢复区、自然过渡区与对照区中的最优势种群.
2.3 不同区域土壤微生物多样性 2.3.1 微生物α-多样性分析各区域土壤样品微生物群落的α指数如图 3所示,人为恢复区的ACE指数(844.49±10.27)及Chao指数(827.38±19.24)均高于自然过渡区及对照区,说明人为恢复区土壤中微生物群落的丰度最高;同时人为恢复区微生物群落的Simpson指数低于自然过渡区与对照区(0.018±0.002),且Shannon指数(4.99±0.15)高于自然过渡区与对照区,说明人为恢复区土壤中微生物群落的多样性最高. 总体上,微生物群落丰度与多样性呈现出人为恢复区 > 自然过渡区 > 对照区的趋势. 通过差异性检验分析可以看出,人为恢复区与对照区土壤中微生物群落丰度存在显著差异.

|
*表示P < 0.05,ns表示无显著差异 图 3 不同区域土壤样品的α-多样性指数 Fig. 3 The α-diversity index of soil samples from different regions |
利用PCoA分析以及ANOSIM检验对不同区域土壤中微生物群落的β-多样性进行分析. 如图 4(a),PCoA分析表明,人为恢复区3个采样点的距离较近,表明其中微生物聚集性较高,其组内变异较小;对照区与自然过渡区的采样点距离较远,表明其中微生物聚集性较低,其组内变异性较大. 第一PC主坐标轴解释率为25.93%,第二PC主坐标轴解释率为18.94%,两者累计解释样本组成差异的44.87%. PC1可将人为恢复区、对照区与自然过渡区明显分开,说明PC1是导致人为修复区、对照区与自然过渡区土壤中微生物群落产生差异的主要因素. 人为恢复区与对照区的群落结构具有相似性,而自然过渡区表现出有别于其他区域的独特性. ANOSIM分析结果其R值为0.242 8,表明各区域土壤中微生物群落的组间差异显著大于其组内差异(P < 0.05).

|
图 4 基于OTU水平的PCoA分析与ANOSIM检验 Fig. 4 PCoA analysis and ANOSIM test based on OTU level |
为了探究不同区域土壤中微生物群落的构建机制,使用零模型计算了各区域的βNTI值,用以评估确定性与随机性过程在微生物群落组装过程中的相对重要性. 当βNTI≤-2或βNTI≥2时,表示共存的群落显著高于系统发育运转,可以定义为主导的确定性过程;而当-2 < βNTI < 2时,表示共存的群落显著低于系统发育运转,可以定义为显性的随机过程. 结果如图 5所示,对照区土壤中微生物的构建过程以随机性为主,人为恢复区与自然过渡区中群落构建过程以确定性为主. 自然过渡区与对照区存在显著差异(P < 0.05). 结合RCbray值,能够进一步细分群落构建的类型. 人为恢复区的主要生态过程为异质选择与生态漂移;自然过渡区的主要生态过程为异质选择与同质扩散;对照区中扩散限制占绝大多数,同质扩散仅占1%,结果佐证了零模型对群落构建过程的运算结果.

|
(a)不同区域零模型βNTI值,(b)不同区域群落构建过程比例;*表示P < 0.05,NS表示无显著差异 图 5 不同区域微生物群落的βNTI值与群落构建过程相对比例 Fig. 5 The βNTI values of microbial communities in different regions and relative proportions of community building processes |
基于KEGG数据库,使用Picrust2对于不同区域土壤中获得的非冗余基因序列进行功能预测,结果如图 6所示. 在一级功能通路中,其优势功能组成为新陈代谢(71.6%~73.1%)、遗传信息处理(9.8%~10.1%)、细胞过程(6.8%~7.7%)、人类疾病(5.2%~5.4%)、环境信息处理(2.3%~2.5%)和有机系统(约2.4%). 其中,自然过渡区的环境信息处理功能基因相对丰度与人为恢复区及对照区存在显著差异(P < 0.05),其余功能基因在不同区域中的丰度没有明显差异.

|
不同小写字母表示不同区域差异显著 图 6 不同区域土壤微生物功能预测 Fig. 6 Predicted soil microbial functions in different regions |
在KEGG二级通路中,相对丰度排名前10的优势功能基因约占所有基因丰度的70%以上. 丰度排名前10的功能基因组成为碳水化合物代谢(12.9%~13.4%)、全局概要(12.4%~12.6%)、氨基酸代谢(10.9%~11.5%)、能量代谢(7.1%~7.3%)、辅因子和维生素代谢(6.1%~6.2%)、核苷酸代谢(4.7%~4.8%)、翻译(4.3%~4.5%)、膜运输(4%~4.5%)、复制与修复(3.7%~3.8%)和脂质代谢(3.5%~3.6%). 对照区中膜运输功能基因相对丰度显著低于人为恢复区与自然过渡区(P < 0.05);自然过渡区中能量代谢功能基因的相对丰度显著高于人为恢复区与对照区(P < 0.05);其他功能基因在各区域中的相对丰度没有显著差异.
2.5 土壤环境因子与微生物群落相关性分析通过冗余分析研究不同区域土壤中微生物优势门与土壤理化性质的相关性,结果如图 7(a)所示. 表 3展示了冗余分析中各影响因素的R2及置换检验的P值,可用于衡量各影响因素的重要性与显著性. 轴1解释了34.7%,轴2解释了25.52%,累计解释了60.22%. 对微生物优势群落分布影响较为显著的主要驱动因素是Cu(R2=0.785,P=0.011)、TN(R2=0.448,P=0.033)、SOM(R2=0.439,P=0.036)和pH(R2=0.423,P=0.049). 变形菌门(Proteobacteria)和Patescibacteria门与Cu、pH和SOM呈正相关关系,与TN和Cr等呈负相关关系. TN与芽单胞菌门(Gemmatimonadota)、放线菌门(Actinobacteriota)和酸杆菌门(Acidobacteriota)等呈正相关关系. Mantel Test分析表明[图 7(b)],Cu含量与变形菌门(Proteobacteria)及Patescibacteria门呈现出显著相关性(P < 0.05),TN与酸杆菌门呈现出显著相关性(P < 0.05),与冗余分析的结果相近. 除此之外,Pb与变形菌门也呈现出显著相关性(P < 0.05). 综上所述,影响优势微生物群落分布的主要驱动因子为土壤pH、TN、SOM和Cu. 在环境因子之间也存在部分显著相关性,MC与SOM呈显著正相关(P < 0.01),与TK呈极显著正相关(P < 0.001);TK与SOM呈显著正相关(P < 0.01),Zn与Cd呈极显著正相关(P < 0.001).

|
(a)冗余分析(圆大小表示群落丰度大小),(b)Mantel test;*表示P < 0.05,**表示P < 0.01,***表示P < 0.001 图 7 微生物群落与土壤环境因子RDA分析与Mantel test Fig. 7 RDA analysis and Mantel test of microbial community and soil environmental factors |
|
|
表 3 RDA分析R2及置换检验 Table 3 The R2 of RDA analysis and replacement test |
3 讨论
本研究主要对复垦尾矿不同区域的土壤理化性质及微生物群落特征进行探究,微生物在对尾矿的生态修复中具有重要意义[29]. A、B和C这3个区域在土壤MC、SOM和pH等指标上存在显著差异,影响土壤中微生物群落的构成与丰度[30].
3.1 不同区域土壤重金属含量及理化性质差异在经过前期覆土与先锋植物定植并自然演替了5 a后,尾砂库土壤中的营养元素含量得到了一定提升. 参照表 4中2019年发布的全国第二次土壤普查所采用的土壤养分分级标准作为评价标准,尾砂库土壤中的SOM与TN含量达到了较丰富的水平,但TK和TP含量仍处于较贫乏的水平. 这可能得益于植被恢复后,植物生长凋落物在地表积累,并通过微生物分解周转进入尾砂基质,使得尾砂库土壤中有机质含量提高[31];同时先锋植物三裂叶葛藤的固氮作用也会提高土壤中氮元素的含量[32]. 3个区域的MC、SOM和pH存在显著差异. 整个尾矿区的pH呈中性偏弱碱性,对照区的pH较低,这可能由于人为恢复区与自然过渡区植物生长枯死后枯枝落叶进入土壤,提高了土壤pH值[33]. 由于尾矿区的整体坡向及地下水因素,自然过渡区土壤含水量明显高于人为恢复区与对照区. 另外,自然过渡区的SOM、TK、含量均高于人为恢复区与对照区,可能由于地表径流与渗流,导致营养元素向低地势坡底聚集[34,35]. 整个尾砂库土壤中重金属元素含量仍处于较高水平,其中人为恢复区Zn含量显著低于自然过渡区与对照区,自然过渡区的Cu含量显著高于人为恢复区与对照区. 由于人为恢复区芒草群落为优势群落且已有研究证明芒属植物对于铅锌尾砂库中Zn元素表现出较强的富集能力,同时植物的生长会促进重金属由残渣态向结合态转变,导致人为恢复区中Zn含量的降低[36]. 在自然环境中铜离子常存在于水溶液中,因此其可能随地表径流向坡底积累,这可能是导致自然过渡区中Cu含量高于其他两区的原因.
|
|
表 4 土壤养分评价标准 Table 4 Soil nutrient evaluation standard |
3.2 不同区域微生物优势群落比较
在门水平上,A、B和C这3个区域并没有表现出较为明显的差异,变形菌门是整个矿区的最主要优势群落,其在生物地球化学活动中呈现出高度多样性与活跃性;以往的研究同样证明变形菌门也是冀北孤山子铁矿、贵州铜仁汞矿和福建紫金山铜矿等的主要优势菌门[37~39],但文献[40]发现在砷矿区中优势微生物种群为绿弯菌门(Chloroflexi). 在属水平上,鞘氨醇单胞菌科为人为恢复区及对照区主要优势物种,该物种在硝化与反硝化系统中具有重要作用,具备一定的抗生素抗药性,是保证营养循环的重要微生物种群. 自然过渡区体现出较为明显差异,其中Leeia属为主要优势物种,其为β-变形菌纲(β-Proteobacteria)、奈氏球菌目(Neisseriales)和Leeiaceae科下独立分支的物种,据报道,该物种在人工湖中大量存在,且与浮游动物有关[41]. 自然过渡区由于其地势处于坡底且靠近排水渠,其土壤中含水率较高,容易形成蓄水坑,马鑫怡等[42]的研究表明,土壤水分条件是导致微生物种群差异的重要因素,这可能是Leeia属在自然过渡区中丰度较高的原因. 微生物的α-多样性分析表明,人为恢复区微生物群落丰度与多样性最高,其微生物群落丰度与对照区存在显著差异. 人为恢复区与自然过渡区微生物群落丰度与多样性总体上要大于对照区,这可能是因为人为恢复区与自然过渡区的植被种类较多且植物种群丰度较高. 有研究表明不同植被类型直接影响着土壤中微生物种群的构成[43,44]. β-多样性分析结果显示,自然过渡区微生物群落与人为恢复区及对照区距离较远,差异较明显,这也与微生物群落分析的结果相一致. 群落构建过程的结果表明,人为恢复区与自然过渡区中微生物群落构建以确定性过程为主,异质选择为其生态过程的主要形式. 对照区中微生物群落构建以随机性为主,扩散限制是其主要生态过程. 这可能由于人为恢复区与自然过渡区都形成了一定的优势植物群落,形成了较复杂但专一化的共生网络[45],微生物群落容易受到异质残留物的高度选择作用[46]. 而在对照区中,植物群落较少,生物相互作用的强度不高,使得扩散限制在其中的作用变得较强[47],从而使对照区呈现随机性过程.
3.3 环境因子与微生物群落相关性本研究通过RDA分析及Mantel检验对不同区域微生物群落及环境因子进行对应分析,其中RDA分析显示,Cu、pH、SOM和TN与微生物群落的相关性较高,其中土壤Cu是影响不同区域土壤微生物群落的最重要因素,变形菌门(Proteobacteria)、Patescibacteria门与Cu呈现显著相关性. 这与李雨桐等[48]在重庆潼南区汞矿的研究结果一致,在尾矿区高污染水平土壤中丰度较高的变形菌门(Proteobacteria)被认为是对重金属有较高耐性的微生物种群,与多数重金属污染场地的微生物群落特征研究结果相似[49]. 有研究表明,变形菌门下存在多种微生物,例如δ-变形菌纲下厌氧黏细菌属、地杆菌属参与变价重金属的氧化还原和有机卤代物的生物代谢过程,可作为环境修复的理想微生物[50]. 同时,Tian等[51]发现Patescibacteria与多种重金属转运相关基因有显著正相关性,包括砷泵膜蛋白、锰/锌/铁转运系统ATP结合蛋白、铁/锌/锰/铜转运系统渗透酶蛋白、锌转运蛋白、铜转运P型ATP酶和锰/锌转运ATP酶,其参与了污染土壤中重金属的迁移,将重金属从大块土壤转移至植物根系,进一步提高植物修复效率. 这两种微生物可能对于重金属污染土壤修复有着重要意义. 土壤pH对于微生物群落也有着显著影响,这与王敏等[52]在高寒退化草地土壤微生物相互作用特征中的结论相似. 土壤pH的变化会直接影响土壤中微生物酶的活性进而导致土壤微生物群落的改变[53],其与酸杆菌门呈现显著负相关,因为酸杆菌门为嗜酸微生物,其对pH变化较为敏感,较高pH会限制酸杆菌门的繁殖[54]. 土壤营养物质如SOM与TN的含量与质量对微生物的功能过程具有重要的调节作用,许多研究都发现有机质在土壤微生物群落的形成中起着关键作用[55]. 同样,不同的氮浓度梯度也对微生物有着不同的影响,短期少量的施加氮肥土壤微生物群落丰度将增加[56],而过高的氮添加量会对土壤中碳循环产生负面影响并促进致病微生物的形成[57]. 因此,在铅锌污染较严重的尾砂库土壤中,不仅重金属含量是影响微生物的关键因素,而且有机质、pH对于微生物群落也有着显著影响,在闫丰等[38]和于方明等[58]的研究中也得出了相似的结果. 在未来对矿区的修复中,提高土壤中有机质含量可能会加速微生物群落的构建,比如使用生物质材料或进行覆土种植与先锋植物定植等措施改善土壤环境.
4 结论(1)经过前期覆土并种植先锋植物,并经过多年自然演替后,尾砂库土壤中的有机质含量得到了一定提升,其含量达到了丰富的水平. 不同区域土壤的含水率、pH、SOM、Zn和Cu存在显著差异. 尾砂库土壤中营养元素含量可能受到植被生长情况,植被类型及地势的影响. 整个尾砂库土壤中重金属含量仍较高,且分布不均匀,植物的生长与地表径流对土壤中重金属含量有一定影响.
(2)门水平上的主要优势群落为变形菌门(Proteobacteria)和酸杆菌门(Acidobacteriota),属水平上的主要优势群落为鞘氨醇单胞菌属(Sphingomonas);α-多样性与β-多样性分析表明,人为恢复区与自然过渡区的微生物群落丰度与多样性大于对照区,而自然过渡区微生物群落与人为恢复区及对照区存在显著差异,人为恢复区与自然过渡区的群落构建是以异质选择为主的确定性过程,对照区的群落构建是以扩散限制为主的随机性过程.
(3)对微生物群落分布有显著影响的环境因子为Cu、pH、SOM和TN,其中Cu的影响最为关键. 变形菌门(Proteobacteria)和Patescibacteria门与Cu呈现显著相关性,TN与酸杆菌门呈现出显著相关性.
| [1] | Liu J L, Yao J, Li R F, et al. Unraveling assemblage of microbial community dwelling in Dabaoshan As/Pb/Zn mine-impacted area: a typical mountain mining area of South China[J]. Science of the Total Environment, 2024, 912. DOI:10.1016/j.scitotenv.2023.168850 |
| [2] | Forghani Tehrani G, Rubinos D A, Kelm U, et al. Environmental and human health risks of potentially harmful elements in mining-impacted soils: a case study of the Angouran Zn–Pb Mine, Iran[J]. Journal of Environmental Management, 2023, 334. DOI:10.1016/j.jenvman.2023.117470 |
| [3] | Huang C Y, Guo Z H, Li T S, et al. Source identification and migration fate of metal(loid)s in soil and groundwater from an abandoned Pb/Zn mine[J]. Science of the Total Environment, 2023, 895. DOI:10.1016/j.scitotenv.2023.165037 |
| [4] | Zhang J, Wang S, Fu Z Y, et al. Soil thickness influences the control effect of micro-topography on subsurface runoff generation in the karst hillslope critical zone[J]. CATENA, 2024, 239. DOI:10.1016/j.catena.2024.107957 |
| [5] | Zhong F X, Xu X L, Li Z W, et al. Relationships between lithology, topography, soil, and vegetation, and their implications for karst vegetation restoration[J]. CATENA, 2022, 209. DOI:10.1016/j.catena.2021.105831 |
| [6] | Guan H L, Fan J W, Zhang H Y, et al. Comparison of drivers of soil microbial communities developed in Karst ecosystems with shallow and deep soil depths[J]. Agronomy, 2021, 11(1). DOI:10.3390/agronomy11010173 |
| [7] | Wang Y W, Luo W J, Zeng G N, et al. Characteristics of carbon, water, and energy fluxes on abandoned farmland revealed by critical zone observation in the karst region of southwest China[J]. Agriculture, Ecosystems & Environment, 2020, 292. DOI:10.1016/j.agee.2020.106821 |
| [8] | Suolang Y Z, Luo W X, Ma J W, et al. Extreme precipitation alters soil nitrogen cycling related microbial community in karst abandoned farmland[J]. Applied Soil Ecology, 2024, 197. DOI:10.1016/j.apsoil.2024.105345 |
| [9] | Wang Y P, Shen Z J, Zhang Z. Phosphorus speciation and nutrient stoichiometry in the soil-plant system during primary ecological restoration of copper mine tailings[J]. Pedosphere, 2018, 28(3): 530-541. DOI:10.1016/S1002-0160(18)60031-1 |
| [10] | Zhao W Y, Wu S Y, Chen X, et al. How would ecological restoration affect multiple ecosystem service supplies and tradeoffs? A study of mine tailings restoration in China[J]. Ecological Indicators, 2023, 153. DOI:10.1016/j.ecolind.2023.110451 |
| [11] | Lin H, Jiang X Y, Li B, et al. Soilless revegetation: an efficient means of improving physicochemical properties and reshaping microbial communities of high-salty gold mine tailings[J]. Ecotoxicology and Environmental Safety, 2021, 207. DOI:10.1016/j.ecoenv.2020.111246 |
| [12] | Zhu B, Si M Y, Xie X, et al. Effects of biomass co-pyrolysis and herbaceous plant colonization on the transformation of tailings into soil like substrate[J]. Journal of Environmental Sciences, 2025, 147: 230-243. DOI:10.1016/j.jes.2023.09.029 |
| [13] | Leon E, Hughes M P, Daley O. Nutritive value and herbage mass of Pueraria phaseoloides (tropical kudzu) in un-utilized open grasslands in north-eastern and central Trinidad and Tobago[J]. Journal of the Saudi Society of Agricultural Sciences, 2023, 22(1): 11-17. DOI:10.1016/j.jssas.2022.05.002 |
| [14] | Sun X X, Song B R, Xu R, et al. Root-associated (rhizosphere and endosphere) microbiomes of the Miscanthus sinensis and their response to the heavy metal contamination[J]. Journal of Environmental Sciences, 2021, 104: 387-398. DOI:10.1016/j.jes.2020.12.019 |
| [15] | Wu J T, Fu X F, Zhao L, et al. Biochar as a partner of plants and beneficial microorganisms to assist in-situ bioremediation of heavy metal contaminated soil[J]. Science of the Total Environment, 2024, 923. DOI:10.1016/j.scitotenv.2024.171442 |
| [16] | Zhang X R, Gong Z Q, Jia Y J, et al. Response characteristics and functional predictions of soil microorganisms to heavy metals, antibiotics, and their resistance genes originating from different animal farms amended with Herbaspirillum huttiense [J]. Environmental Research, 2024, 246. DOI:10.1016/j.envres.2024.118143 |
| [17] | Hu X S, Liu X X, Qiao L K, et al. Study on the spatial distribution of ureolytic microorganisms in farmland soil around tailings with different heavy metal pollution[J]. Science of the Total Environment, 2021, 775. DOI:10.1016/j.scitotenv.2021.144946 |
| [18] | Hnini M, Rabeh K, Oubohssaine M. Interactions between beneficial soil microorganisms (PGPR and AMF) and host plants for environmental restoration: a systematic review[J]. Plant Stress, 2024, 11. DOI:10.1016/j.stress.2024.100391 |
| [19] | Zhan J, Sun Q Y. Diversity of free-living nitrogen-fixing microorganisms in the rhizosphere and non-rhizosphere of pioneer plants growing on wastelands of copper mine tailings[J]. Microbiological Research, 2012, 167(3): 157-165. DOI:10.1016/j.micres.2011.05.006 |
| [20] | Gao X, Han Z, Zhao Y Y Z, et al. Interaction of microorganisms with carbonates from the micro to the macro scales during sedimentation: insights into the early stage of biodegradation[J]. Journal of Environmental Management, 2024, 356. DOI:10.1016/j.jenvman.2024.120714 |
| [21] | Huang Y H, Huangfu X L, Ma C X, et al. Sequestration and oxidation of heavy metals mediated by Mn(Ⅱ) oxidizing microorganisms in the aquatic environment[J]. Chemosphere, 2023, 329. DOI:10.1016/j.chemosphere.2023.138594 |
| [22] | Yan M, Su Z X, Ding J Z, et al. The enhancement of tetracycline degradation through zero-valent iron combined with microorganisms during wastewater treatment: mechanism and contribution[J]. Environmental Research, 2023, 226. DOI:10.1016/j.envres.2023.115666 |
| [23] | Yan Z X, Li Y, Peng S Y, et al. Cadmium biosorption and mechanism investigation using two cadmium-tolerant microorganisms isolated from rhizosphere soil of rice[J]. Journal of Hazardous Materials, 2024, 470. DOI:10.1016/j.jhazmat.2024.134134 |
| [24] |
韩丰泽, 杨小俊, 吕凤, 等. 不同碳源反硝化脱氮性能及微生物群落研究[J]. 环境科学与技术, 2024, 47(6): 171-178. Han F Z, Yang X J, Lyu F, et al. Study on nitrogen removal efficiency of denitrification and microbial community structure under different carbon sources[J]. Environmental Science & Technology, 2024, 47(6): 171-178. |
| [25] |
曾奥琪, 聂小东, 廖文飞, 等. 湖泊沉积物有机质分布变化对微生物群落结构的影响[J]. 土壤学报, 2025, 62(1): 246-260. Zeng A Q, Nie X D, Liao W F, et al. Effects of changes in organic matter distribution in lake sediments on microbial community structure[J]. Acta Pedologica Sinica, 2025, 62(1): 246-260. |
| [26] |
李仑, 周虹. 植被恢复和凋落物分解对高寒沙区土壤微生物的影响[J]. 青海农林科技, 2024, 2: 78-85, 91. Li L, Zhou H. Effects of vegetation restoration and litter degradation on soil microbes in alpine sandy region[J]. Science and Technology of Qinghai Agriculture and Forestry, 2024, 2: 78-85, 91. |
| [27] | Zhou D, Xia Y L, Li C, et al. Influence pathways of vanadium stress to microbial community in soil-tailings-groundwater systems[J]. Journal of Environmental Sciences, 2025, 154: 264-276. DOI:10.1016/j.jes.2024.05.019 |
| [28] | 鲁如坤. 土壤农业化学分析方法[M]. 北京: 中国农业科技出版社, 2000. |
| [29] |
黄泽凯, 刀承娇, 马鹏翔, 等. 兰坪主要铅锌矿复垦区氮循环相关细菌群落特征及其与土壤的响应[J]. 环境科学, 2025, 46(1): 399-408. Huang Z K, Dao C J, Ma P X, et al. Characteristics of nitrogen cycle-related bacterial community and its response to soil in the main lead-zinc mine reclamation area of Lanping[J]. Environmental Science, 2025, 46(1): 399-408. DOI:10.13227/j.hjkx.202312278 |
| [30] |
陈浮, 宋晓君, 董文雪, 等. 采煤沉陷区复垦对土壤细菌群落组装及固碳功能的影响——以东滩矿区为例[J]. 煤炭科学技术, 2024, 52(1): 345-354. Chen F, Song X J, Dong W X, et al. Effects of land reclamation on soil bacterial community assembly and carbon sequestration function in coal mine subsidence area: taking Dongtan Mining Area as an example[J]. Coal Science and Technology, 2024, 52(1): 345-354. |
| [31] | Błońska E, Prażuch W, Lasota J. Deadwood affects the soil organic matter fractions and enzyme activity of soils in altitude gradient of temperate forests[J]. Forest Ecosystems, 2023, 10. DOI:10.1016/j.fecs.2023.100115 |
| [32] | Clermont-Dauphin C, Suvannang N, Pongwichian P, et al. Dinitrogen fixation by the legume cover crop Pueraria phaseoloides and transfer of fixed N to Hevea brasiliensis—Impact on tree growth and vulnerability to drought[J]. Agriculture, Ecosystems & Environment, 2016, 217: 79-88. |
| [33] |
孙晋涛, 孙晋睿, 陈显坤, 等. 有机改良材料对矸石山复垦区芒果铅、镉吸收的影响[J]. 热带作物学报, 2024, 45(9): 1947-1957. Sun J T, Sun J R, Chen X K, et al. Effect of organic amendment materials on the uptake of Pb and Cd in mango from gangue mountain reclamation area[J]. Chinese Journal of Tropical Crops, 2024, 45(9): 1947-1957. |
| [34] |
张子鸣, 郝珖存. 坡向对公路边坡土壤有机碳恢复的短期影响[J]. 中国水土保持(中英文), 2025, 23(2): 190-198. Zhang Z M, Hao G C. Short-term effects of slope aspect on the soil organic carbon recovery of highway slopes[J]. Science of Soil and Water Conservation, 2025, 23(2): 190-198. |
| [35] |
王祥, 陈炜, 黄国鲜, 等. 长江上游典型丘陵山区坡耕地径流及氮磷碳流失特征[J]. 环境工程技术学报, 2024, 14(5): 1589-1598. Wang X, Chen W, Huang G X, et al. Characteristics of runoff and nitrogen, phosphorus, and carbon loss in sloping cultivated lands in the typical hilly mountainous region of the Upper Yangtze River Basin[J]. Journal of Environmental Engineering Technology, 2024, 14(5): 1589-1598. |
| [36] |
朱佳文, 邹冬生, 向言词, 等. 先锋植物对铅锌尾矿库重金属污染的修复作用[J]. 水土保持学报, 2011, 25(6): 207-210, 215. Zhu J W, Zou D S, Xiang Y C, et al. Pioneer species on remediation of heavy metal contamination in lead/zinc mine tailings pond[J]. Journal of Soil and Water Conservation, 2011, 25(6): 207-210, 215. |
| [37] |
彭玙萍, 曾伟民. 紫金山铜矿酸性矿山废水微生物群落多样性[J]. 微生物学通报, 2020, 47(9): 2887-2896. Peng Y P, Zeng W M. Diversity of microbial community in acid mine drainage from Zijinshan copper mine[J]. Microbiology China, 2020, 47(9): 2887-2896. |
| [38] |
闫丰, 赵鑫, 赵玉璞, 等. 矿山修复模式对刺槐根际土壤微生物群落结构和功能的影响[J]. 环境科学, 2025, 46(5): 3272-3286. Yan F, Zhao X, Zhao Y P, et al. Effects of mine remediation mode on microbial community structure and function in the Rhizosphere Soil of Robinia Pseudoacacia[J]. Environmental Science, 2025, 46(5): 3272-3286. DOI:10.13227/j.hjkx.202405188 |
| [39] |
陈芬, 余高, 孙约兵, 等. 汞矿区周边农田土壤微生物群落结构特征及其环境驱动因子[J]. 环境科学, 2022, 43(8): 4342-4352. Chen F, Yu G, Sun Y B, et al. Characteristics of microbial community structure in the surrounding farmlands of a mercury mining area and its environmental driving factors[J]. Environmental Science, 2022, 43(8): 4342-4352. DOI:10.13227/j.hjkx.202111245 |
| [40] | Dai H H, Gao J F, Li D C, et al. Family Sphingomonadaceae as the key executor of triclosan degradation in both nitrification and denitrification systems[J]. Chemical Engineering Journal, 2022, 442. DOI:10.1016/j.cej.2022.136202 |
| [41] | Song J, Joung Y, Li S H, et al. Leeia aquatica sp. nov., isolated from freshwater[J]. International Journal of Systematic and Evolutionary Microbiology, 2020, 70(11): 5848-5853. DOI:10.1099/ijsem.0.004487 |
| [42] |
马馨怡, 高威, 李颜, 等. 基于细胞水平高通量测序的土壤水分对活性微生物的影响研究[J]. 生态学报, 2024, 44(16): 7160-7171. Ma X Y, Gao W, Li Y, et al. Effect of soil water status on active microbes at cellular level based on high-throughput sequencing[J]. Acta Ecologica Sinica, 2024, 44(16): 7160-7171. |
| [43] |
道日娜, 张英, 李希来, 等. 高寒湿地演替过程对土壤细菌多样性的影响[J]. 环境科学, 2025, 46(3): 1897-1904. Dao R N, Zhang Y, Li X L, et al. Response of alpine wetland succession to soil bacterial diversity[J]. Environmental Science, 2025, 46(3): 1897-1904. DOI:10.13227/j.hjkx.202403266 |
| [44] |
闫丰, 赵鑫, 邵丽君, 等. 冀北采石场恢复区不同植被恢复类型对土壤微生物群落结构的影响[J]. 环境科学, 2025, 46(5): 1213-1224. Yan F, Zhao X, Shao L J, et al. Impact of different vegetation restoration types on soil microbial community structure in the restoration area of quarries in northern Hebei Province[J]. Environmental Science, 2025, 46(5): 1213-1224. |
| [45] | Barberán A, Bates S T, Casamayor E O, et al. Using network analysis to explore co-occurrence patterns in soil microbial communities[J]. The ISME Journal, 2012, 6(2): 343-351. DOI:10.1038/ismej.2011.119 |
| [46] |
李玉靖, 李瑞云, 李乔, 等. 随机过程主导吕梁不同生态系统土壤真菌群落构建[J]. 微生物学通报, 2024, 51(10): 3987-4003. Li Y J, Li R Y, Li Q, et al. Stochastic processes dominate the assembly of soil fungal communities in different ecosystems of Lüliang[J]. Microbiology China, 2024, 51(10): 3987-4003. |
| [47] | Jiao S, Chu H Y, Zhang B G, et al. Linking soil fungi to bacterial community assembly in arid ecosystems[J]. iMeta, 2022, 1(1). DOI:10.1002/imt2.2 |
| [48] |
李雨桐, 杨杉, 张艺, 等. 不同地区土壤古菌群落对重金属污染的响应[J]. 环境科学, 2021, 42(9): 4481-4488. Li Y T, Yang S, Zhang Y, et al. Response of soil archaeal community to heavy metal pollution in different typical regions[J]. Environmental Science, 2021, 42(9): 4481-4488. |
| [49] |
陈任连, 蔡茜茜, 周丽华, 等. 甘肃某冶炼厂区土壤重金属铅、镉污染特征及其对微生物群落结构的影响[J]. 生态环境学报, 2021, 30(3): 596-603. Chen R L, Cai X X, Zhou L H, et al. Characteristics of soil contamination with heavy metals (Pb and Cd) in a smelting plant of Gansu and their effects on microbial community structure[J]. Ecology and Environmental Sciences, 2021, 30(3): 596-603. |
| [50] | Sun M, Xiao T F, Ning Z P, et al. Microbial community analysis in rice paddy soils irrigated by acid mine drainage contaminated water[J]. Applied Microbiology and Biotechnology, 2015, 99(6): 2911-2922. |
| [51] | Tian Z J, Li G W, Tang W Z, et al. Role of Sedum alfredii and soil microbes in the remediation of ultra-high content heavy metals contaminated soil[J]. Agriculture, Ecosystems & Environment, 2022, 339. DOI:10.1016/j.agee.2022.108090 |
| [52] |
王敏, 刘旻霞, 王千月, 等. 玛曲高寒退化草地土壤-微生物特征及相互作用[J]. 中国环境科学, 2023, 43(12): 6482-6489. Wang M, Liu M X, Wang Q Y, et al. Soil-microbe characterization and interaction in alpine degraded grassland in Maqu county[J]. China Environmental Science, 2023, 43(12): 6482-6489. |
| [53] |
罗正明, 刘晋仙, 胡砚秋, 等. 五台山不同退化程度亚高山草甸土壤微生物群落分类与功能多样性特征[J]. 环境科学, 2023, 44(5): 2918-2927. Luo Z M, Liu J X, Hu Y Q, et al. Taxonomic and functional diversity of soil microbial communities in subalpine meadow with different degradation degrees in mount Wutai[J]. Environmental Science, 2023, 44(5): 2918-2927. DOI:10.13227/j.hjkx.202204330 |
| [54] |
李元, 杨海鑫, 喻其林, 等. 运城盐湖湿地土壤微生物多样性及其对重金属的响应[J]. 环境科学, 2025, 46(5): 3296-3304. Li Y, Yang H X, Yu Q L, et al. Soil microbial diversity and its response to heavy metals in Yuncheng salt lake wetland[J]. Environmental Science, 2025, 46(5): 3296-3304. DOI:10.13227/j.hjkx.202405153 |
| [55] | Xun W B, Yan R R, Ren Y, et al. Grazing-induced microbiome alterations drive soil organic carbon turnover and productivity in meadow steppe[J]. Microbiome, 2018, 6(1). DOI:10.1186/s40168-018-0544-y |
| [56] | Ramirez K S, Craine J M, Fierer N. Consistent effects of nitrogen amendments on soil microbial communities and processes across biomes[J]. Global Change Biology, 2012, 18(6): 1918-1927. |
| [57] | Zhang Y, Cao C, Guo L, et al. Soil properties, bacterial community composition, and metabolic diversity responses to soil salinization of a semiarid grassland in northeast China[J]. Journal of Soil and Water Conservation, 2015, 70(2): 110-120. |
| [58] |
于方明, 姚亚威, 谢冬煜, 等. 泗顶矿区6种土地利用类型土壤微生物群落结构特征[J]. 中国环境科学, 2020, 40(5): 2262-2269. Yu F M, Yao Y W, Xie D Y, et al. Study on the soil microbial community structure associated with six land use in Siding mining area[J]. China Environmental Science, 2020, 40(5): 2262-2269. |